D07 · Spatiotemporal distribution of location and object effects in primary motor cortex neurons during reach-to-grasp
Rouse, A.G., & Schieber, M.H. (2016). The Journal of Neuroscience, 36, 10640–10653. doi:10.1523/JNEUROSCI.1716-16.2016
伸手—抓握—操作过程中,M1 位置相关效应总体较早、物体相关效应较晚。两类效应在同一细胞及所采样的近端、远端表示区广泛重叠,时间分化强于简单空间分离。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
伸手位置与被操作物体分别影响手臂和手部动作,但两类效应可能在M1中混合。本文同时考察它们的时间过程与皮层空间分布。
研究思路
通过多个位置—物体组合和多部位阵列记录,作者按行为事件对齐活动,并用方差分析比较位置、物体和交互项。ICMS提供运动诱发的体部参考;物体效应同时包含相应手形和操作方式的差异。
方法
两只雄性恒河猴 L 和 X(9–11 kg),分别记录 14 和 8 个 session。任务:猴子抓住肩前 32 cm 处中央同轴圆柱并保持(L 1500–2000 ms,X 1000–1500 ms),蓝灯亮起指示外围目标,猴子释放中央物、伸手 13 cm 半径处抓到目标并完成相应操作——拉垂直圆柱、拉同轴圆柱、按按钮或转球——合上微动开关并保持 1 s 得水奖励;错误 trial 及其后紧邻的 trial 均剔除。神经记录:96 个电极(6×16 FMA),信号经 Plexon 系统采集,离线人工加算法分拣,按 SNR 和 ISI 违规分成 definite single unit(SNR≥3 且零违规)、probable single unit(SNR≥2.5,估计 ≥90% 真 spike)和 multiunit;共 867(L)和 465(X)个 sorted units,其中 definite 267 和 158 个。再用波形、放电率、自相关及与其他单元的互相关跨 session 匹配,剔除重复记录,得到 198(L)和 80(X)个 unique single units,多 session 记录的取 SNR 最大的 session。放电率 1 ms 分箱、σ=50 ms 高斯平滑、平方根变换稳定方差。分析窗围绕四事件切分(L 共 658 ms,X 共 708 ms),每个时间点做 location × object 双因素 ANOVA,显著性经 Bonferroni 校正(阈值约 p=0.000025/0.000024)。
主要结果
单个神经元的示例(图2、图3)就预示了结局。一个 definite single unit 在 movement onset 时刻的放电几乎只随位置变(112.5° 最高、45° 最低,与物体无关),到了外围物体接触时刻,同一个神经元的放电几乎只随物体变(垂直圆柱最高、同轴圆柱最低,与位置无关)。η²(t) 曲线把交接过程量化了:位置效应从 instruction 后 115 ms 就显著(早于 movement onset 约 122 ms),物体和交互效应到 movement onset 前 26–27 ms 才冒头;临近接触,位置与交互效应退潮、物体效应涨潮并一直主导到 final hold。
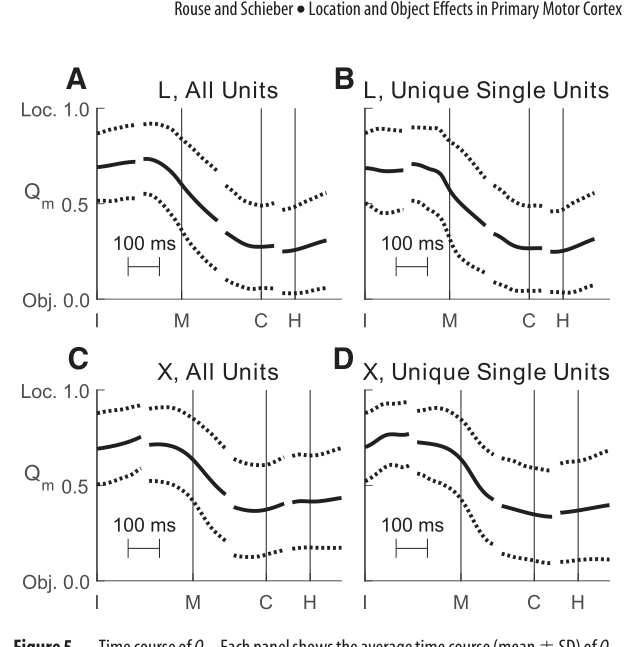
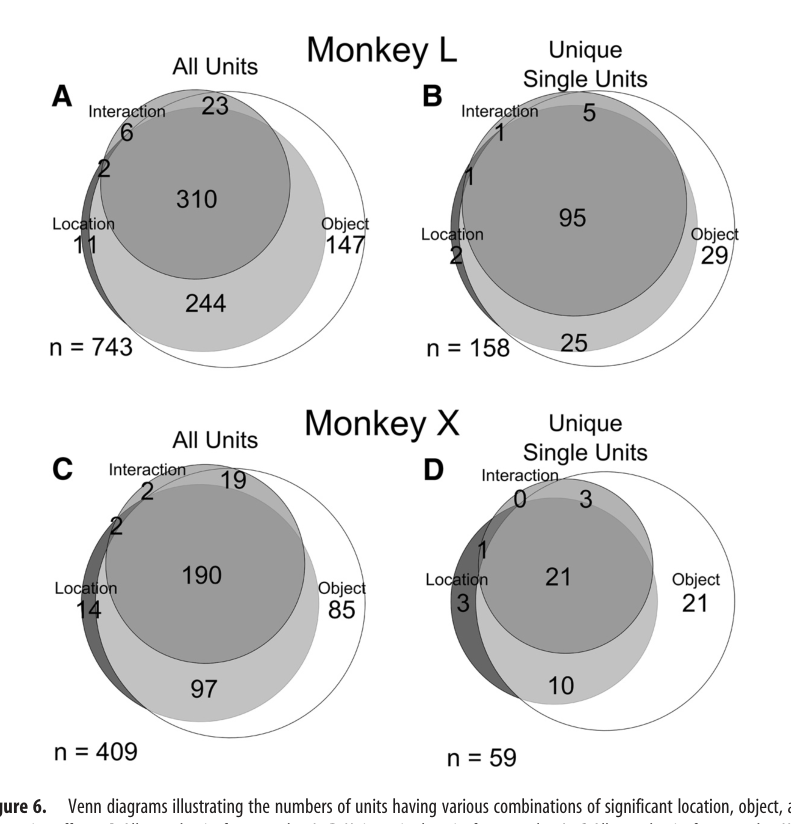
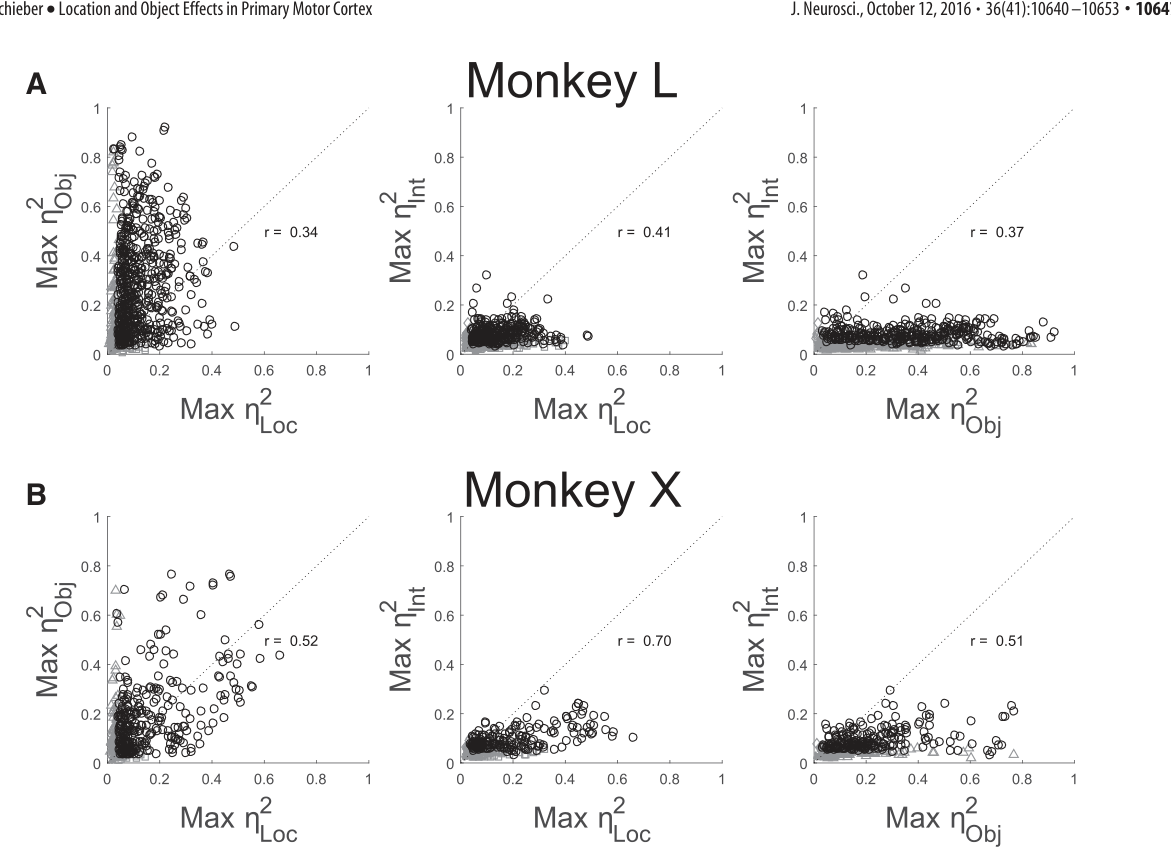
群体层面这个图景高度可重复。86%(L)和 88%(X)的 sorted units 至少有一个显著效应;平均 η² 显示位置效应先升、物体效应后升的交接(图4)。他们定义了 Qm = 位置效应 /(位置+物体效应):movement onset 时 Qm 为 0.60(L)和 0.63(X),到物体接触时掉到 0.27 和 0.37(配对 t 检验 p<0.001,图5)。平均放电率和任务因素解释的总方差都从运动前上升到物体接触附近、之后回落,且各有一个局部峰(movement onset 附近一个、object contact 附近一个)——两阶段的神经活动在平均放电率里都留了影子。同样重要的是,效应并不分家到不同神经元:unique single units 中 76%(L)和 53%(X)同时有位置和物体主效应,位置效应与物体效应的最大值正相关(r=0.34/0.52)——这不支持完全互斥的两群分工,但正相关本身不能排除所有专门化(图6、图7)。
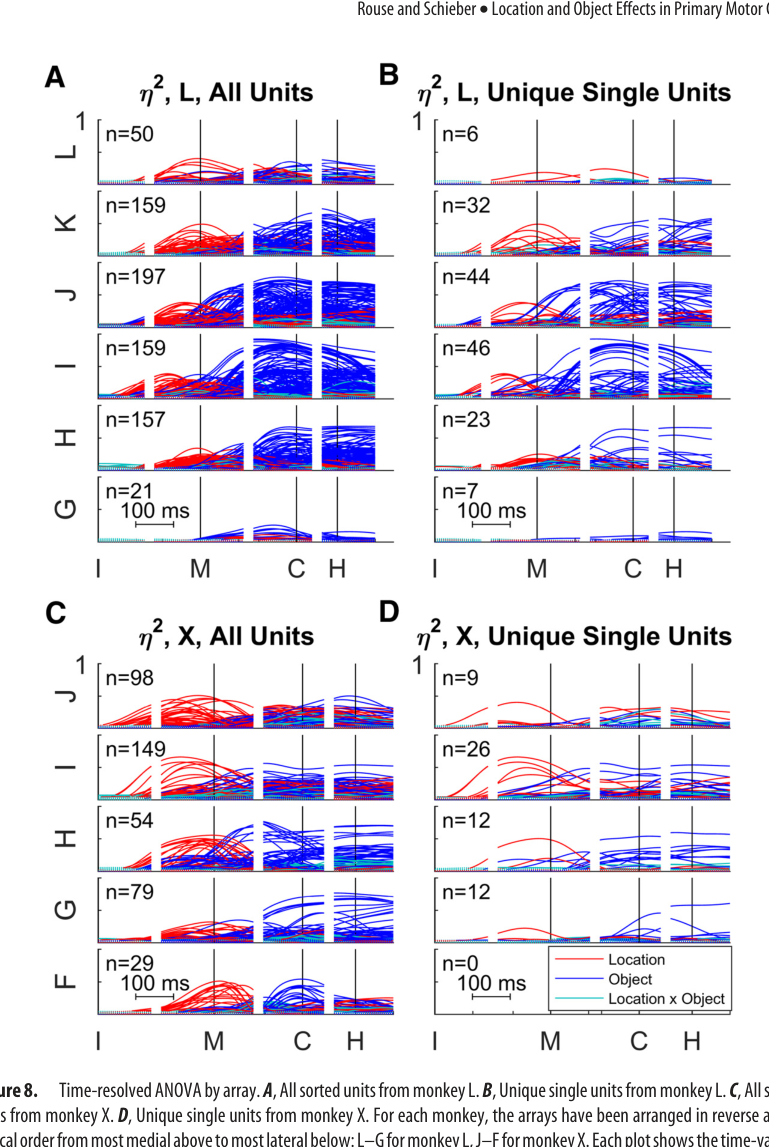
空间分布的答案也一致:位置、物体、交互效应三类都铺满整个采样领土,质心在整个 trial 期间的漂移不超过 2.5 mm(图8 及 Movie 1)。细微的梯度存在:物体效应略偏中央(Qm 对内外侧位置二次拟合的抛物线极小值在场中央,图9);按 ICMS 体部排序时,D/W 位点的物体效应最大、S 位点的位置效应最大,但大量 D 位点神经元有显著位置效应、大量 S 位点神经元有大物体效应(图10)。两猴的时空传播略有不同:L 的效应从中央阵列向两侧扩散,X 的位置效应从最内侧阵列起跑再向外扩散。一句话,位置和物体效应在内–外、浅–深两个维度上都大面积重叠,时间上的交接才是主要分离。
逐图解读
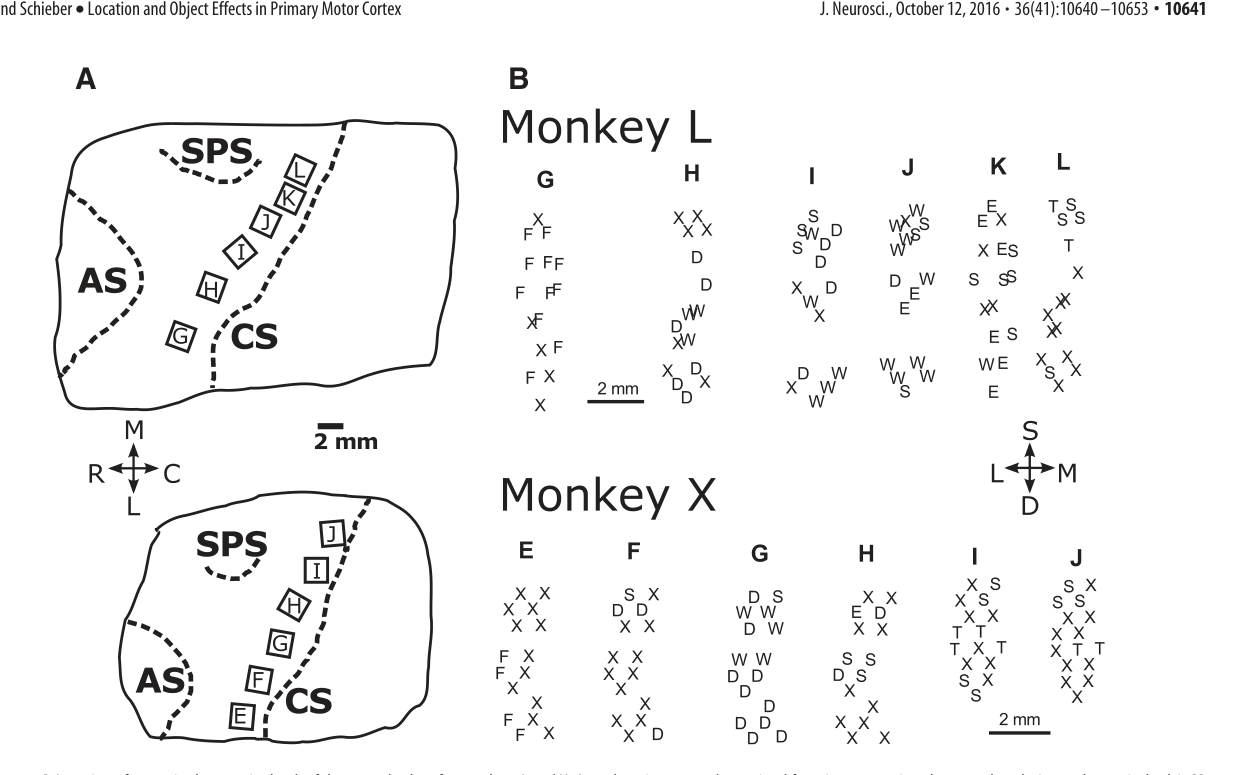
来源:原文 Fig. 1,PDF 第 2 页。
图 1 · 阵列位置与 ICMS 运动诱发分布。 (A) 基于术中照片的示意确定 6 个 FMA 在中央沟前壁的位置;(B) 每个电极尖的阈值 ICMS(≤100 µA)诱发运动投影到平行于前壁的 2D 平面:内侧为 trunk,外侧为 face,肩–肘–腕–指依次排在中间,与经典的 core–horseshoe 组织一致。这张图是后面所有"按阵列/按体部/按位置"归类的坐标系,没有它,第 8–10 图都无从谈起。
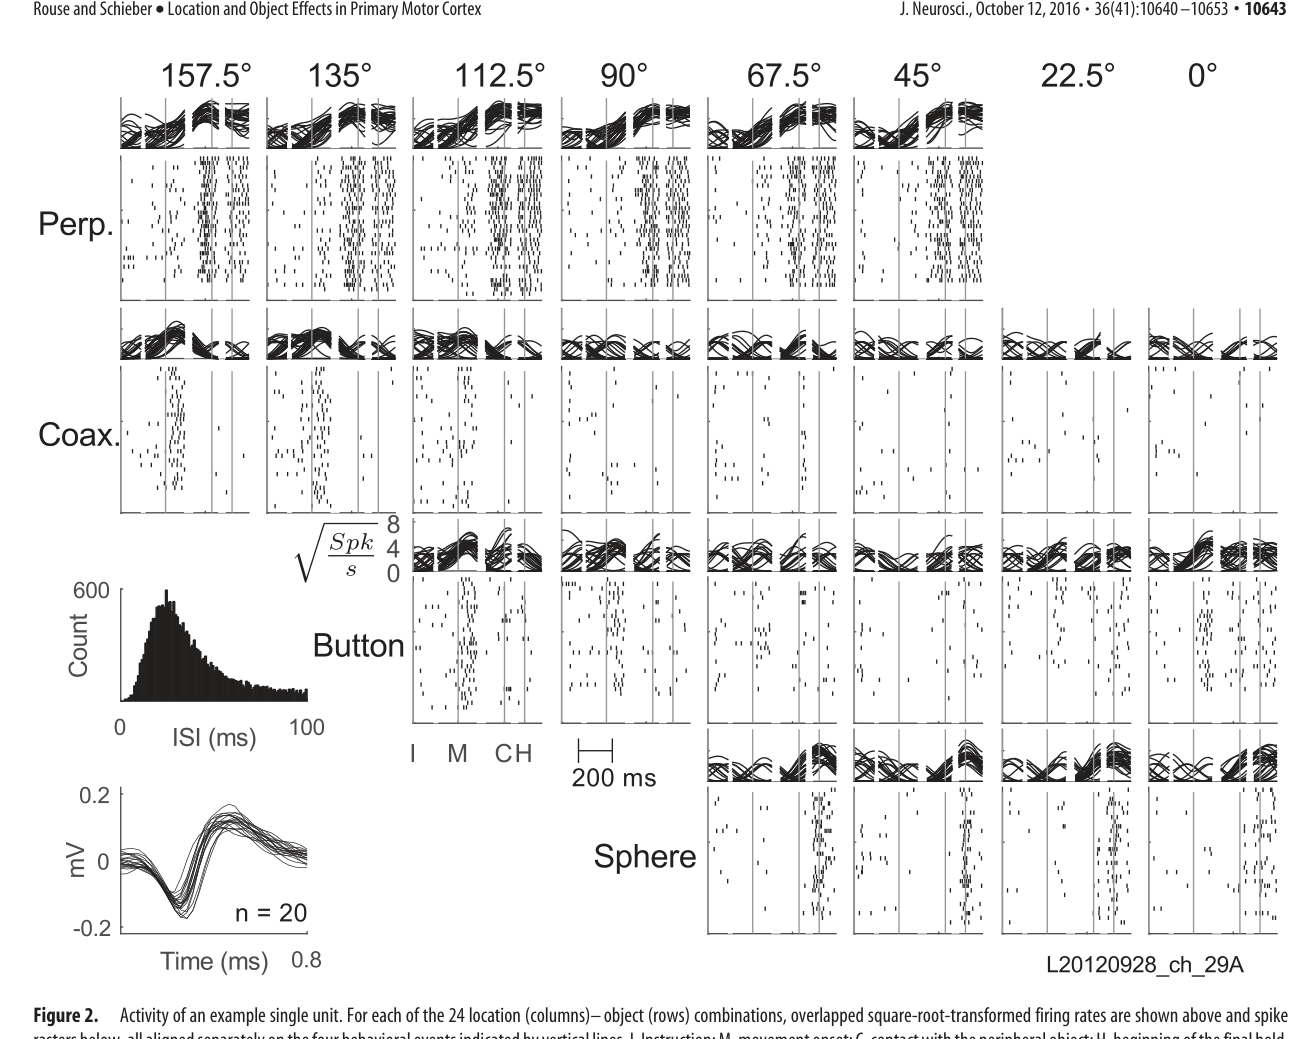
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · 一个示例神经元的 24 条件放电。 24 个位置–物体组合各占一格,上为平方根变换后的平滑放电率叠加,下为 spike raster,四条竖线是 I/M/C/H 四个对齐事件;左下插图给出 ISI 直方图和 20 个叠加波形(零违规、SNR 5.95,定级 definite single unit)。粗看这个单元在垂直圆柱的接触与 hold 期最活跃,movement onset 后还有一小簇放电——位置和物体的调制在同一细胞里共存,为全文提供后续分析的依据。
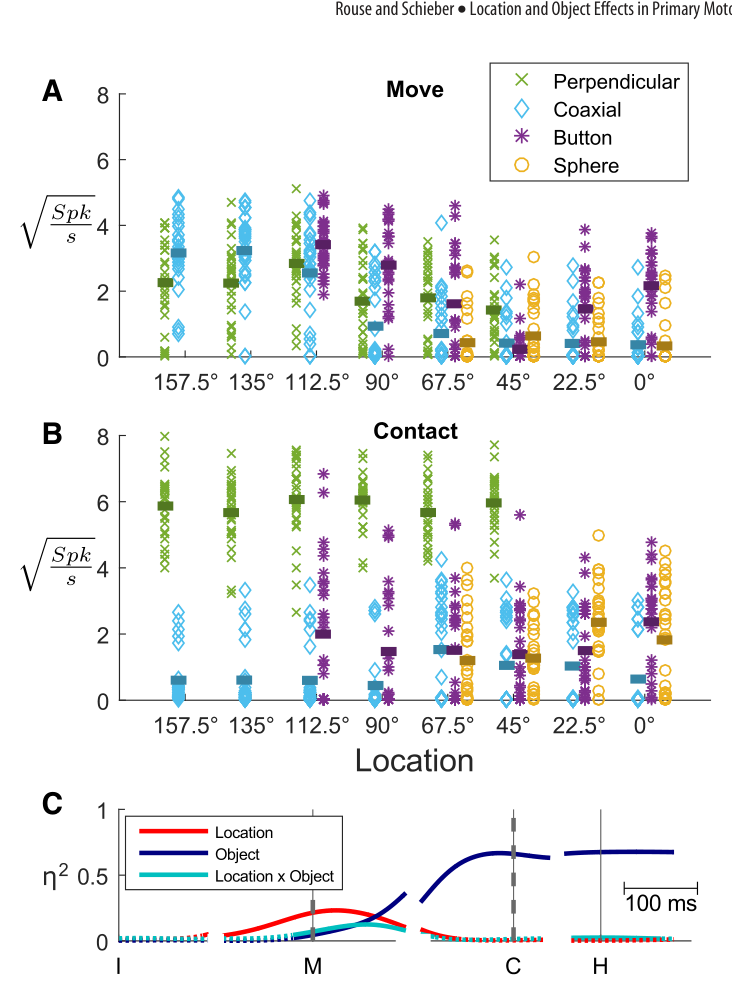
来源:原文 Fig. 3,PDF 第 5 页。
图 3 · 同一神经元内位置与物体效应的时间交接。 (A) movement onset 时刻各 trial 的放电率对位置作图(不同符号为不同物体):随位置系统变化、对物体不敏感;(B) 同批 trial 在物体接触时刻的放电率:随物体变化、与位置无关;(C) 位置、物体、交互三者的 η²(t) 时间过程(实线为显著),位置效应从 instruction 后 115 ms 起显著,物体效应在 movement onset 前 26 ms 才登场。这张图是全文的种子现象:不是两群细胞各管一摊,而是同一个细胞先管位置、后管物体。
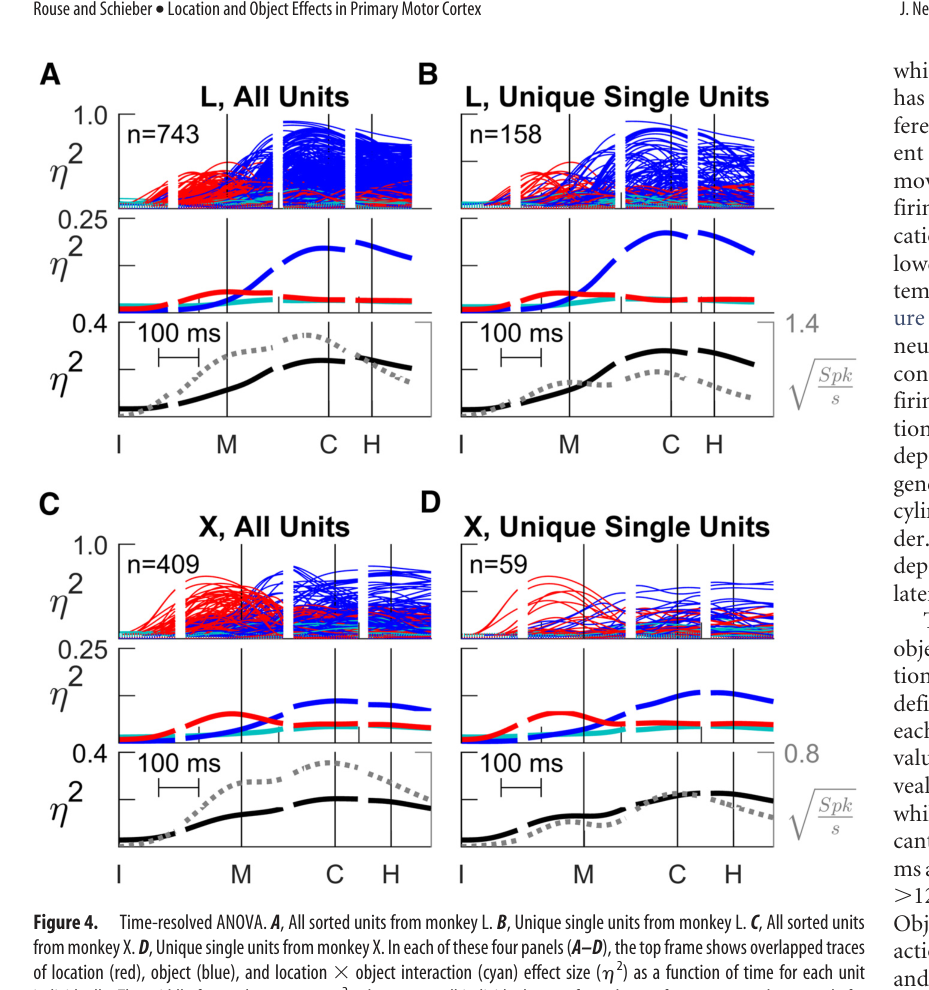
来源:原文 Fig. 4,PDF 第 6 页。
图 4 · 群体的时间分辨 ANOVA。 四个面板(两猴 × 全部 sorted units / 仅 unique single units),顶帧为所有单元的三色 η² 轨迹叠加,中帧为三类效应的平均值,底帧为任务因素解释的总方差(黑线)与平均放电率变化(灰线)。红蓝交接在四个面板里全部重复,放电率呈双峰——单细胞层面的现象是群体层面的常态,且不依赖 multiunit。
来源:原文 Fig. 5,PDF 第 7 页。
图 5 · Qm 的时间过程。 Qm(位置效应占比)在四个单元组里都从 movement onset 前的 0.6 上下单调下降,到物体接触时降到 0.27–0.37,均值±SD 的灰色带分得很开。这是图4 中帧的定量浓缩:一帧图讲完"先位置后物体"的全部时间结构。
来源:原文 Fig. 6,PDF 第 7 页。
图 6 · 效应组合的 Venn 图。 位置、物体、交互三圆两两交叠,L 猴 60% 的 unique single units 三者全有、X 猴 36%;同时有位置和物体主效应的占 76%(L)/53%(X),只有位置或只有物体的是少数。这张图回答"效应发生在同一批神经元还是不同批"——答案倾向于同一批,不支持在这些记录中将两类效应严格分为互不重叠的单元群。
来源:原文 Fig. 7,PDF 第 8 页。
图 7 · 最大效应量的两两散点。 位置对物体的最大 η² 正相关(r=0.34/0.52),多数点落在恒等线上方(物体>位置:L 83%、X 64%);交互效应整体小于两个主效应但与两者都正相关(r 最高达 0.70)。正相关是关键读法:若两种效应严格互斥,强效应点应较少重叠;正相关不能排除较弱的亚群偏好,实际却是越强的细胞两样都强。
来源:原文 Fig. 8,PDF 第 9 页。
图 8 · 按阵列分解的时间过程。 与图4 同样的三色 η² 曲线,这次按电极阵列从内侧(上)到外侧(下)逐阵列排列(L 为 L–G,X 为 J–F)。位置和物体效应在所有阵列上都出现——从内到外无一幸免;X 猴的位置效应在内侧阵列出现更早更强,L 猴则无此梯度。右列显示 unique single units 中也有相近的分布,减弱了结果完全由 multiunit 混合造成的可能性。
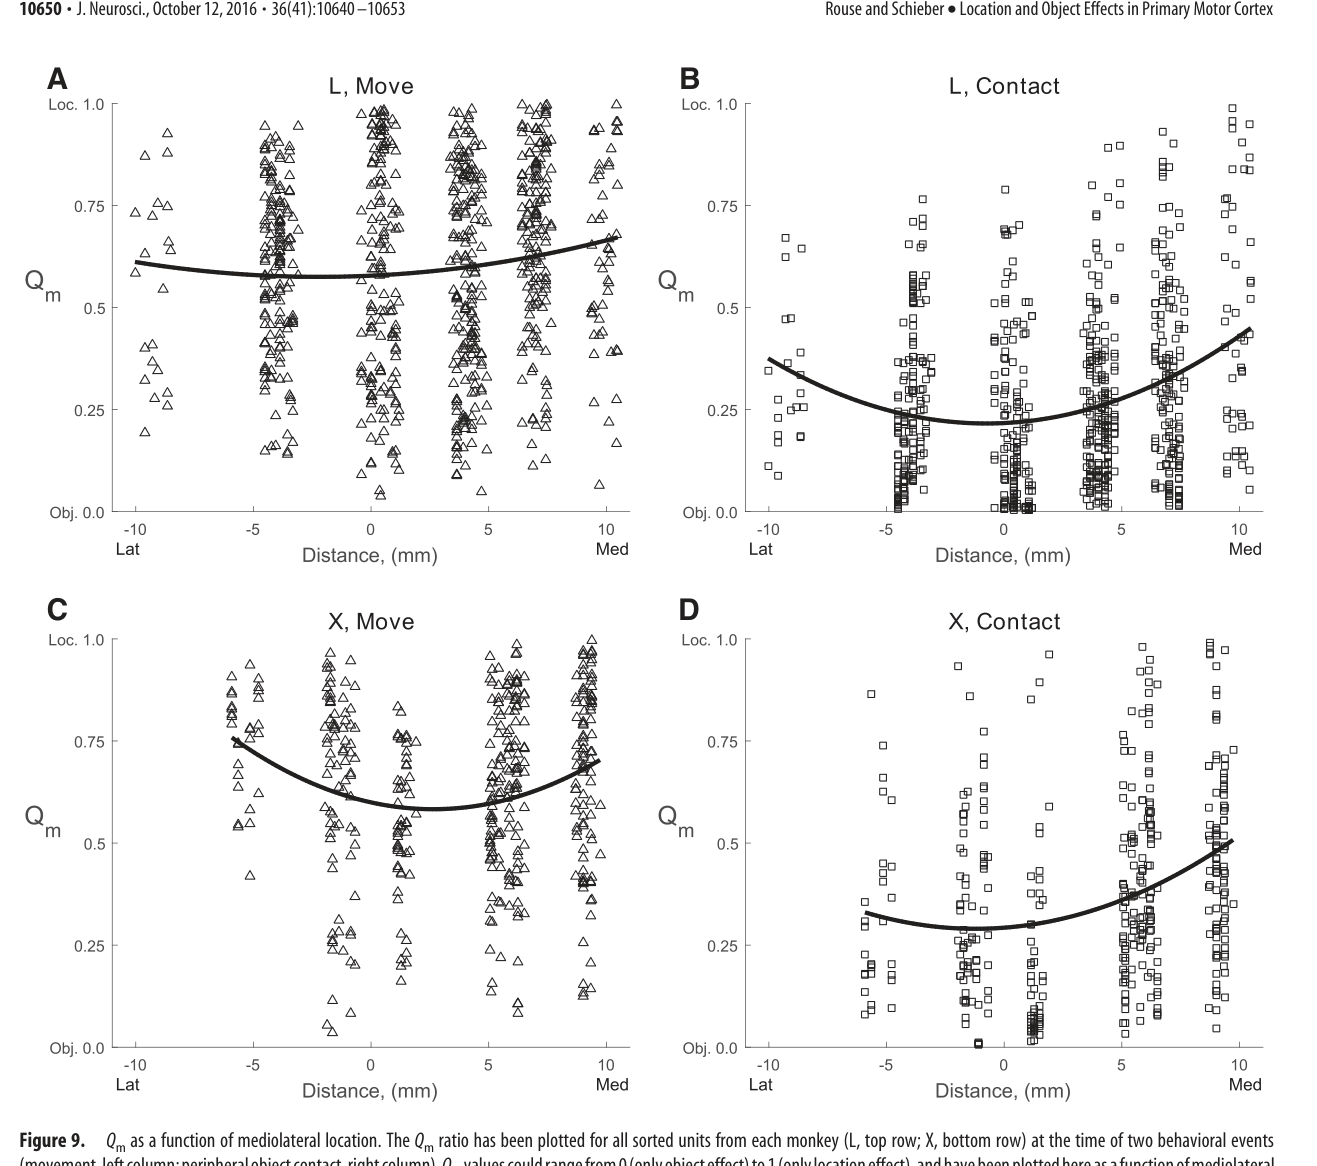
来源:原文 Fig. 9,PDF 第 11 页。
图 9 · Qm 随内外侧位置的变化。 两猴 × 两时间点(movement onset、物体接触),每个点是一个单元的 Qm 对其内外侧记录位置作图,抛物线为二次拟合。拟合在中央触底:物体效应略偏场中央;顶点 Qm 从 0.58 降到 0.22/0.29,再次复现时间交接。这是全文最精细的空间分析——即便有梯度,也只是在"大面积重叠"底色上的轻微倾斜。
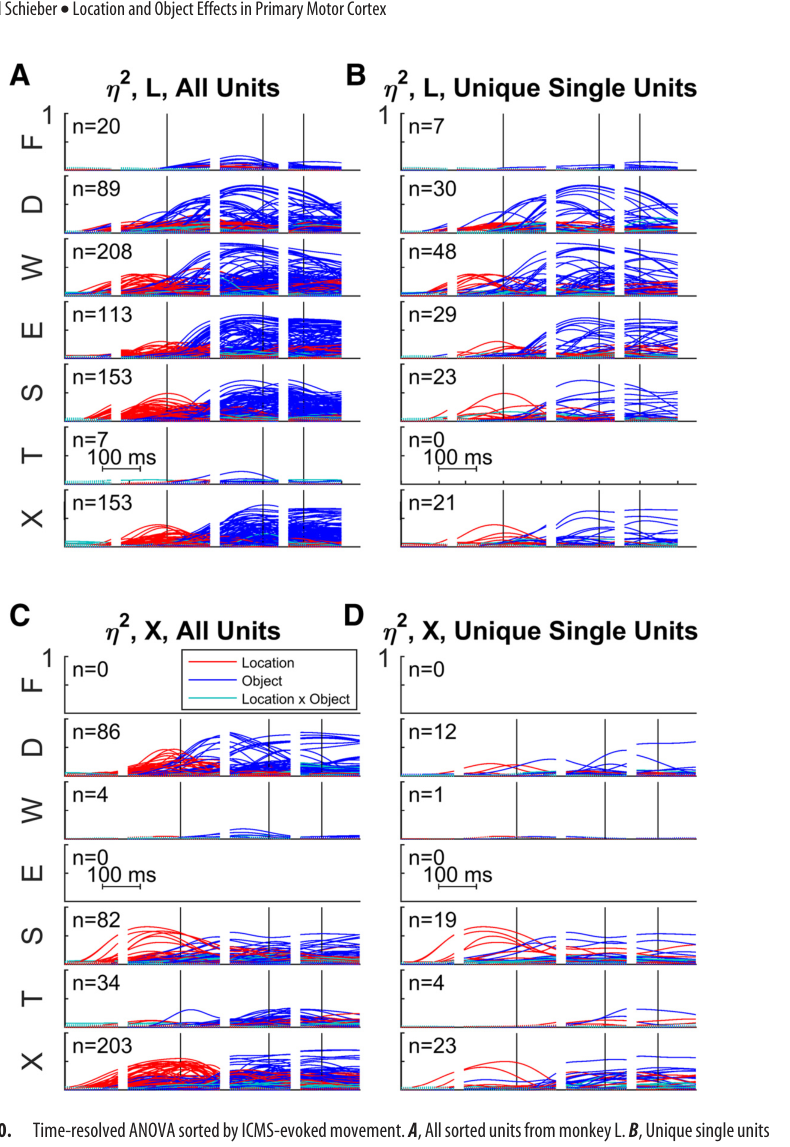
来源:原文 Fig. 10,PDF 第 12 页。
图 10 · 按 ICMS 体部重排的同一数据。 与图8 相同的曲线改为按阈值 ICMS 诱发运动的身体部位分组(F/D/W/E/S/T/X)。D/W 位点有最大的物体效应、S 位点有最大的位置效应,但 D 位点同时有大量显著位置效应、S 位点同时有大物体效应,连 F、T 和无反应的 X 位点也有小效应。这直接检验了"抓握在指区、伸手在肩区"的强版本——不成立。
讨论与解读边界
位置与物体的交叉设计,使研究能够比较各因素及其交互作用随时间的变化。去除跨日重复单元后仍得到相似结果,支持这一时序并非多单元混合造成。ICMS定位也显示,运动诱发部位不能简单预测细胞只处理伸手或只处理抓握。
物体同时决定所需手形和操作方式,因此物体主效应不等同于纯视觉物体表征或纯抓握指令。两类效应的重叠反对严格互斥分区,不否认局部偏好和其他脑区的分工。最大效应量正相关不能单独排除所有专门化亚群,也不能用它推断信息如何在回路中传递。
思考问题
- 若保持物体相同而改变抓握和操作规则,晚期物体效应还能保留多少?
- 在同一任务中同步记录上游顶叶、前运动区与M1,时序交接发生在哪一级?