C03 · A neural population mechanism for rapid learning
Perich, M.G., Gallego, J.A., & Miller, L.E. (2018). Neuron, 100, 964–976. doi:10.1016/j.neuron.2018.09.030
在力场适应中,PMd 相对 M1 的 output-null 活动呈现与学习进程相关的变化,而所拟合的 output-potent 映射保持较好的泛化。视觉旋转任务未出现同样的模型变化。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
快速适应伴随群体活动改变,但变化可能来自局部回路、脑区间映射或上游输入。仅看平均放电变化无法区分这些解释。
研究思路
作者用M1和PMd群体模型比较区内与跨区预测,并将PMd活动分成相对于M1线性读出的potent和null成分。力场与视觉旋转提供两类适应对照。模型稳定性可以限制部分解释,但不能直接证明突触连接未变。
方法
两只雄性恒河猴(猴 C 11.7 kg、猴 M 10.5 kg),双手平面 manipulandum(手柄位置 1 kHz 采样),做带可变 instructed delay(0.5–1.5 s)的八方向 center-out 伸手(半径 8 cm,目标为 2 cm 方块),听觉 go cue 后 1 s 内到达并保持 0.5 s。M1 和 PMd 各植入 96 通道 Utah 阵列,三个 epoch 的数据统一离线分选以保证同一神经元贯穿全程;剔除串扰与高同步 spike 的重复通道。力场为 F = k·R(85°)·ṗ(k = 0.15 N·s/cm),顺/逆时针分 session 施加,猴 C 三 CW 两 CCW、猴 M 四 CCW,共 9 个 CF session;视觉任务为 30° 的位置依赖旋转(光标旋转但动力学不变),猴 C 两 CW 两 CCW、猴 M 三 CCW,共 7 个 VR session。每 session 依次为 Baseline、Force(或 Rotation)、Washout,CF session 各段奖励数分别为 170–225、201–337、153–404。为压掉 savings,CF 与 VR 隔天交替、扰动方向逐日对调、两次暴露之间常隔多天。行为指标取运动开始 150 ms 后的起飞角误差(相对该目标 Baseline 均值)。各 session 隔离出猴 C 137–256 个 PMd、55–93 个 M1 神经元,猴 M 66–121 个 PMd、26–51 个 M1;GLM 分析只用平均放电 > 5 Hz 的细胞,跨猴跨任务合并共 918 个 M1、2221 个 PMd 神经元,其中 Basic 模型显著拟合的为 M1 522/918(57%)、PMd 612/2221(28%)。分析管线:spike 以 50 ms 分箱、方差稳定化后与 100 ms 高斯核卷积成平滑放电率,PCA 得 latent 活动;维度用 Machens 2010 的噪声阈值法估计(解释剩余方差的 95%),M1 中位数 8.5、PMd 中位数 14,后续固定用 M1 8 维、PMd 16 维(5–20 范围内结论不变)。output-potent/null 子空间由 Baseline 数据上拟合的 PMd→M1 线性 MIMO 模型做 SVD 分解得到。GLM 为 Linear-Nonlinear-Poisson 模型,输入包括位置、速度、加速度(卷积 raised-cosine 基函数、前移 150 ms 补偿延迟)加上各群体的 latent 活动,用 Force/Rotation 末段 50% 的稳定 trial 训练(约 10,000 个样本,十折交叉验证),回测适应早期的 Early/Late block,性能用相对伪 R²(rpR2,Full 模型对纯运动学 Basic 模型的似然改进),模型误差定义为其相对 Late 的百分比变化,显著性阈值 p = 0.01。
主要结果
适应行为与经典曲线一致:进力场后起飞角误差在几十个 trial 内衰减到平台,Washout 出现镜像 aftereffect;大量 M1、PMd 神经元的放电形式在适应中发生复杂改变。但群体协方差结构(即 neural manifold)全程稳定——代表 session 里与 Baseline 的相关 M1 r ≥ 0.85、PMd r ≥ 0.93,跨 session 的变化与 Baseline 内随机对半分组的参照分布无法区分。
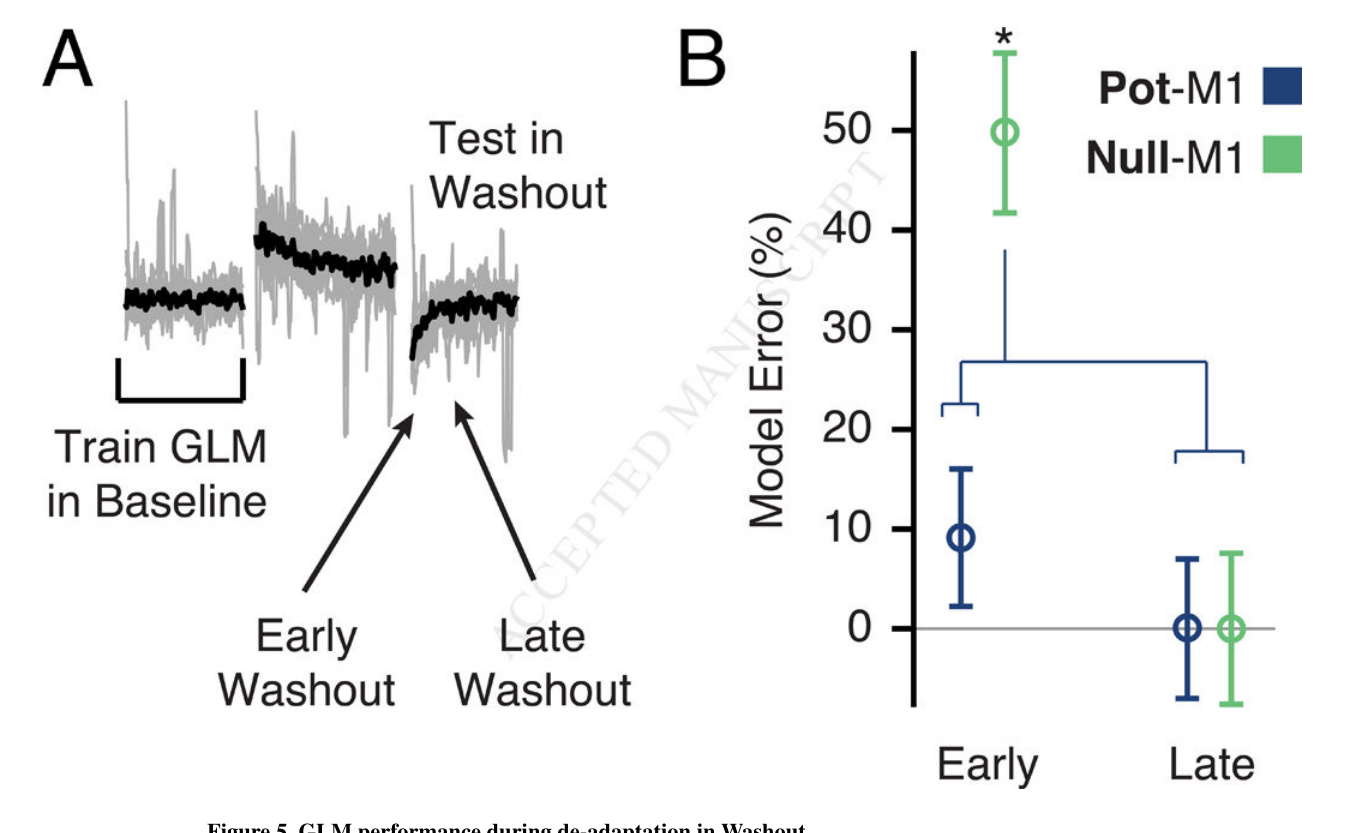
维度估计显示 PMd 流形一致地比 M1 高维(中位数 14 对 8.5,且对记录神经元数稳健),这保证了 PMd 相对 M1 存在 output-null 子空间。判决实验结果干净利落:两个局部模型 M1-M1 与 PMd-PMd 在适应全程泛化良好,Early 与 Late block 的 rpR2 分布几乎重合,单 trial 预测性能的时间曲线平稳得与剧烈变化的行为形成反差——在所测模型和灵敏度下不支持 Hlocal。跨区模型则分道扬镳:Pot-M1 全程准确预测 M1 spike,Null-M1 在适应早期显著恶化(p < 0.01),恶化与恢复的时间过程与行为误差平行;把 potent 与 null 合在一起的 PC-M1 也像 Null-M1 一样随行为失效。换 Factor Analysis、换维度数(5–20)、直接用全部单神经元活动做输入,结论全部不变。Washout 提供了有用的反演检验:用 Baseline 训练的 Null-M1 在 Washout 头 8 个 trial 里预测显著变差、随后 8 个 trial 恢复,Pot-M1 则两个窗口都好——去适应与适应在 Null-M1 上留下互为镜像的痕迹,正好是 Hplan 的签名,同时不支持所设定的 Hmap 预测。
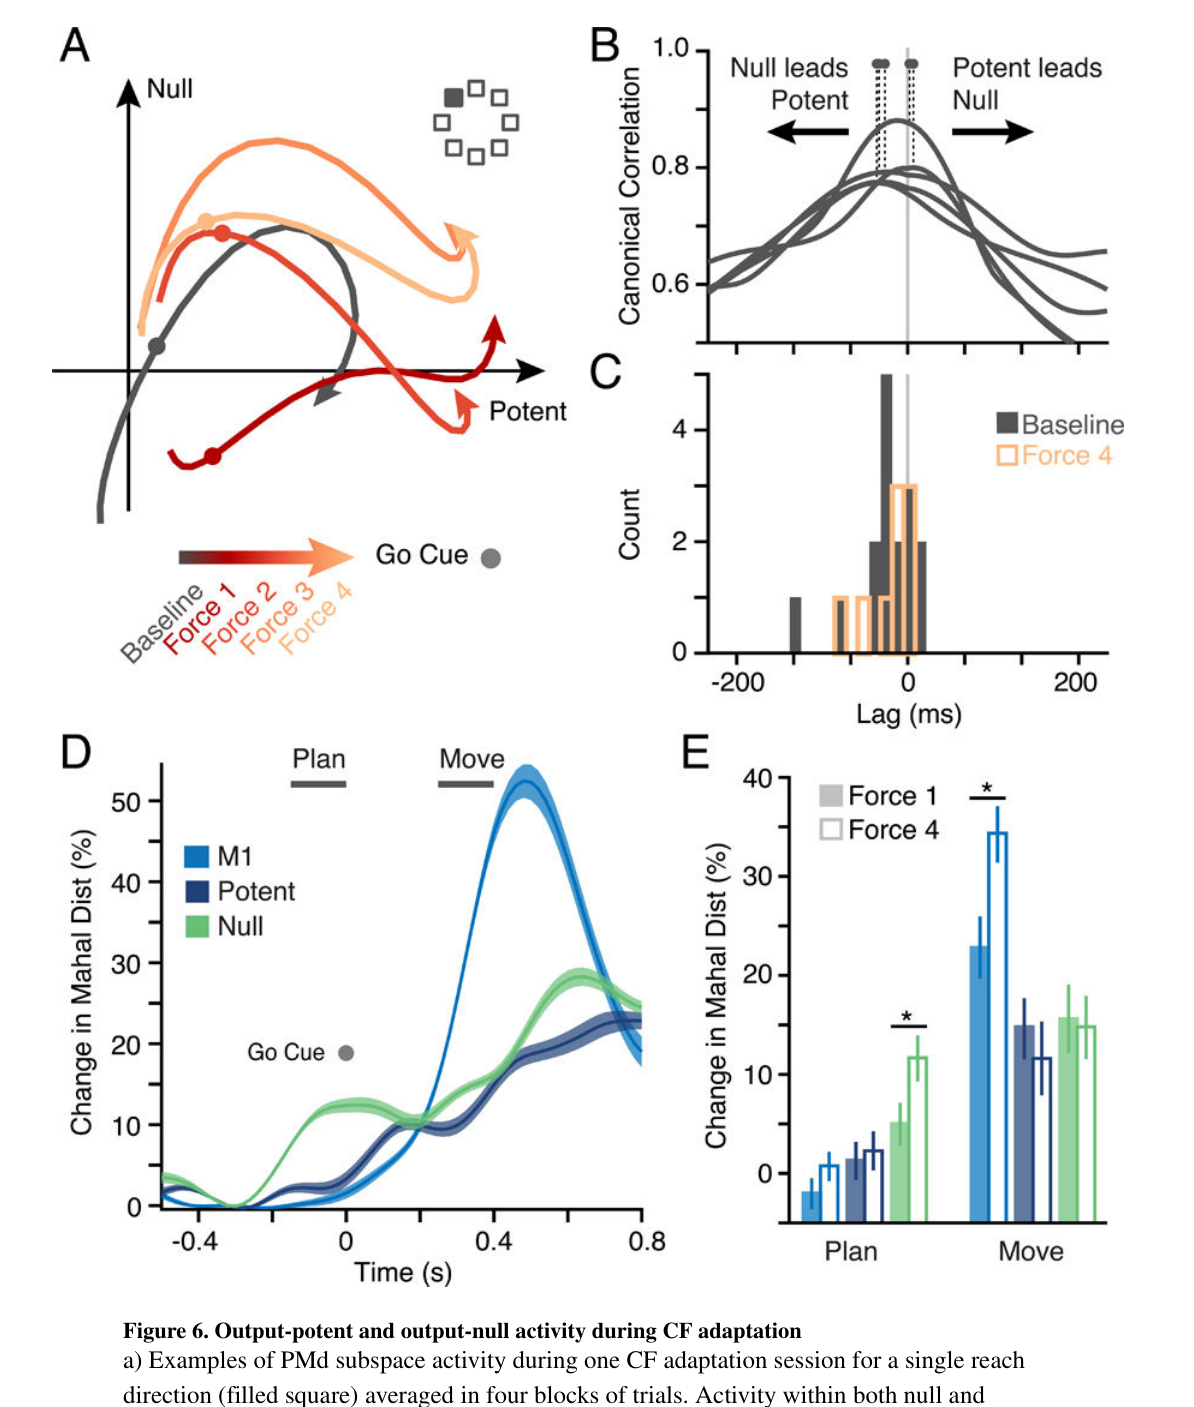
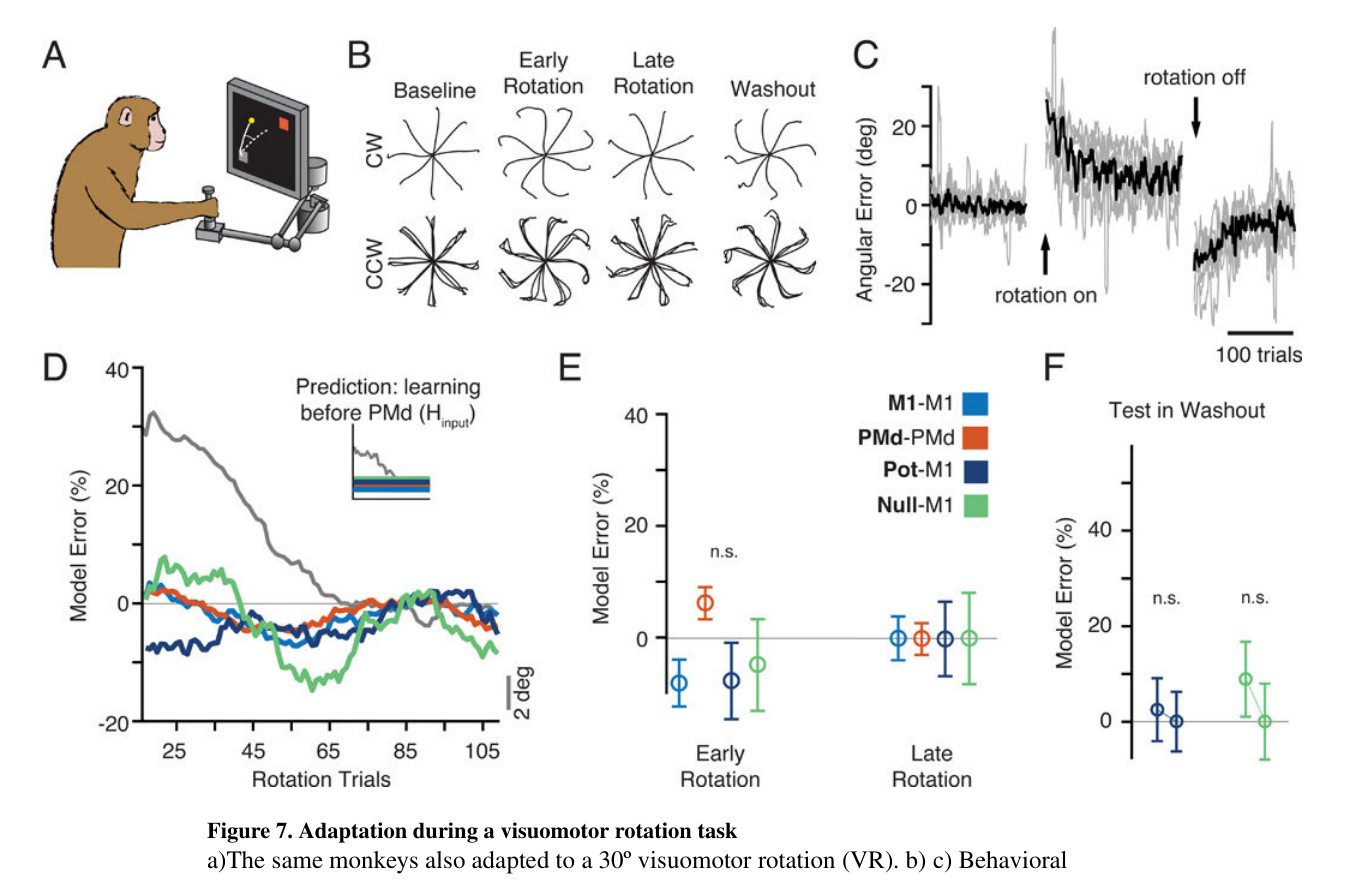
活动的时序结构进一步支持"计划先在 null 空间里改":单方向示例里,go cue 前的 PMd 活动先沿 output-null 轴偏离 Baseline,运动期才在 output-potent 轴上调制(图 6a);CCA 滞后分析显示 output-null 领先 output-potent 平均 35 ms(16 个 session,t-test p = 0.02),且 Force 末段与 Baseline 的滞后分布一致。按 go cue 对齐的 Mahalanobis 距离分析显示,从 Early 到 Late 显著增长的改变集中在 planning 窗口的 output-null 活动(p < 0.05)——计划期变化的确主要发生在零空间里。视觉运动旋转(此处 VR 指 visuomotor rotation)的对照提供了重要区分:行为误差的幅度与时间过程与力场几乎雷同,单神经元同样剧变,但所有 GLM 模型(包括 Null-M1)全程泛化良好,Washout 也未检出相应模型预测性能的变化。在这两种所测适应任务中,Null-M1 的预测下降主要见于 curl field,不能由行为变化这一笼统因素充分解释;结合 Tanaka 2009 的模型,VR 适应发生在 PMd 上游是与结果相容的解释(Hinput),力场适应才走 PMd 的 null 空间(Hplan)。
逐图解读
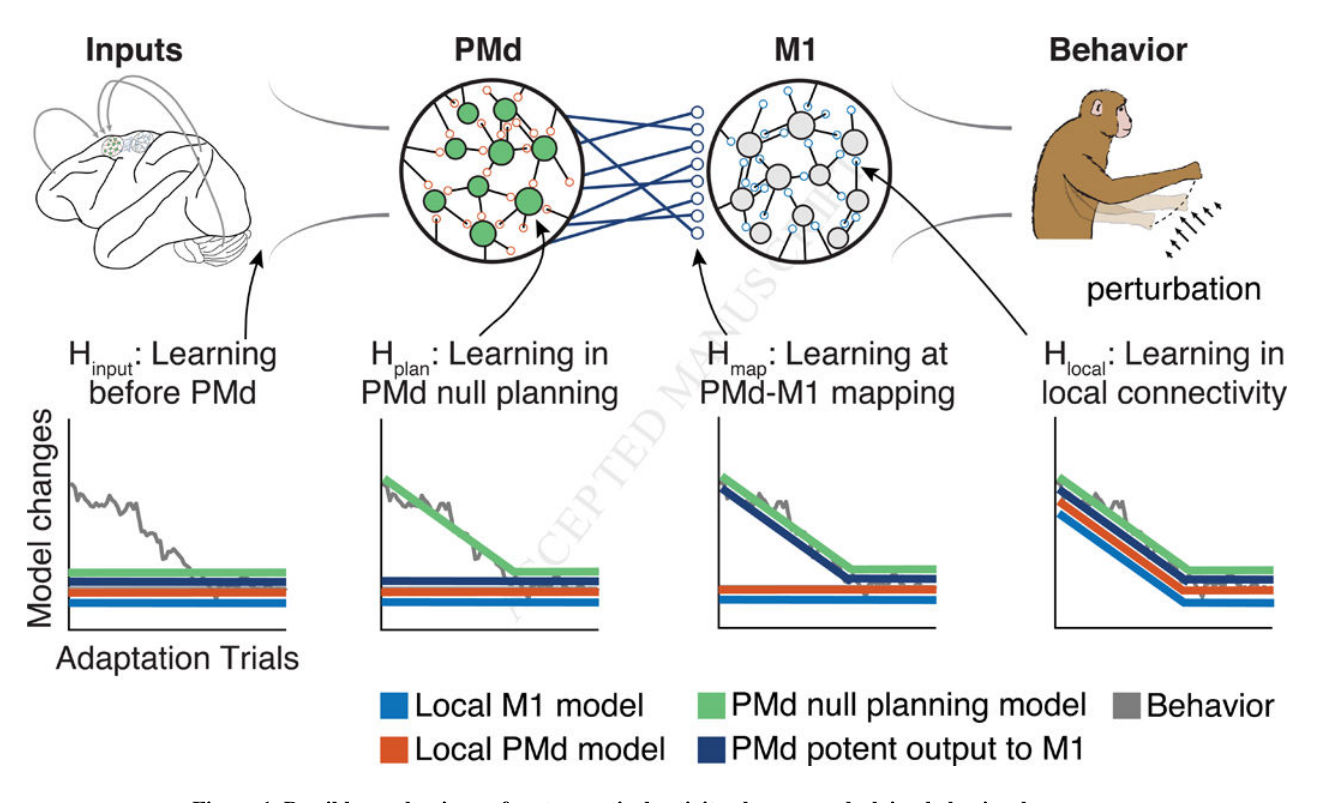
来源:原文 Fig. 1,PDF 第 30 页。
图 1 · 四个假说与四种模型的判决表。 简化层级图:PMd 输入 M1,M1 输出驱动适应后的行为。四个模型分别描述 M1 内部(蓝)、PMd 内部(橙)、PMd→M1 的输出映射(深蓝)、PMd 局部活动与 M1 的关系(绿),每个小插图给出该假说下行为(灰线)与被建模连接性(彩色线)的预期时间过程。Hlocal 预测四个模型全崩;Hplan 预测只有 null→M1 的模型崩;Hmap 预测两个跨区模型崩而局部模型无恙;Hinput 预测谁都不崩。后面每个结果都回到这张表对号入座——把假设写成可判死的形式,是这篇文章方法学的骨架。
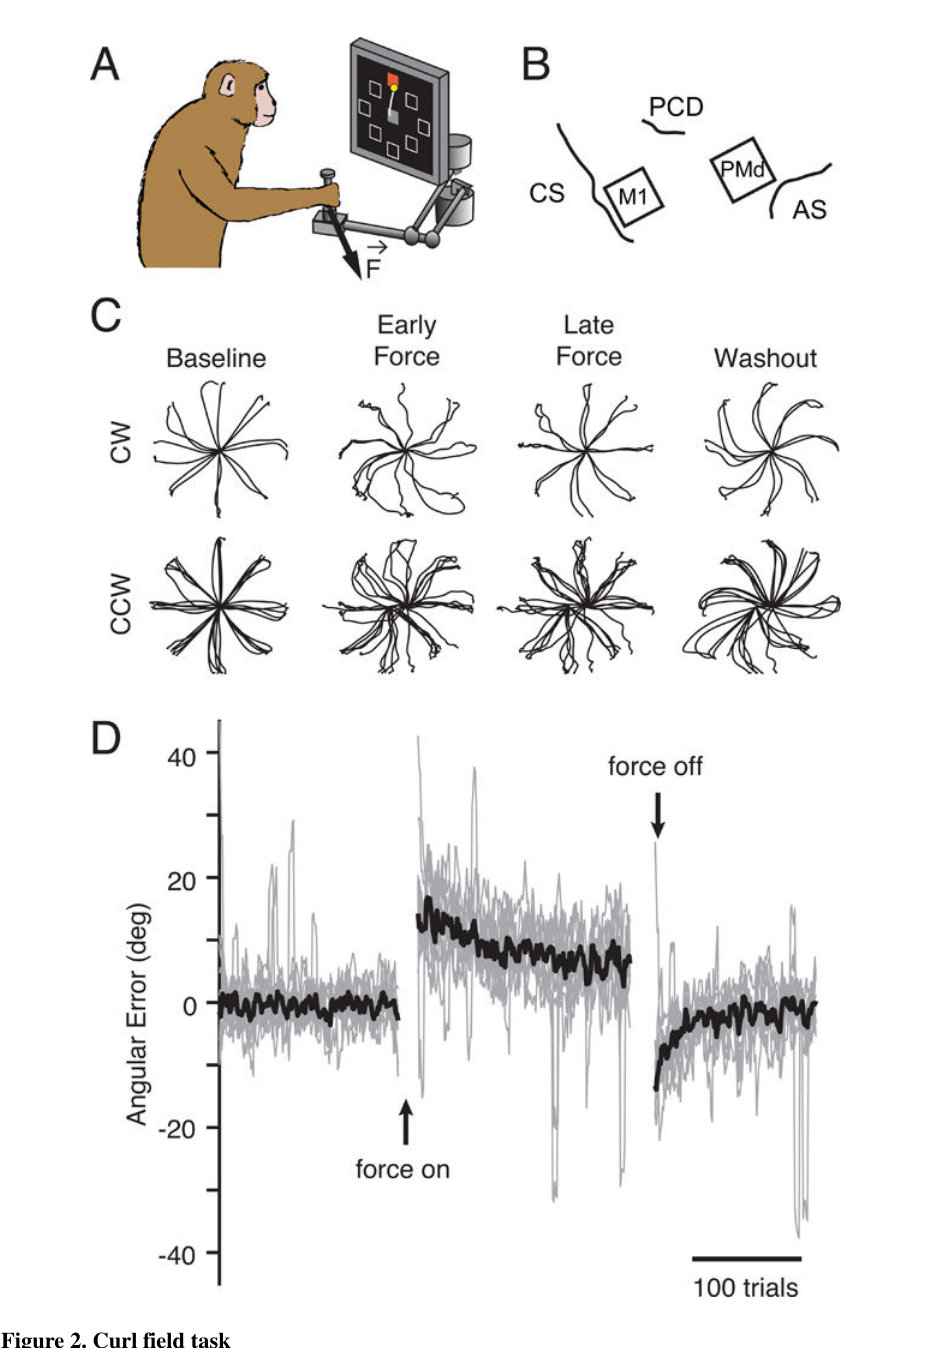
来源:原文 Fig. 2,PDF 第 31 页。
图 2 · 任务、植入与力场适应行为。 (a) 带可变 instructed delay(0.5–1.5 s)的 center-out 任务,这段延迟是后面分析 planning 活动的时间窗;(b) M1 与 PMd 各一个 96 通道 Utah 阵列(CS 中央沟、PCD 中央前凹、AS 弓状沟),双区同时记录是全文方法学的前提;(c) 两个 CW、五个 CCW session 里每个目标的第一次到达轨迹——刚进力场时手被推得东倒西歪;(d) 全部 session 的起飞角误差(浅灰为单 session,4-trial 平滑;黑线为中位数):误差在前几十个 trial 快速衰减,Washout 有镜像 aftereffect。行为复现经典单日适应曲线,为"只在早期测试模型泛化"搭好舞台。
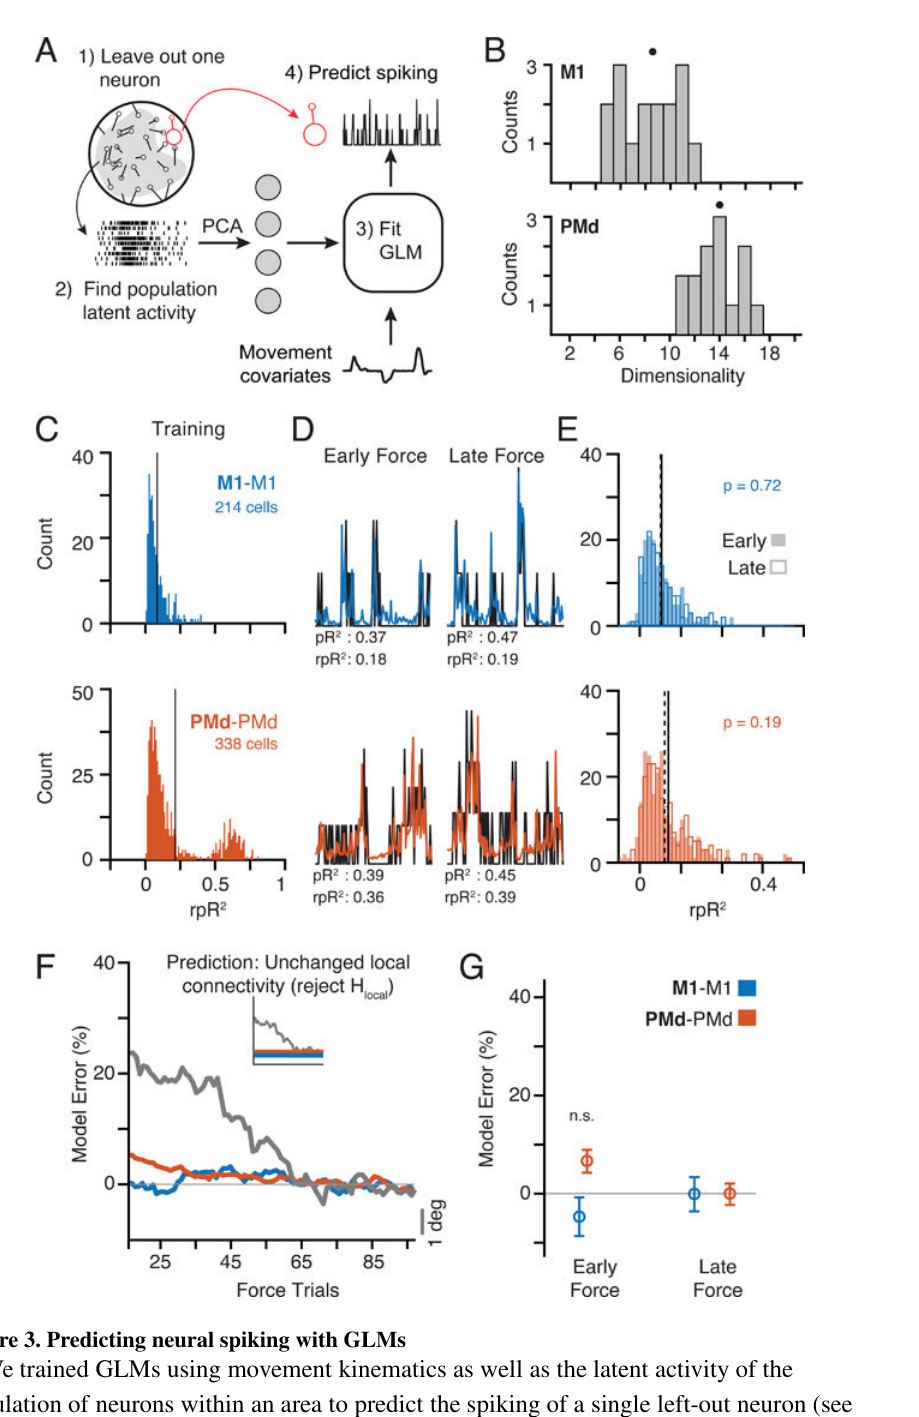
来源:原文 Fig. 3,PDF 第 33 页。
图 3 · 局部模型未见明显变化。 (a) GLM 用运动学加同区群体 latent 活动预测单个 left-out 神经元的 spike;(b) 维度估计直方图,PMd(中位数 14)一致高于 M1(8.5)——PMd 多出的维度正是 output-null 子空间存在的几何前提;(c) 用 Force 末段训练、回测适应早期;(d) 示例神经元在 Early/Late trial 的真实 spike(黑)与模型预测(彩色);(e) Early(空柱)与 Late(实柱)的 rpR2 分布几乎重合;(f) 单 trial 预测性能(30-trial 平滑)全程平稳,与剧烈变化的行为误差(灰)形成反差;(g) 模型误差无显著差异。在所测模型和灵敏度下不支持 Hlocal:力场学习不伴随 M1 或 PMd 内部功能连接的可检出变化。
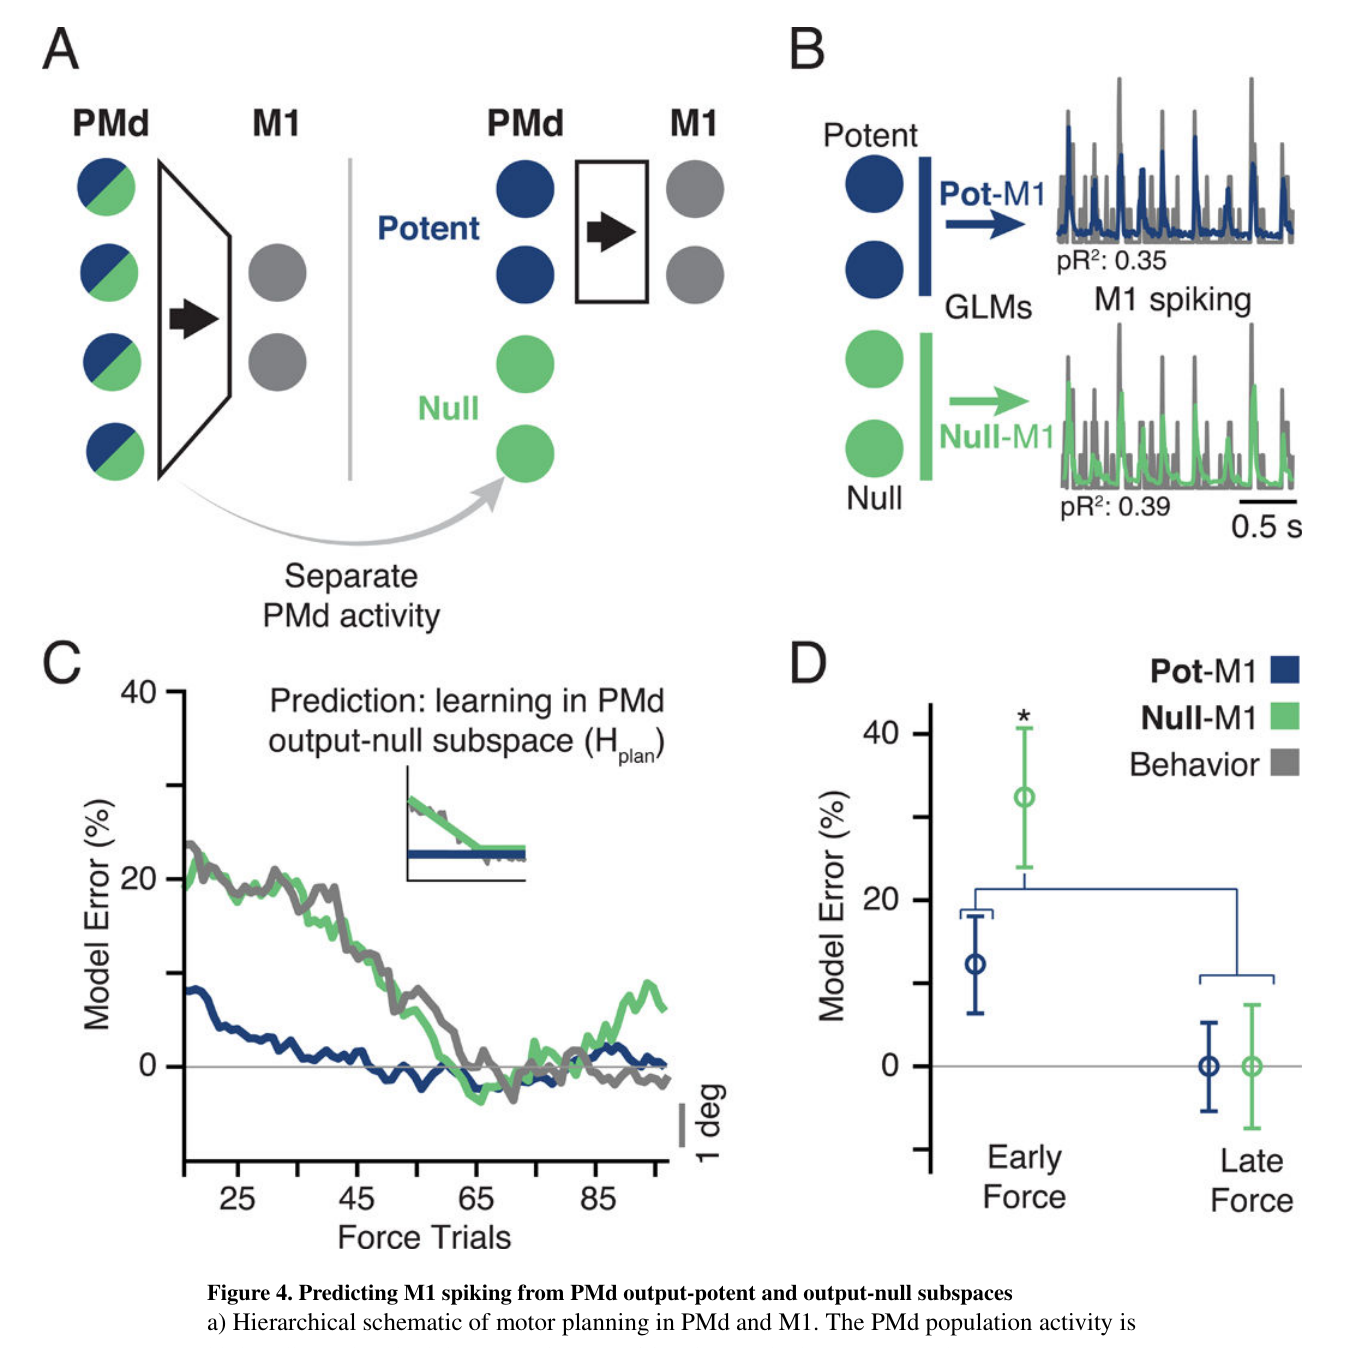
来源:原文 Fig. 4,PDF 第 35 页。
图 4 · 核心结果:potent 稳、null 变。 (a) 层级示意:PMd 维度更高,多出的自由度构成 output-null 子空间,分析把"送往 M1 的输出"与"群体的其他计算"拆开;(b) PMd latent 活动投影到两个子空间后分别作为 GLM 输入预测 M1 spike;(c) 全 session 时间过程——Pot-M1(蓝)全程平稳,Null-M1(绿)的预测误差在适应早期恶化、随行为改善同步恢复,只有它的时间曲线与行为平行;(d) Early/Late 定量比较,仅 Null-M1 显著恶化(p < 0.01)。全文的一句话就在这张图里:PMd 送往 M1 的映射没变,变的是 PMd 在零空间里的活动。
来源:原文 Fig. 5,PDF 第 37 页。
图 5 · Washout 的反演检验。 用 Baseline 数据训练 GLM、预测 Washout 早期 trial——两者动力学环境相同、只是适应状态不同。结果只有 Null-M1 在头 8 个 trial 里预测显著变差(p < 0.01),随后 8 个 trial 恢复到 Baseline 模型的水平;Pot-M1 两个窗口都好。适应让 Null-M1 失效、去适应让它再失效一次,一来一回把 output-null 活动与学习状态的捆绑关系钉得很紧,也说明 Baseline 的 null→M1 关系在适应后被完整恢复。
来源:原文 Fig. 6,PDF 第 38 页。
图 6 · 计划先在零空间里变。 (a) 单个 reach 方向按 trial 块平均的 PMd 子空间活动(黑为 Baseline,红到橙为适应过程):go cue 前的活动先沿 output-null 轴偏离,运动期才在 output-potent 轴上出现调制;(b) CCA 在不同时间移位下比较两个子空间,五个示例 session 的峰相关都落在零点左侧;(c) 全部 16 个 CF+VR session 的峰滞后直方图平均 –35 ms(t-test,p = 0.02),Force 末段(红)分布与 Baseline 一致——null 领先 potent 的次序不因学习而改变;(d) 按 go cue 对齐、跨 session 平均的归一化 Mahalanobis 距离显示 Late 适应期 M1 与两个 PMd 子空间的神经状态都偏离 Baseline;(e) 把 planning 与 movement 窗口拆开比较,Early(实柱)到 Late(空柱)显著增长的只有 planning 窗口的 output-null 活动(p < 0.05)。配合图 4,结果支持准备活动先调整、再经相对稳定映射影响执行的模型,但尚非直接因果证明。
来源:原文 Fig. 7,PDF 第 40 页。
图 7 · 对照:视觉旋转下谁都不变。 同两组猴子适应 30° 视觉旋转(a–c),行为误差的幅度与时间过程和力场几乎雷同,单神经元活动同样剧烈改变,协方差同样稳定——但 (d, e) 所有 GLM 模型包括 Null-M1 全程泛化良好(所有比较 p > 0.01),(f) Washout 里也未检出相应模型预测性能的变化。这张图是全文最重要的对照:Null-M1 的失效不是行为变化的平凡后果,而是力场学习特有的。结合 Tanaka 2009 的计算模型,VR 适应更可能发生在 PMd 上游(顶叶一带),对应 Hinput;这也与 Krakauer 1999 以降运动学、动力学内部模型分离的心理物理传统严丝合缝。
讨论与解读边界
这项研究以跨阶段预测检验几种学习假说。它支持一种群体层面的解释:在所研究的快速力场适应中,准备活动的调整可与相对稳定的下游统计映射并存。output-null 是相对于基线拟合的 PMd→M1 线性映射定义的子空间,并非一组没有解剖输出的神经元。Null-M1 的跨阶段预测下降也不意味着该子空间在任意时间都与 M1 无关。
统计映射稳定不能证明突触权重不变,领先约35 ms也不能单独确定因果传递方向。两个子空间的活动均可变化;主要学习差异集中于准备期 output-null,不是全部学习痕迹都只在那里。视觉旋转的阴性结果针对模型泛化,不否认行为后效应。上游学习是与结果相容的解释,尚未定位到特定脑区。
思考问题
- 若在相同数据上估计非线性或时变 PMd→M1 映射,映射稳定的结论是否保持?
- 对准备期 output-null 活动施加定向扰动,是否会改变适应速率而不立即产生运动?