B03 · An intracortical brain-machine interface based on macaque ventral premotor activity
De Schrijver, S., Garcia Ramirez, J., Iregui, S., Aertbeliën, E., De Schutter, J., Theys, T., Decramer, T., & Janssen, P. (2026). Scientific Reports, 16, 8407. doi:10.1038/s41598-026-38536-1
在两只猕猴的二维 BMI 任务中,PMv/F5c 可提供有效的在线控制信号。与 M1、PMd 的比较受到有效通道数、任务和辅助算法影响,不能概括为所有条件下等效。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
M1之外的信号源能否支持闭环控制,是扩大BCI适用范围的重要问题。PMv参与抓握与动作观察,因此是值得直接比较的候选区域。
研究思路
在同一批动物和任务中轮换使用M1、PMd和PMv信号,并尽量统一解码参数。观察训练、主动控制、光标或虚拟身体及辅助条件的比较,用于评估各区域的表现和由观察转入控制时的表征变化。
方法
两只雄性恒河猴(8–10 kg,6–8 岁),头固定,对侧手操作,同侧手臂约束。三枚 96 通道 Utah 阵列(电极长 1.5 mm、间距 400 μm)以立体坐标加解剖标志植入 F5c、F2(PMd)与 M1 手区,术后 3T MRI(0.6 mm 分辨率)验证位置,M1 手区另用电刺激诱发对侧手运动确认。信号经 192/256 通道 Cerebus 采集,750 Hz 高通、30 kHz 采样,阈值 crossings 直接按多单元用,不做 spike sorting。基础任务是八方向 center-out 触屏任务(1500 ms 内触靶得奖),在其上衍生三个变体:Parallel task(猴子做 center-out 的同时一个橙色 cursor 也从中心走向外周靶,两者都到位才奖励,手比 cursor 快);Passive cursor task(手不动,只观察 cursor 运动);Passive avatar task(cursor 换成虚拟 Kinova Gen3 机械臂,屏幕右侧第一人称式呈现)。每个 session 先做约 200 个训练相 trial(每靶 25 次),用其中一个区域的神经数据训练解码器,然后进入解码相。成功标准:cursor/avatar 进入靶窗(半径 2.75 cm,avatar 任务 6 cm)并停留 500 ms,时限 cursor 任务 4 s、avatar 任务 7.5 s。解码管线是 PSID(Preferential Subspace Identification)加非线性扩展:50 ms bin 的阈值穿越率先按与运动速度的 Pearson 相关(阈值 0.3)筛出 motion selective 通道,PSID 提取行为相关的低维潜状态,RBF 核(Nyström 近似保证实时性)捕捉非线性,再由 ridge 回归输出 x/y 速度,50 ms 步长更新。在线期间用 ReFit 式的 intention-based 再训练(把预测速度朝实际靶方向旋转后重新拟合),cursor 任务每 16 个 trial、avatar 任务每 8 个 trial 触发一次,200-trial FIFO 数据集后台更新。猴 V 完成 42/33/39/26 个 session(Parallel/Passive cursor/Passive avatar/Assisted avatar),猴 L 完成 48/39/21/21 个,平均每区域 11–12 个 session。眼动仪全程监控注视。
主要结果
核心结论是 F5c 撑得起闭环控制,而且不输 M1。Parallel 任务里猴 V 用 M1 和 PMd 头三个 session 就超过 55% 成功率,PMv 起初明显落后(相对 M1 χ²=55.79、相对 PMd χ²=191.81,均 p<0.001),但随后逐周爬升,到后半段甚至反超 M1(p=0.0095),与 M1 一起稳在 50% 以上;Passive cursor 任务里 PMv 的进步更醒目,后半段同时优于 M1 和 PMd(p<0.001)。猴 L 整体成绩更高,PMv 在 Parallel 任务后半段追平 M1(p=0.6516)、略逊于始终强势的 PMd。到达速度上三个区域在猴 V 无显著差异,猴 L 用 PMd 略快(比 M1 快 87 ms、比 PMv 快 237 ms)。也就是说,"手完全不动的纯观察任务"里 PMv 也能被解码出足够的运动信息,为不依赖实际运动的解码器初始化提供了动物实验依据;临床适用性仍需另行验证。
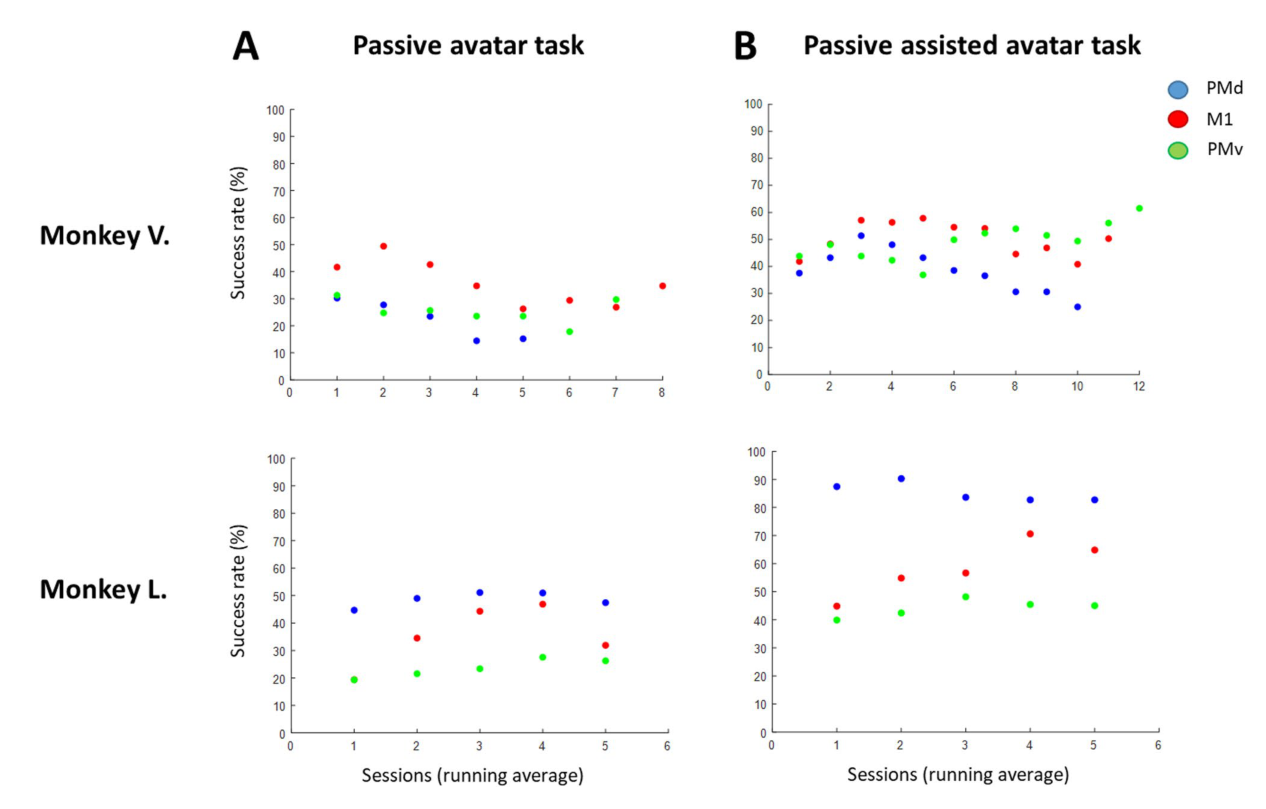
但故事有两个重要的转折。其一是 avatar 任务:换成机械臂 avatar 后所有区域的成绩都明显掉下来(这还是在时限放宽到 7.5 s、靶窗放大到 6 cm 的情况下),与"更拟真的效应器应更能募集镜像系统"的预期相反;猴 V 的 PMv 仍与 M1 相当(RVGF 辅助下约 60% 成功率,p=0.58),猴 L 的 PMv 则显著落后。作者归因于虚拟环境缺乏双眼视差等真实深度线索。其二是混淆因素的诚实拆解:三个阵列虽然硬件相同,motion selective 通道数却差异很大(猴 V 平均 PMv 33、M1 49、PMd 23 个;猴 L 为 29/52/45 个),F5c 成绩随月份的上升很大程度上是 F5c 阵列信号本身在改善(术后早期不稳定),而非猴子学会了用 F5c 思考。信号质量指标(平均放电、跨通道变异系数、Fano 因子)与成绩的相关在两只猴间不一致,未发现跨动物一致的简单关联,但不能因此排除信号质量及通道数量的影响。
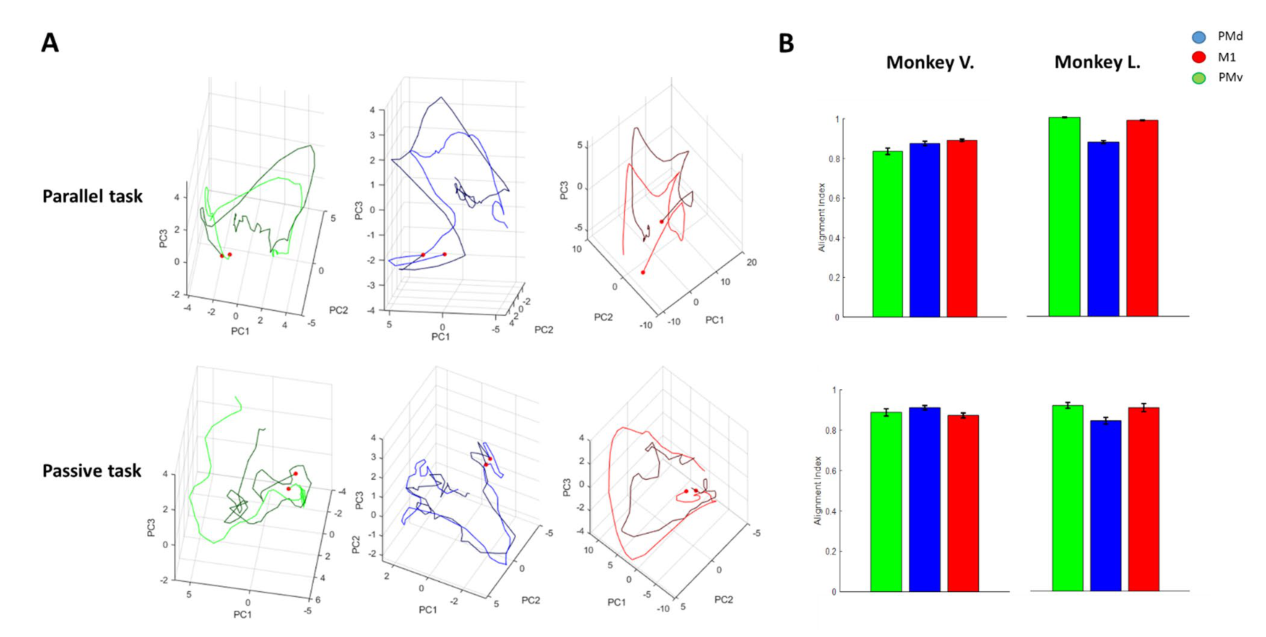
神经活动层面,从被动观察到主动闭环控制,三个区域的群体表征都出奇地稳。单电极 d' 在两相之间的相关在 Parallel 任务里很高(猴 L:PMv r=0.87、PMd 0.80、M1 0.88),但在手不动的 Passive cursor 任务里明显降低(0.12–0.25)——手在动的时候相关性高,说明一部分"稳定"来自本体感觉与运动的持续耦合。多数位点的方向选择性变化不大,但 Passive cursor 任务中被"招募"(选择性增强)的位点比 Parallel 更多,且 PMv 的选择性变化显著大于 PMd,与 M1 相当——PMv 和 M1 对闭环 BMI 的适应性都比 PMd 强。子空间对齐分析(alignment index,借用 Elsayed 2016 的方法)显示训练相与解码相的前十个 PC 子空间高度重叠,三个区域、两种任务都是如此:解码器利用的群体动力学和被动观察时的几乎同一套。
逐图解读
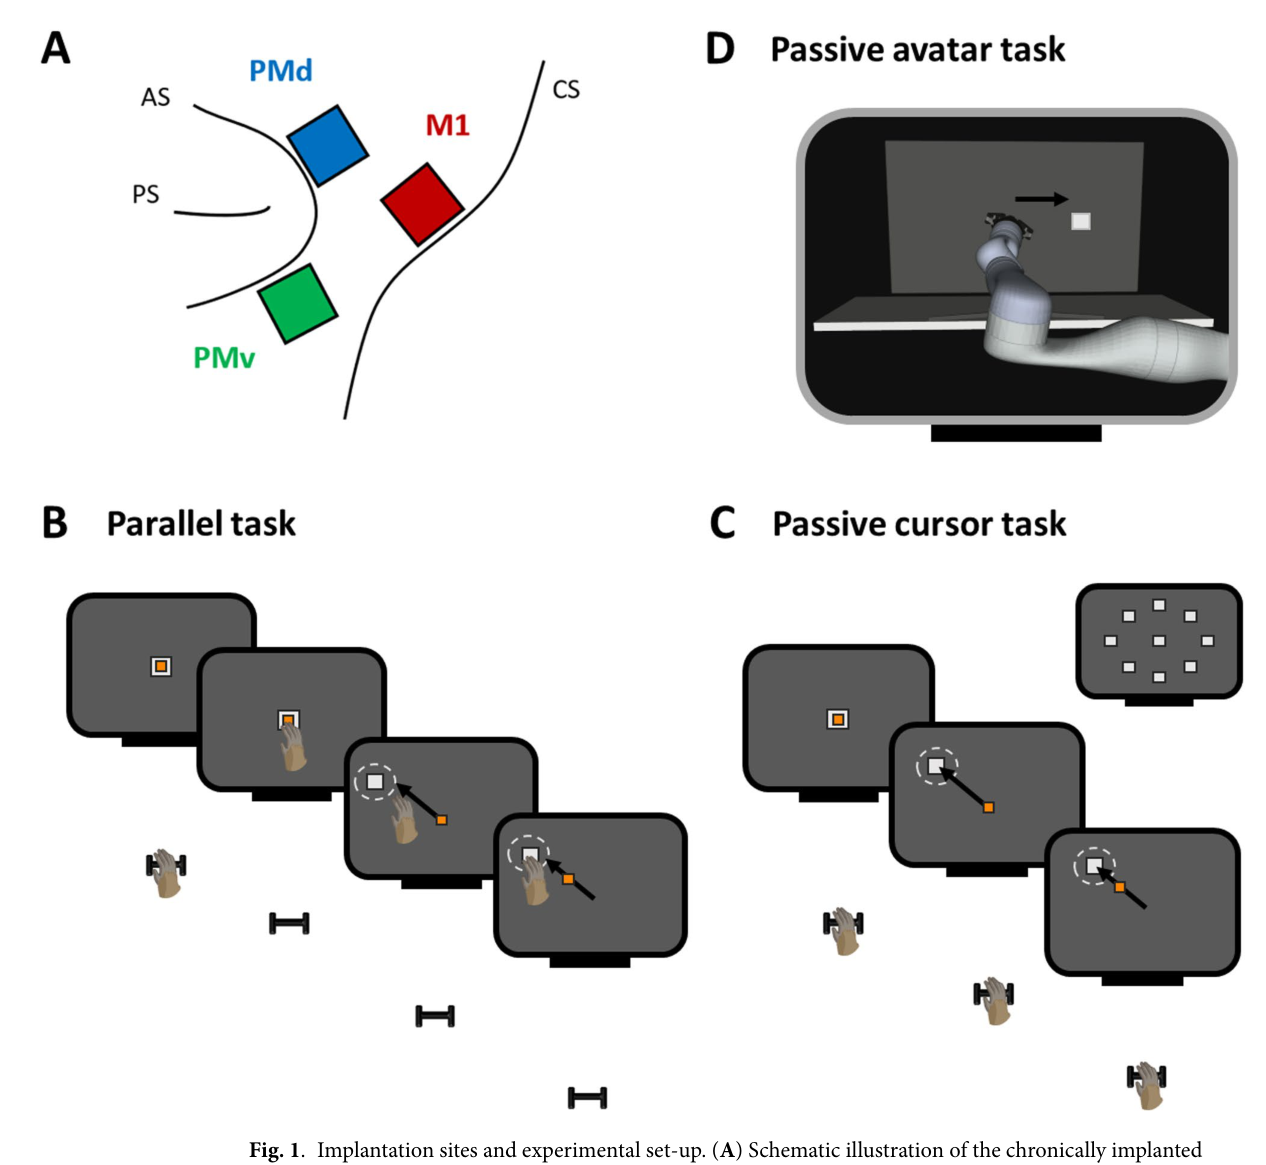
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 植入位点与三个任务。 (A) 三枚 Utah 阵列的位置示意:F5c(绿)、F2/PMd(蓝)、M1(红),标出主沟、弓状沟与中央沟——同半球、同手术、同硬件,这是"公平比较"的物理基础。(B) Parallel 任务时序:猴子触摸中心靶后中心靶消失,橙色 cursor 与猴手同时向外周靶移动,两者都到达才有奖励。(C) Passive cursor 任务:手不动,只看 cursor 走 center-out,插图标出中心靶和八个外周靶。(D) Passive avatar 任务:cursor 换成虚拟 Kinova 机械臂。三个任务的层级很清楚——有手有 cursor、只有 cursor、只有 avatar——分别测试"执行+观察"和"纯观察"两种信号,以及拟真效应器是否加分。读这张图时注意靶窗(白色虚线圈)的位置,它定义了后面所有成功率的判定标准。
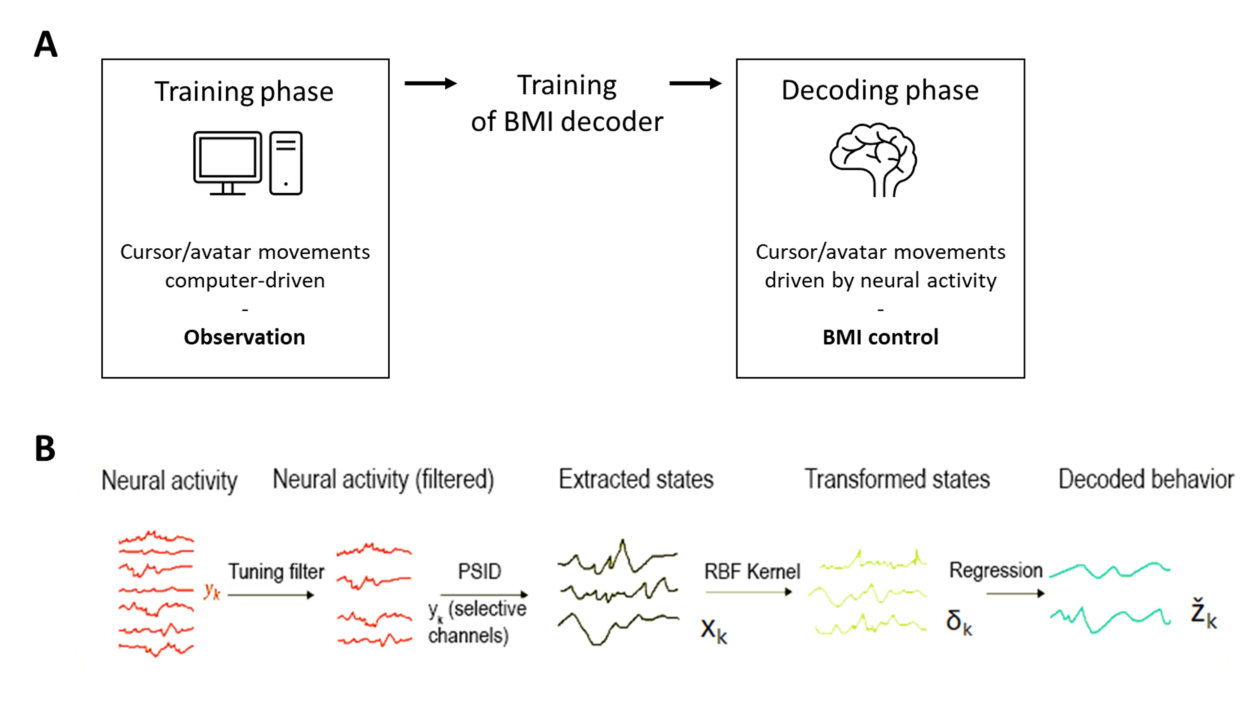
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · BMI 范式与解码管线。 (A) 两相结构:训练相(计算机驱动的 cursor/avatar 运动,收集神经数据)→ 离线训练解码器 → 解码相(实时神经活动驱动运动)。(B) 解码管线:多单元阈值穿越率按 50 ms 分箱,先筛 motion selective 通道(与速度的 Pearson 相关 ≥0.3),送入 PSID 提取行为相关的低维潜状态,RBF 核映射捕捉非线性,最后 ridge 回归输出 cursor/avatar 的二维速度。两个技术选择值得记住:PSID(Sani 2021)把"与行为相关的神经动力学"从总方差里分离出来,是 D 系列动力学语言在解码端的落地;不做 spike sorting 直接用多单元,则说明本文控制方案不要求分离到单神经元;是否适用于临床记录条件还需专门验证。这些步骤构成本文的实现方案;不能把方法描述视为各步骤均完成了独立消融验证。
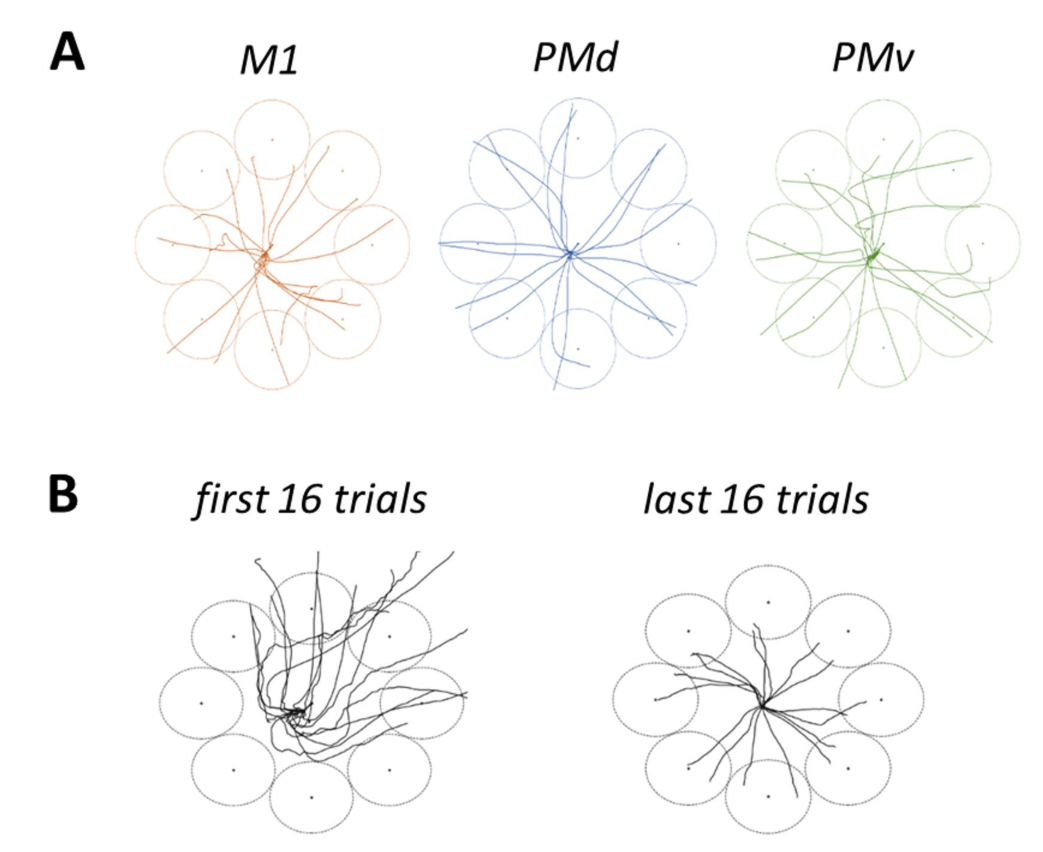
来源:原文 Fig. 3,PDF 第 7 页。
图 3 · 闭环轨迹:区域间可比,session 内快速改善。 (A) 每个区域一个代表 session 的 16 条 cursor 轨迹(八个方向各两条),从中心射向八个靶点,圈为靶窗——三个区域都能把 cursor 像样地送进靶窗,直观地宣告 F5c 并非玩具。(B) 同一个 PMd session 的前 16 个 trial 与后 16 个 trial:开始时解码近乎 chance(cursor 四处游走),七次在线 ReFit 再训练之后轨迹明显收束。这张示例图展示了在线再训练后的性能改善,尚不足以证明再训练在所有条件下不可替代,也提醒读者:每个 session 的成绩都受到解码器、在线再训练和动物控制策略的共同影响,不是静态解码器的性能。
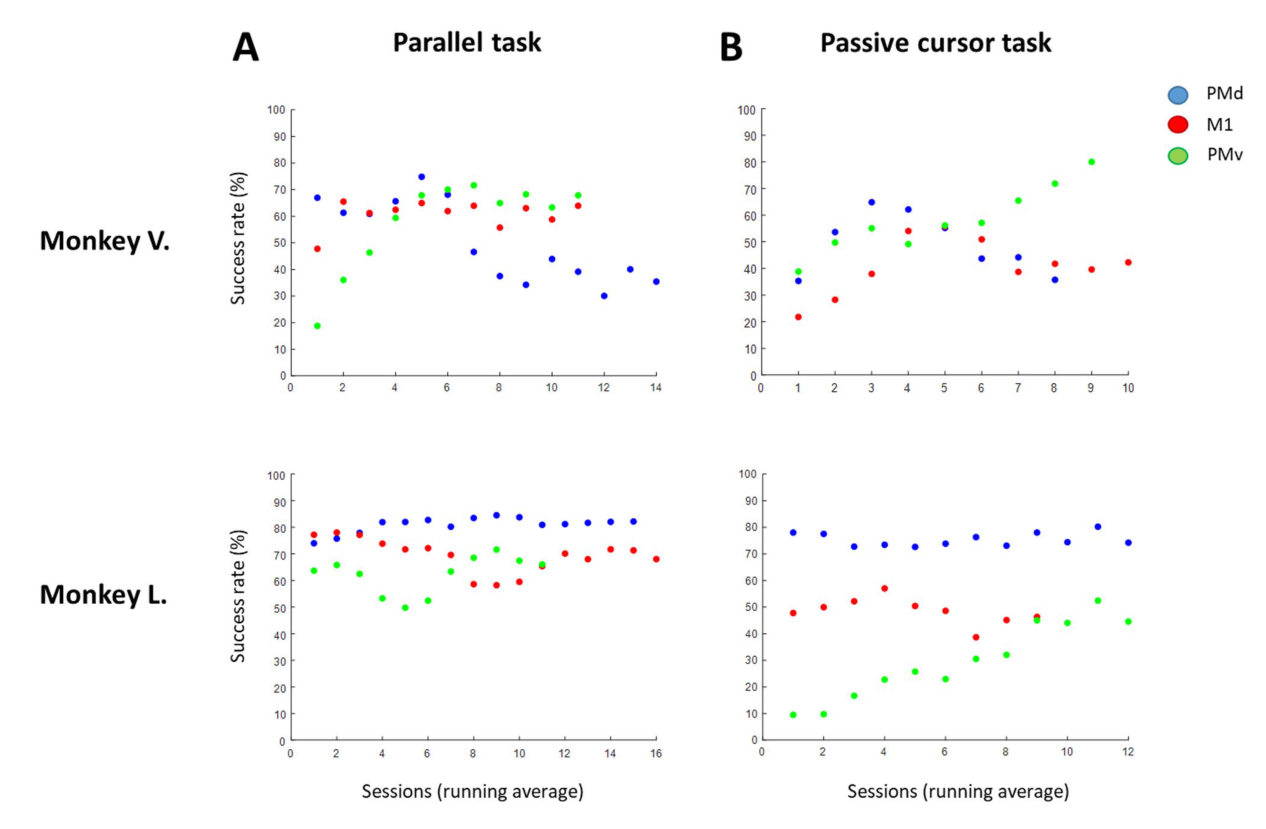
来源:原文 Fig. 4,PDF 第 8 页。
图 4 · Cursor 任务的长期成绩曲线。 (A) Parallel 任务、(B) Passive cursor 任务中每只猴的成功率滑动平均(三 session 窗)。蓝 PMd、红 M1、绿 PMv。值得盯住绿色曲线的形状:两猴、两任务里 PMv 几乎都是"低开高走"——Parallel 任务猴 V 起步远落后于 M1/PMd,后半段反超 M1;Passive cursor 任务里 PMv 后半段同时优于两个老牌区域。红色(M1)和蓝色(PMd)则相对平稳。但作者在讨论里指出:绿色曲线的上扬与 F5c 阵列 motion selective 通道数逐月增加的时间过程纠缠在一起,学习效应和信号恢复无法完全拆开。这张图是全文的主要结果,也是全文最大的混淆所在。
来源:原文 Fig. 5,PDF 第 9 页。
图 5 · Avatar 任务:拟真没有加分。 (A) Passive avatar 任务(纯脑控)与 (B) RVGF 辅助版本的成功率曲线,配色同图4。两件事可以看出:avatar 任务的绝对成绩全面低于 cursor 任务(时限放宽到 7.5 s、靶窗放大到 6 cm 仍然如此),RVGF 共享控制把三个区域都拉抬一截(猴 V 的 PMv 约 60%,与 M1 持平)但拉不回 cursor 任务的水平。这与"镜像系统对机械臂动作也有反应、更拟真的效应器应该更利于 PMv"的直觉相反,作者把责任推给虚拟环境缺失双眼视差等深度线索。对我来说这是全文最有信息量的阴性结果之一:BMI 里"拟真 avatar 更好"这个流行假设(B02 里 Nicolelis 组也这么主张)在本文特定显示与控制条件下未获支持。
来源:原文 Fig. 6,PDF 第 10 页。
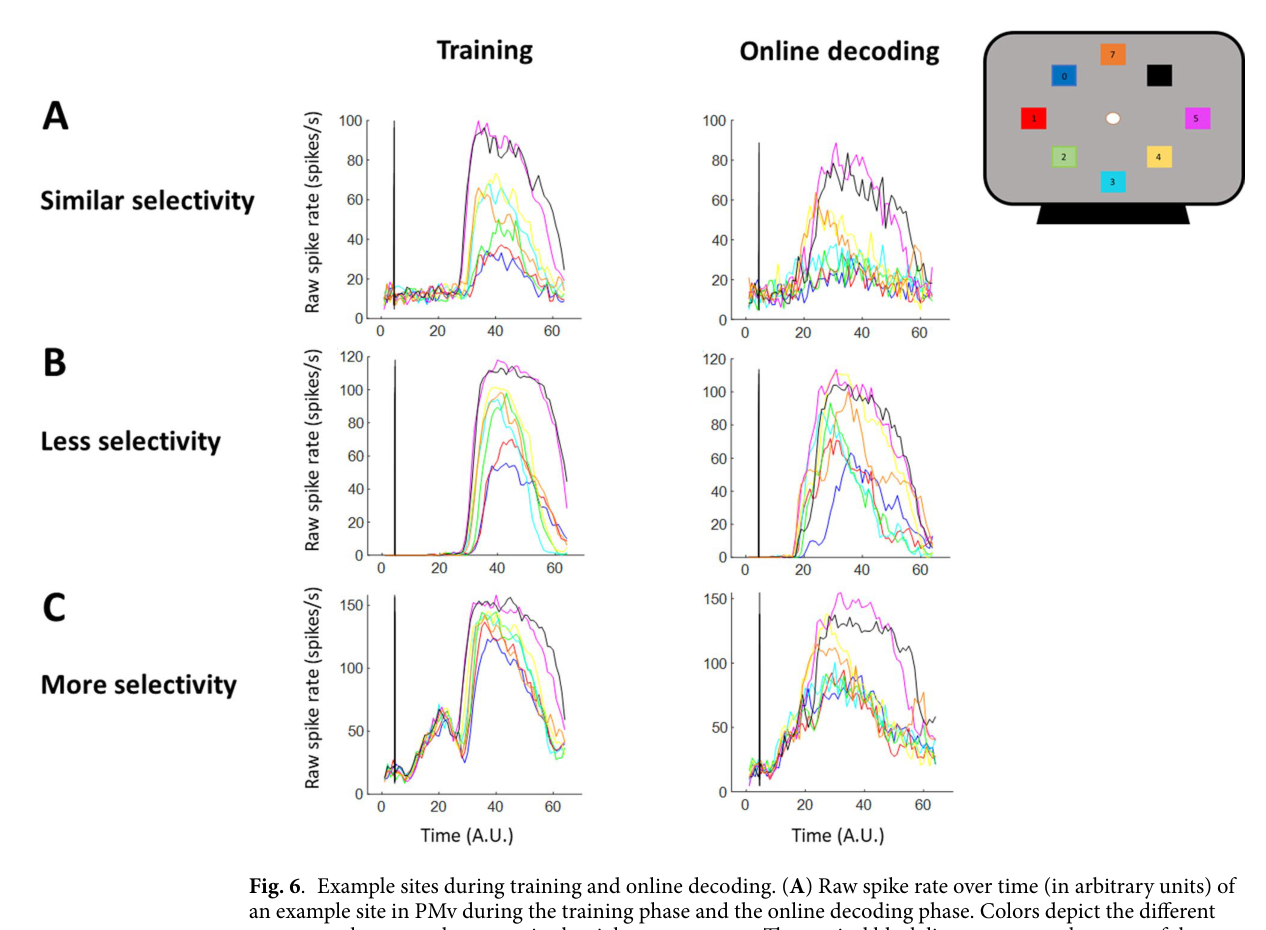
图 6 · 单个位点从观察到控制的转变。 三个例子位点的放电率时间过程(时间归一化为任意单位),颜色对应八个靶方向,黑线是 cursor 运动 onset,上下两排分别是训练相与解码相。(A) PMv 位点:训练相偏好向右的运动(d'=0.66),解码相几乎原样保持(d'=0.68);(B) M1 位点:0.35 降到 0.25,偏好还在但变浅;(C) 另一个 M1 位点:0.33 升到 0.46,方向选择性反而增强。三个例子分别对应"保持、减弱、招募"三种命运,正文统计表明多数位点属于"保持",少数被招募的位点在 Passive cursor 任务里更多——手不在场时,皮层反而更依赖视觉运动信号来支撑控制。
来源:原文 Fig. 7,PDF 第 11 页。
图 7 · 群体动力学:训练相与解码相共享一个子空间。 (A) 猴 V 的一个代表 session,用训练相数据生成 PC,把训练相(浅色)与解码相(深色)的群体轨迹投到同一个 3D 神经空间,红点是轨迹起点——每个区域、两种任务里两条轨迹几乎重合,观察与闭环控制阶段在所展示的低维投影中具有相似结构。(B) 定量的 alignment index(训练数据被解码相前十个 PC 捕获的方差占被自身前十个 PC 捕获方差的比例,1 为完全对齐):所有区域、任务、猴子的 AI 都高(每格 11–38 个 session),三区域间无实质差异。这张图把"观察就能训练出可用解码器"的原因讲透了:训练相和解码相本来就在用同一套群体表征,闭环切换并没有把皮层推入新的状态。这一结果有助于解释观察训练的可用性,但本文仍实施在线再训练,不能推断临床上无需重复校准。
讨论与解读边界
同动物比较多个脑区,是本文的主要价值。F5c 的结果支持把 PMv 纳入候选信号源,但不同阵列的有效通道数不一致,跨月改善又与信号恢复交织,因此不能单独归因于区域特异的学习。Avatar 条件的表现也不一致:猴 L 的 PMv 仍低于其他区域;辅助控制成绩应与纯脑控分别解释。
观察与控制阶段具有相似的主成分子空间,并不表示全部动力学、单次试次活动或解码映射不变。本文实际使用在线再训练,不能由高子空间对齐度推出“患者不必反复校准”。缺乏立体深度线索是 avatar 表现较差的一种解释,并非单独操纵验证的原因。
思考问题
- 在各脑区严格匹配有效通道数与信号稳定性后,PMv 与 M1 的性能差异还在吗?
- 将同一任务扩展到真实抓握,并分别移除共享控制和在线再训练,F5c 能独立支持哪些控制量?