这是 Gross 在皇家学会专题讨论会上作的总结性综述,系统梳理了普林斯顿实验室在非人灵长类下颞叶皮层(IT)单细胞记录上的研究成果,归纳了 IT 神经元的十三项基本反应特性。文章重点探讨了三个核心问题:面孔表征是否遵循独立于其他物体的独特编码原则、“祖母细胞”(grandmother cell)是否存在,以及复杂刺激选择性的发育起源;并提出面孔与其他复杂视觉模式类似,均由神经元群体协同编码(ensemble coding),且成体样选择性在 5.5 周龄幼猴中已初步具备。
研究背景
下颞皮层参与视觉识别的观念,来自对“能看见却不能理解所见”这一损伤表现的逐步定位。十九世纪颞叶切除后的行为观察,后来在Klüver与Bucy的研究中被重新描述为精神性失明;更局限的损毁实验又将视觉学习和记忆障碍与情绪、动机等改变分离,指向颞叶下凸面的皮层。关键在于,严重的识别缺陷可以伴随相对保留的基本视觉阈值及非视觉学习能力,因此不能简单解释为失去感觉输入。人类颞叶病变后的视觉失认和面孔识别困难也提出相近的问题:视觉系统如何把仍然可见的形状、颜色和部件组织成具有身份及意义的对象。
到这篇综述写作时,单细胞记录已为这种功能提供若干候选基础。下颞神经元可对复杂形状或颜色有选择性,较大的感受野和跨位置、大小等变换相对稳定的偏好又允许一定程度的形状恒常;反应还受到注意、任务相关性及既往经验影响。但这些性质并未自动解决表征的单位是什么。面孔选择性细胞的发现尤其容易引出两种不同主张:面孔是否需要独立于一般物体的特殊编码原则,以及一个神经元是否可以专门代表某一人物。另一个相关缺口是这种复杂选择性的来源,成年动物的记录无法区分早期形成的组织特征与长期视觉经验的塑造,也难以单独说明哪些反应对真实识别具有必要作用。
Gross在本文中先归纳下颞神经元的基本性质,再把面孔选择性、个体专一性和发育问题纳入同一评价框架。跨刺激的反应谱用于判断细胞是否只响应唯一对象,跨变换测试用于区分局部外观偏好与较稳定的身份相关反应,清醒幼猴记录则检验成年样选择性出现的时间。文章倾向于用选择性各异的细胞群体解释面孔和其他复杂刺激,而不把面孔细胞直接等同于祖母细胞。但本文属于综述,相关记录仍只支持候选编码;当时损毁结果与人类病灶定位也没有给出简单一致的因果链。幼猴出生数周即有复杂选择性,说明不必等待漫长成年经验,却不能单凭这一事实排除早期经验作用,更不能确定其空间组织已与成体完全相同。
研究思路
综述的论证逻辑围绕三个争议假说展开:首先梳理 IT 神经元的十三条基本电生理特性作为分析基线。针对“面孔特殊论”,文章将面孔选择性细胞纳入常规 IT 神经元的评估框架(跨刺激选择性图谱与跨变换不变性测试)。针对“祖母细胞”假说,检验是否存在仅对单一特定个体面孔响应、且在大小、朝向、对比度变化下保持高度不变性的单一神经元。针对“先天发育还是后天经验”,援引清醒幼猴的电生理记录数据评估成体样选择性的出现时程。文末附列九个未决科学问题,明确指出现有实验数据的解释边界。
方法
本文为文献综述并附专题讨论实录,不涉及新实验。其证据基础包括:清醒行为猕猴与麻醉猕猴的 IT 单细胞记录(感受野测绘、刺激组筛选、FD 边界曲率刺激调谐、跨变换不变性检验);损毁与断离研究(IT 损毁、STS"面孔区"损毁、胼胝体与前连合离断);以及本组婴儿猕猴研究(Rodman et al. 1991):训练幼猴注视后记录 IT 神经元对复杂刺激的反应,另在氧化亚氮麻醉制动状态下测绘感受野,测得麻醉下 4 月龄以下有反应细胞比例仅约 10%、清醒幼婴及更年长动物超过 85%,且该麻醉敏感性为 IT 特异(纹状皮层与 MT 不受影响)。
主要结果
- IT 神经元的核心特性是"泛化中的选择性":形状选择性在刺激大小、对比度、视网膜位置改变时保持相似(图 1),为跨视网膜位移的知觉等价(perceptual equivalence across retinal translation)提供基础;形状恒常性同样适用于面孔等自然刺激。IT 无视网膜定位组织、感受野巨大且必含中央凹,这与形状知觉以注视中心为主的角色相吻合。
- 面孔选择性细胞有明确的判定标准(对面孔组反应显著大于其他刺激、且该选择性跨大小、颜色、对比度不变),类型多样:有的只对特定朝向反应("观察者中心")、有的对各朝向等同反应("物体中心");有的只认完整面孔、有的在去除五官后反应下降、有的对孤立部件也有反应。其分布高峰在两个相邻区域——上颞沟腹岸的 IT 部分与沟背岸的上颞多感觉区(STP)部分(Baylis et al. 1987),此外杏仁核基底副核、腹侧壳核、额叶弓状区腹外侧部也有面孔(或手)选择性细胞。
- 不存在"祖母细胞"式的专一探测器:迄今没有发现对特定个体面孔在大小、朝向、颜色变换下保持窄带选择性的 IT 细胞,即使最挑剔的面孔细胞也对多种个体面孔放电、并通常对其他刺激有较弱反应。面孔与其他视觉刺激一样由"选择性各异的细胞群体放电模式"编码,面孔细胞只是面孔专精群体的成员。面孔群体成员显得更专一有两个自然理由:猴子必须区分面孔,而面孔彼此又比任何其他刺激更相似——若进化压力要求猴子分辨某棵橡树的所有叶子,也会造出一片"橡树叶专精群体"。
- 面孔细胞与面孔失认(prosopagnosia)的联系目前只是"候选编码"(candidate code,Perkel & Bullock 1968 术语):把二者挂钩有三个障碍——人类面孔失认通常不限于面孔(同类相近个体如鸟、汽车也认不出);面孔细胞最密集处在上颞沟,而人类最常见的关联病灶却是双侧腹内侧枕颞区;最严重的是,猴 STS"面孔区"损毁并不产生面孔识别缺陷。一个有趣的例外线索是注视方向:STS 中有对注视方向选择性的细胞,而猴 STS 损毁与人类病人都出现注视方向辨别缺陷,提示面孔加工的不同侧面可以神经解离。
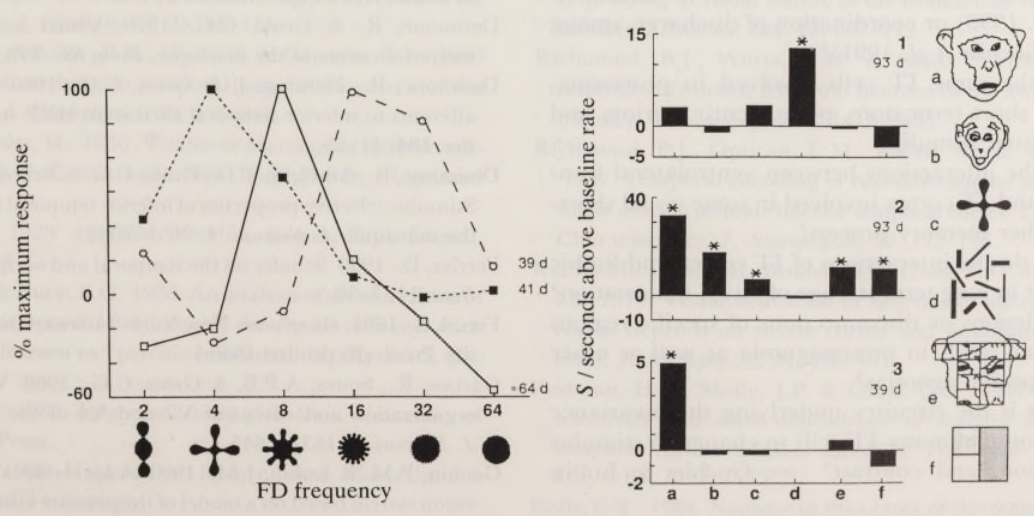
- 发生学上"康德战胜洛克":5.5 周龄幼猴在清醒注视任务中,IT 神经元对面孔、几何图形与其他复杂刺激的选择性已与成体无法区分(图 3),且从婴幼期到青春期未见任何发育趋势;但麻醉敏感性在约 4 月龄发生转变(麻醉下有反应细胞比例从约 10% 升至 85% 以上),提示该龄前后 IT 有突触或代谢层面的成熟过程。
图注解读
图 1 · 形状选择性的三重不变性
原文图注:Figure 1. Responses of three IT neurons to a set of shapes. The shape selectivity remains similar over changes in stimulus size (a), contrast (b), and retinal location (c). Responses are plotted as percent change of each neuron's mean spontaneous rate. Each point is a mean of ten responses. Key to symbols: f, fovea; c, contralateral field; i, ipsilateral; u, upper; l, lower. (After Gross et al. 1985.)
三个小面板各画一个 IT 神经元对同一组形状(横轴为形状频率 2–64 的调谐曲线)的反应,纵轴是相对该神经元平均自发放电率的百分比变化,每点为 10 次反应的均值。(a) 改变刺激大小、(b) 改变对比度(图中标出 light/dark 两套曲线)、(c) 改变视网膜位置(符号 f/c/i/u/l 分别代表中央凹、对侧、同侧、上、下视野)之后,调谐曲线的峰形基本不动。读法是逐面板比较"峰在哪个频率":只要峰不挪位,就说明选择性不变而只有幅度变化。这张图是结果 1"泛化中的选择性"的原始证据,也是 IT 作为形状恒常性载体这一论断的最常被引用的图示。
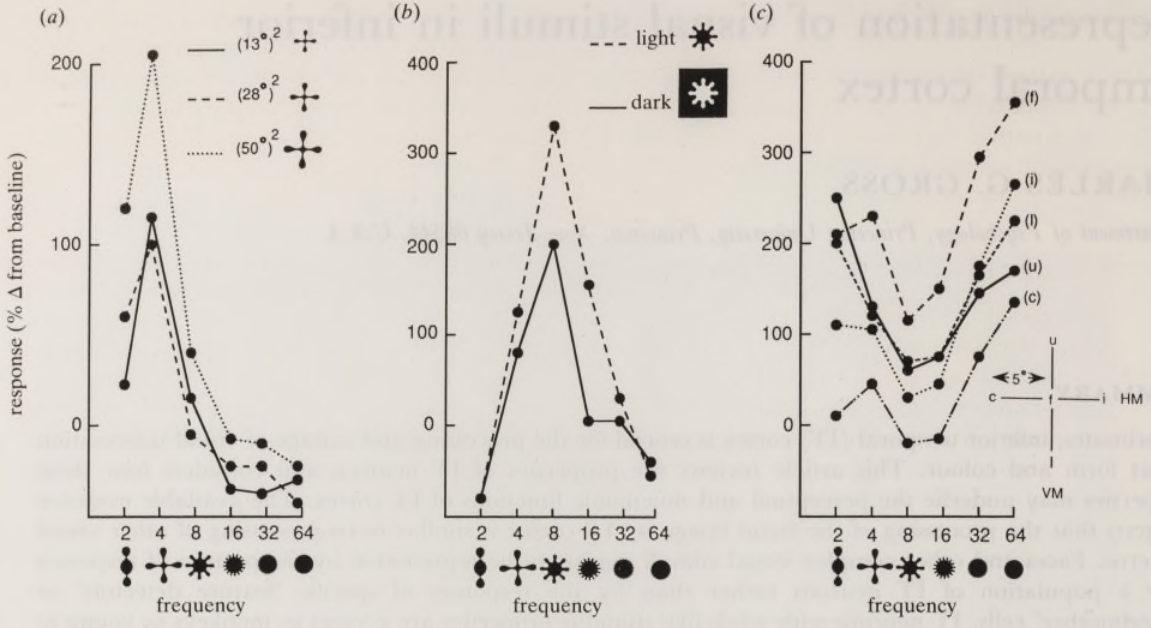
图 2 · IT 的输入主流与边缘连接
原文图注:Figure 2. Main afferent routes to IT cortex and some IT-limbic connections.
这张线路示意图把 IT 放进大系统里:VENTRAL SYSTEM(腹侧系统)标出纹状皮层经 V2、V4 到 IT 的形状-颜色分析主流,DORSAL SYSTEM(背侧系统)另走一边,OTHER "DORSAL" AREAS 与之并置;IT 之外还画出了向 LIMBIC SYSTEM(边缘系统)方向的连接,途经标注为 PR、PH 的区域(结合正文"面孔细胞输出可能经腹侧走向鼻内皮层或其他边缘皮层"的讨论,应指围嗅皮层与海马旁皮层方向)。读这张图要抓住两点:同侧视野信息经胼胝体压部与前连合汇入 IT(正文第 10 条);以及 IT 与边缘系统的连接是长时程视觉存储假说(未解问题第 5 条)的解剖基础。
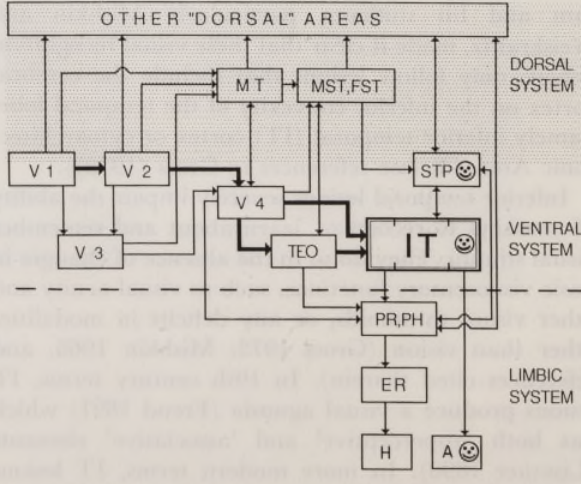
图 3 · 清醒幼婴 IT 神经元对形状的反应
原文图注:Figure 3. Responses of IT neurons in alert infant monkeys to the shapes illustrated. Zero on the left ordinate is spontaneous activity level. Age in days (d) at which each cell was recorded is indicated. Stimuli were black and white except for a, b, e and f. Each point or bar is an average of ten responses. Asterisks indicate statistically significant responses. (After Rodman et al. 1991.)
纵轴零点是自发活动水平,各小图记录不同日龄(d)幼猴的单个 IT 神经元对图示形状的反应,每点或每柱为 10 次反应的均值,星号标记统计显著的反应;除 a、b、e、f 外刺激均为黑白。读法是按日龄从小到大浏览:即便在很小的日龄,也能找到对特定形状显著反应、对其他形状不反应的细胞——与成体记录同型。这张图(转引自 Rodman et al. 1991)支撑结果 5 的"康德"半边:成体样选择性在出生后数周即已存在,无需漫长视觉经验的雕刻。
讨论
作者把所有证据收拢到一个命题上:IT 皮层以与表征其他视觉经验(无论当下还是记忆中的)完全相同的方式表征面孔图像,即某种形式的群体编码。面孔群体之所以由相对挑剔的成员组成,是因为面孔的分辨需求与彼此相似度都是所有刺激之最。作者同时坦率地划界:无论是"祖母式"还是"群体式"编码,目前都只是"候选编码"而非生物学上已证实的编码;面孔细胞参与面孔知觉与记忆的证据至今为零。文章的诚实还体现在收尾方式上——不编织结论,而列出九个未解问题:群体编码的本性(多少细胞、如何特化与空间排布)、放电频率之外时间结构(时间模式、振荡、神经元间放电协调)是否载有信息、同一批细胞是否兼管加工与短期/长期存储与意象、腹外侧额叶与 IT 的交互是否参与视觉短时记忆、IT-边缘交互如何实现长时存储、IT 特定区域的损毁能否造出面孔失认及其他类别特异性失认、不变性的环路基础、丘脑枕核对 IT 的注意调制、以及 IT 各分区细胞构筑与连接差异的功能意义。专题讨论中 de Schonen 追问:5 周龄猴皮层突触尚未削减到成体水平(Rakic et al. 1986),面孔反应细胞是否分布在比成体更广的区域?Gross 答复:婴儿与成体的刺激特性(含面孔选择性)相似,但采样不足以判定空间分布是否相同——这一问答本身说明了当时数据的边界。
一句话总结
该综述基于严格的实验判据审视了面孔选择性与神经编码假说:面孔表征在信息处理方式上与常规复杂物体一致,依赖细胞群体的组合式放电;当时的数据未证实存在专属于单一个体的特异性单一神经元,而损毁猴 STS 与临床面孔失认的不对应也表明电生理选择性与知觉因果性之间仍存在需进一步验证的链条。