该研究在年龄低至 5.5 周的幼婴猕猴下颞皮层(IT)进行单细胞电生理记录,探讨编码复杂物体的成体式神经元特性究竟主要源于先天组织还是依赖长期的视觉经验积累。结果表明:在清醒行为状态下,幼婴 IT 神经元的复杂形状选择性与双侧大感受野已与成猴相当;但在麻醉状态下,4 月龄以前的幼猴 IT 皮层几乎检测不到视觉驱动反应,表明该区域的功能表达高度依赖动物的行为状态(behavioral state)。这一发现揭示了基本感知编码早熟与自上而下状态调制晚熟并存的神经发育特征。
研究背景
复杂视觉识别的发展常被放在先天组织与后天经验的对立面讨论。纹状皮层研究表明,简单朝向和双眼性质由两者共同塑造,但高级物体编码如何成熟并不清楚。成猴 IT 损伤会造成持久的识别障碍,神经元又具有复杂形状选择性、颜色偏好和跨中线的大感受野,因此 IT 是检验这一问题的关键部位。婴猴行为识别能力却需要很长时间才达到成人水平,早期 IT 损伤的影响反而较轻,代谢研究也提示其功能成熟较晚。由此产生一个直接问题:幼猴 IT 是否已经具备成人式神经元性质,还是必须经历长期视觉学习才能形成。
仅凭行为和代谢无法定位延迟的来源。可能是形状选择性尚未建立,也可能是基本编码已经存在,但信号强度、连接或注意调制尚未成熟。研究需要直接记录幼婴 IT,并使用与成体研究相同的刺激和分析标准,才能判断“不像成人”究竟指哪一层。另一个容易忽略的条件是记录状态:若麻醉选择性压制幼婴高级联合皮层,麻醉样本中的低反应率就可能被误读为神经元没有视觉功能,因此清醒与麻醉比较本身就是必要对照。
本文在 5.5 周至 7 个月幼猴中记录 IT,并在清醒注视与麻醉条件下比较刺激选择性、感受野和视觉反应比例,同时观察纹状皮层与 MT。结果显示,清醒幼婴的形状选择性和双侧感受野已接近成体,而四月龄以前麻醉下 IT 反应极少,其他视觉区则仍有响应。这支持基本编码早熟与状态调制晚熟并存,为行为和代谢上的延迟提供不同解释。研究并未排除反应强度、潜伏期和连接的持续发育,也不能据此断言视觉经验毫无作用;其核心贡献是把“神经元能否选择性编码”与“皮层在什么状态下能够表达这种编码”分开。
研究思路
作者的策略是"拿成人的尺子量婴儿":直接在幼猴 IT 记录单细胞,使用的刺激体系(立体物体、猴脸及其打乱版、线条、控制物体、FD 刺激)与既往成猴研究完全同源,从而把幼体与成体的反应特性放在同一坐标系下比较。第二个设计选择是让每个动物既经历麻醉记录、又经历清醒行为任务记录——作者本意可能是控制记录条件,但这两种状态的平行数据恰好把"行为状态"变成了本研究最重要的一根主轴:如果幼婴只在清醒时才有视觉反应而麻醉时没有,那"发育未成熟"的解释就必须与" extraretinal 因素(视野之外的调制因素)尚未成熟"的解释分开检验。对照设置也很讲究:在同一次麻醉记录中顺带测纹状皮层与 MT 区(中颞区),并在清醒后把同一批动物重新麻醉复测,用来排除"动物状态差"或"早期记录造成不可逆损伤"这两种平凡解释。
方法
被试为 17 只幼猴(16 只食蟹猴 Macaca fascicularis、1 只恒河猴 Macaca mulatta),年龄 5.5 周至 7 个月,反复多次记录(每只 1–10 次,间隔至少 1 周,每次 10–12 小时)。麻醉记录:提前一周在麻醉无菌条件下植入记录室与头部固定栓;记录时用 N2O/O2(7:3)混合气体加 2% 氟烷(halothane)维持麻醉,泮库溴铵(pancuronium bromide)肌松、人工呼吸,瞳孔散大、屈光矫正并佩戴接触镜。清醒记录:另植入巩膜搜索线圈(scleral search coil),一周后训练猴子在 2°–3° 窗口内注视 0.3° 光点 700–1000 ms 以换取果汁,动物坐在垫软毛巾的迷你猴椅中、磁线圈监测眼位;猴注视 200 ms 后刺激出现、持续 500 ms。刺激分两类:三维实物(头模型、猴玩偶、刷子、塑料食品等)与计算机控制的幻灯片(猴脸、打乱的脸、线条、控制物体与 FD 刺激——由描述边界曲率的形式化方法衍生,按"周长上每周期数"(即凸瓣数)变化频率);多数刺激视角 3°–6°,在注视中心呈现 10 次。反应显著性以刺激期平均放电率与同批试次基线比较(t 检验,P<0.05)。全部数据共分离 384 个 IT 神经元。
主要结果
- 幼婴 IT 的感受野已是成体样式:麻醉动物中三分之二的感受野越过中线至少 3° 伸入同侧视野(图 1A),反应强度一律以中央凹最强、对侧强于同侧;清醒幼婴中感受野大小较难测定,但同侧视野反应明确存在(图 1B),即便在很小的动物身上也是如此。
- 清醒幼婴的刺激选择性与成体无异(图 2):许多细胞对形状有选择性,例如对 FD 刺激的边界曲率频率有调谐(图 2A);在标准面孔/非面孔刺激组内(图 2B),有的细胞只对单一图像有反应(细胞 1、3),有的对组内许多但非全部图像有反应(如细胞 2),少数只对特定侧面像有反应(如细胞 4)。
- 群体层面的选择性分布也复刻成体(图 3):以"引起显著反应的投射刺激百分比"刻画每个细胞,分布既有极其挑剔的细胞、也有对一批关键特征不明的复杂刺激子集起反应的细胞,与成体 IT 的画像一致。
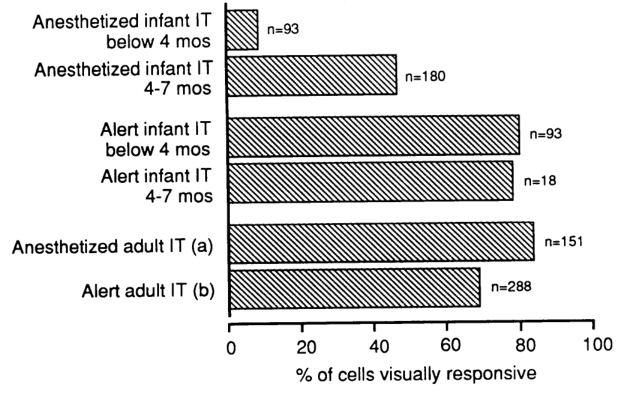
- 状态依赖是关键发现(图 4):麻醉状态下 4 月龄以下幼猴有反应的 IT 细胞极少,4–7 月龄组约为成体的一半;而清醒的 4 月龄以下幼猴,其视觉反应细胞比例与麻醉成猴或清醒行为成猴都没有显著差异(χ2 检验)。对照实验支持这一效应特异于 IT:同一麻醉记录中纹状皮层与 MT 的细胞多数有反应且具选择性(34 个记录点中 29 个);3 只清醒记录过的幼猴在 3–3.5 月龄重新麻醉复测时 30 个 IT 细胞中仅 1 个有反应,之后清醒时又记录到更多有反应的单元;此外地西泮(diazepam)深度镇静下 4–11 周龄猕猴 IT 同样无反应。
图注解读
图 1 · 记录部位、双侧感受野与清醒幼婴的视野映射
原文图注:FIG. 1. (A) Location of recording area (shaded in lateral view of macaque brain) and bilateral RFs of IT cortex cells in anesthetized infant monkeys, taken from levels a and b. hm, Horizontal meridian; vm, vertical meridian; c, contralateral visual field; i, ipsilateral visual field. (B) Responses (poststimulus time histograms) obtained at different sites in visual field to the stimulus (a set of lines) in an alert infant monkey performing the behavioral task shown (Inset); 200 ms after the monkey fixated a small spot of light, the stimulus came on for 500 ms.
A 图左侧为猕猴脑外侧观,阴影区域标示记录部位(TE 区);右侧展示麻醉幼婴 IT 细胞在两个记录层面(a、b)上的双侧感受野分布(hm/vm 分别为水平与垂直子午线,c/i 分别为对侧与同侧视野),可见大多数感受野跨越中线并伸入同侧视野。B 图展示清醒幼婴在固视行为任务中(插图显示任务时序:注视 200 ms 后刺激呈现 500 ms),对视野不同位置呈现的一组线条刺激产生的刺激后时间直方图(PSTH),中央注视点附近反应最强,且同侧视野亦呈现显著反应。该图支撑主要结果第 1 条,表明感受野的空间结构特征在幼婴期已具备成体式构型。
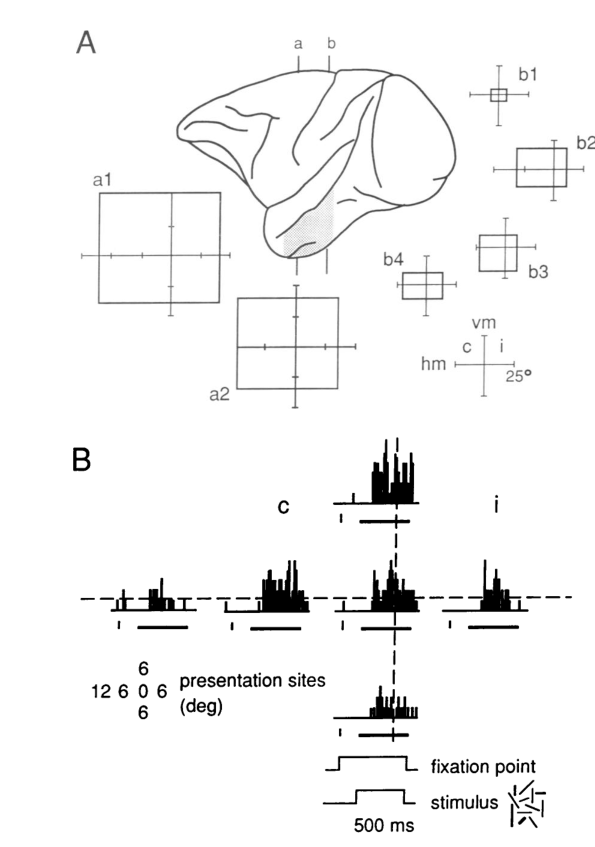
图 2 · 清醒幼婴 IT 神经元的刺激选择性
原文图注:FIG. 2. Stimulus selectivity of IT neurons in alert infant macaques. Stimuli were white on a dark background (FDs, stimuli c and d in C) or colored (remaining stimuli), subtended 3°-6° of visual angle and were presented for 10 trials at the center of gaze. (A) Tuning curves for FD frequency. Stimuli are shown below. (B) Responses from individual IT cortex cells to the set of stimuli shown in C. Asterisks indicate statistically significant responses. (C) Stimuli: a, adult front view, passive; b, baby front view, threat; c, FD; d, lines; e, scramble of a; f, multicolored square; g, adult profile 1; h, adult profile 2; i, scramble of g; j, scramble of h; k, adult front view, threat; l, adult front view, yawn; m, adult 3/4 view, passive; n, adult 3/4 view, threat; o, adult 3/4 view, yawn.
该图包含清醒幼婴 IT 神经元的刺激选择性证据。A 图为傅里叶描述子(FD)频率调谐曲线:横轴为 FD 频率(2、4、8、16、32、64 周期),纵轴为放电率,部分神经元对特定边界曲率复杂度表现出选择性调谐。B 图展示若干代表性单细胞对刺激集 C 中 15 种刺激的反应幅度(星号标示经 t 检验 p < 0.05 显著高于基线的反应);结合 C 图刺激类型(成猴正面与侧面像、表情变化、打乱版图像、线条、FD 刺激及彩色几何方块等),部分细胞仅对单一图像放电,部分细胞对特定视角(如侧面像)选择性放电,打乱版则无法有效驱动。该图支撑主要结果第 2 条,证实清醒幼婴 IT 神经元已具备与成体同类的刺激选择性类型。
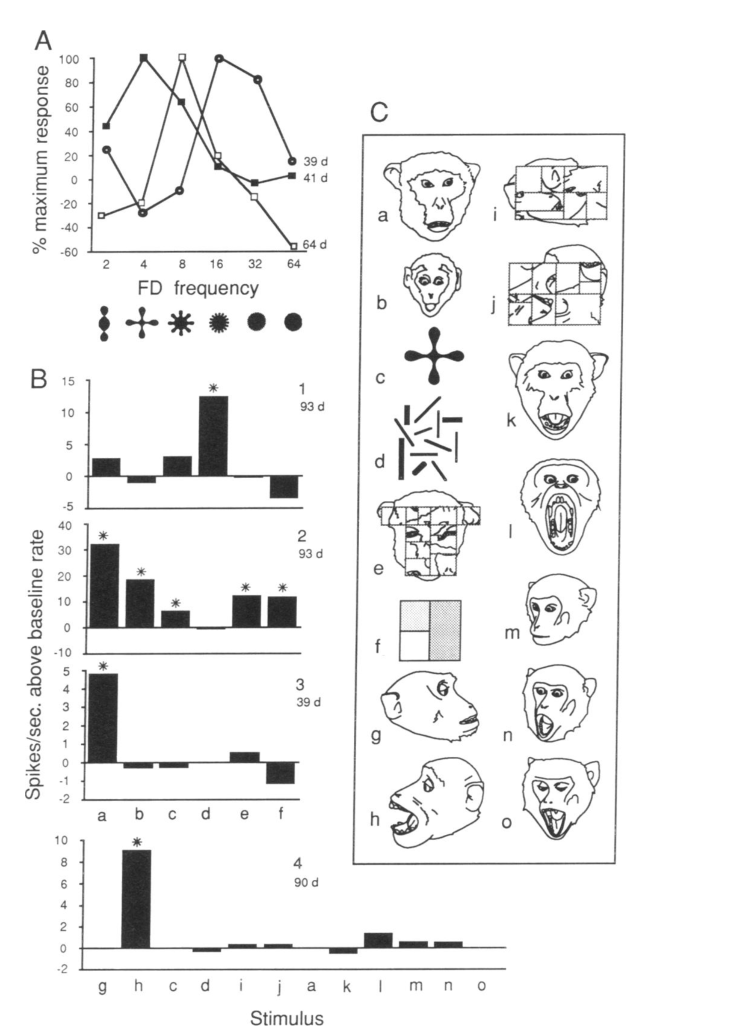
图 3 · 群体选择性分布直方图
原文图注:FIG. 3. Distribution of selectivity in the population of IT neurons studied in alert infant macaques. Bar corresponding to 0 indicates cells unresponsive to projected stimuli.
横轴为单个神经元产生显著反应的投射刺激百分比(0–100%),纵轴为细胞数量,对应 0 的柱状表示对测试刺激完全无反应的细胞。分布呈现两端分布形态:左端包含高选择性与无反应细胞,中段与右端包含对不同比例刺激子集产生响应的神经元,与成体 IT 皮层的群体选择性分布模式相符,支撑主要结果第 3 条。
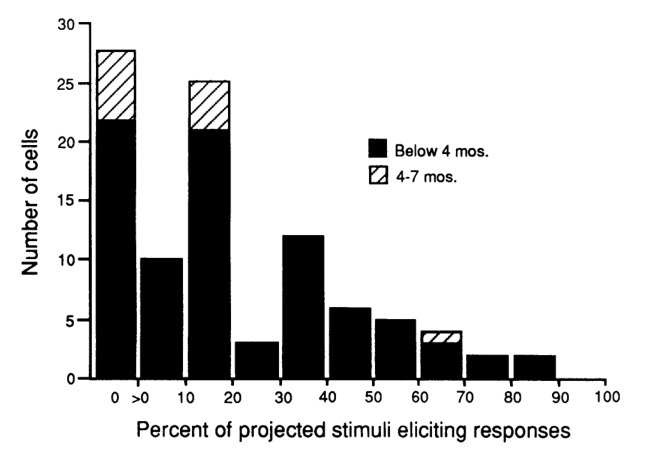
图 4 · 各组视觉反应细胞比例对比
原文图注:FIG. 4. (A) Incidence of visually responsive neurons as percentage of total cells studied for anesthetized and alert infant monkeys and for comparable samples obtained from adult monkeys. (a), From ref. 5; (b), from ref. 23.
横轴表示具有视觉反应的细胞占记录细胞总数的百分比,六根柱状依次对应:麻醉幼婴(<4 月龄)、麻醉幼婴(4–7 月龄)、清醒幼婴(<4 月龄)、清醒幼婴(4–7 月龄)、麻醉成猴及清醒行为成猴。清醒幼婴(<4 月龄)组的反应细胞比例与成体两组大体持平(经卡方检验无显著差异),而麻醉幼婴(<4 月龄)组反应比例极低(麻醉复测样本中 30 个细胞仅 1 个有反应)。该图直观展示了记录状态与月龄对高级联合皮层反应性的交互影响,支撑主要结果第 4 条。
讨论
作者的解读分正反两面。正面:IT 神经元的基本反应特性在 5.5 周龄即已就位,说明延长的成熟期与视觉经验并非成体样复杂物体编码的必要条件。反面则回答"那为什么行为上的识别能力长得慢":其一,IT 与参与识别记忆的其他结构之间的连接模式仍在发育(Webster et al. 1991);其二,不能排除反应幅度或调谐上存在微妙的量的差异——文中明确说这有待进一步工作;其三,成猴的 IT 活动与识别表现都深受注意、努力、刺激意义等 extraretinal 变量的影响,这些影响在很幼小的猴子身上可能尚未完全生效。而麻醉下幼婴 IT 反应的稀缺本身,就是行为状态对这一区域功能重要性的直接证词——这种影响在纹状皮层、MT 这类"低阶"区域显然不存在。作者的落点带有方法论意味:猴 IT 的发育是遗传、感觉与认知因素在复杂能力(如视觉识别)形成中汇聚的绝佳模型。
一句话总结
该研究表明,猕猴下颞叶皮层的复杂形状选择性与双侧大感受野在出生后数周即已建立,表明成体式的高级视觉编码硬件具备显著的早熟性;与此同时,幼婴期 IT 皮层在麻醉下缺乏视觉反应而在清醒状态下高度活跃,表明联合皮层的功能表达深受行为状态与自上而下调节机制的制约,其在麻醉状态下的反应能力呈现更长期的成熟轨迹。