该综述结合神经生理记录与计算理论,总结了 Rolls 实验室在猕猴颞叶皮层记录的 2600 多个单神经元数据,系统阐述了面孔信息在颞叶视觉通路的表征机制。文章剖析了面孔神经元的解剖亚区分布、集群编码(ensemble encoding)特性、跨变换维度的不变性以及身份与表情的功能分离,并进一步将这些经验生理学性质纳入层级前馈汇聚、局部竞争自组织网络与联想记忆的计算框架,提出了颞叶不变面孔表征的逐级学习机制。
研究背景
20 世纪 90 年代初,腹侧视觉通路从 V1 经 V2、V4 到颞叶的层级已较清楚,多个实验室也在下颞叶和上颞沟发现了面孔选择性神经元。可是,细胞构筑分区并不能直接说明功能:TEa、TEm、TE3 等下颞区域与 STS 内的 TPO、PGa、IPa 等亚区接受不同输入,它们分别处理面孔的哪些方面、是否多模态、为何面孔细胞在某些位置富集,都需要定量记录。单说“颞叶有面孔细胞”还不足以解释身份、表情和运动信息如何组织。
表征方式也存在争论。若每个细胞只对应一张脸,容量和泛化会受到限制;若由群体共同编码,则能在一定干扰下保持补全和容错,但不同记忆之间也可能互相干扰。面孔图像随大小、位置、空间频率和视角变化,细胞是否保持身份选择性,必须用变换实验测量。新面孔重复后反应是否改变,还关系到表征是固定模板还是经验塑造。更进一步,需要解释多层级连接和学习规则怎样产生这些性质,而不能把不变性当作高级皮层天然拥有的标签。
本文汇总 Rolls 团队超过 2600 个神经元的筛查与专门实验,先比较各亚区功能,再分析面孔身份、表情、构型、经验和不变性,最后以竞争学习与联想记忆网络约束解释。结果显示,面孔身份更多与下颞回、表情更多与 STS 相关,群体以稀疏分布式方式编码,不同视角依赖程度的细胞并存。作者据此提出逐级汇聚、局部竞争和时间连续性学习的假说,并讨论反向投射在引导与回忆中的作用。该计算方案当时主要是工作假说,尚缺完整定量仿真和回路验证;其价值在于把神经性质转化为模型必须满足的约束,而不是宣称面孔机制已被最终定位。
研究思路
作者的策略是"普查—定量—建模"三步走。第一步,在颞叶各亚区大样本筛查神经元的功能特化:用光栅、简单几何图形、三维物体和面孔等一大批刺激逐一测试,确定面孔神经元富集在哪些亚区、各亚区是单模态还是多模态、偏好静止还是运动刺激,从而把"处理面孔"这件事在解剖上落位。第二步,对已找到的面孔神经元做系统的变换实验:改变刺激大小、对比度、空间频率、视网膜位置、观察视角、表情与身份的组合,直接测量表征的不变性范围和编码维度,并用引入全新面孔集的办法检验经验是否修改反应性质。第三步,以上一步测得的性质为硬约束——调谐不能太细也不能太宽、身份是群体编码、存在平移与视角层面的不变性——反推什么样的网络结构和学习规则能自然产生这些性质,得到"多级收敛 + 各级竞争自组织 + 反向投射引导"的层级假说。
这条逻辑链的关键环节是编码方式与网络性质之间的取舍论证:集群编码(ensemble encoding,由一群神经元的联合反应表征一个物体)让输入到联想记忆(associative memory)网络的表征具备模式补全(pattern completion)、泛化和优雅退化(graceful degradation,容错)等涌现性质,但代价是网络内不同记忆之间会相互干扰;反过来极端精细调谐干扰小、可存记忆多,却丢掉上述全部好处。实验测到的调谐宽度恰好落在这两个极端之间,这正是需要用理论解释的"精细的折中"。
方法
实验动物为清醒、行为状态下的恒河猴(rhesus macaque),总计分析了超过 2600 个神经元,覆盖下颞回各 TE 亚区及 STS 前部各亚区。刺激包括正弦光栅、简单几何图形、三维物体与真人及猴面孔,部分亚区还测试了听觉与躯体感觉刺激以判定模态属性。针对具体问题还有几个专门范式:一是表情—身份分离实验,用三只猴脸各配三种表情(另加人类表情)构成 3×3 刺激集,对 45 个面孔选择性神经元做双因素方差分析;二是经验效应实验,先确认神经元对一组熟悉面孔在 5–15 次重复中反应稳定,再以每张 1 秒、多轮随机顺序反复呈现一组全新面孔,观察相对反应量是否随轮次调整;三是平移不变性实验,在视觉注视任务中把面孔放在感受野不同位置测量反应。分析要点包括:面孔与非面孔刺激的反应倍数比较(2–20 倍且统计显著)、调谐宽度的熵度量(对集合中各刺激反应占比求熵,H=1 表示对全部刺激反应均等)、以"反应大于半最大值"为标准量化对各类变换的容忍范围。
主要结果
- 亚区功能特化(图 1 给出解剖定位):面孔神经元在 STS 内的 TPO 区及沟腹侧唇的 TEa、TEm 区密度最高,约占对静止刺激有反应的视觉神经元的 20%,其余颞叶皮层区仅占 4–10%,比例差异统计显著;TPO、PGa、IPa 为视—听—体感多模态区,STS 前背侧神经元特化于运动视觉分析,下颞回各 TE 区基本为纯视觉区。后续的表情—身份实验进一步表明:对表情反应独立的神经元主要位于 STS 皮层,对身份反应独立的神经元主要位于下颞回。
- 面孔选择性与特征组合:这些神经元对面孔的反应比对光栅、简单几何图形或复杂三维物体高 2–20 倍(STS 内一半的面孔神经元对最有效面孔的反应比对其他刺激大 5 倍以上);遮挡或孤立呈现五官(眼、嘴、毛发)显示不同细胞对不同的特征子集反应,且部分细胞要求五官处于正常空间构型——同样的五官打乱排列后反应显著变小,说明所形成的组合不仅包含"有哪些特征",还包含特征的空间排布。
- 身份采用集群编码而非祖母细胞:对面孔做定量研究显示,不同个体的身份信息由神经元群体的反应模式共同表征;沿输出通路在杏仁核也发现面孔选择性神经元,且多数对不同面孔有不同反应、仍是集群编码,腹侧纹状体中亦有类似神经元。调谐宽度被论证为精细调谐与宽调谐之间的折中,以兼顾低干扰与泛化、补全、容错等网络性质。
- 经验塑造反应选择性:在新面孔集的重复呈现中,部分面孔神经元在最初 1–2 轮内调整了对各张新脸的相对反应强度(Rolls et al. 1989),而此前对熟悉面孔的反应是稳定的。这支持视觉经验通过自组织方式把新面孔纳入表征网络的假说。
- 表征的不变性与两种参照系:多数面孔神经元对刺激大小相对不变,反应保持大于半最大值时容忍的中位尺寸变化达 12 倍;面孔从三维实体变为二维灰度图像时反应约为真实面孔的 0.5。空间频率维度上,图像低通滤波(模糊)或高通滤波(线描状)后仅保留低至每张脸 8 个周期的空间频率信息,许多神经元仍有反应;但窄带滤波实验表明对未滤波面孔的反应无法用各窄带反应的线性组合预测,说明这些神经元是非线性的,面孔识别不是傅里叶分析式的。平移不变性方面,注视任务中猴子注视点越过 3–20 度大小面孔的边缘 2–5 度时,许多神经元仍给出大于半最大的反应,且面孔之间的选择性在此偏心位置依然保持,甚至跨视野中线成立。参照系上,10 个神经元对只能用对象坐标描述的运动反应(其中 4 个对头部腹侧屈曲强烈反应,无论呈现全脸、任一侧脸还是后脑勺,且头部倒置时特异性不变,并能跨不同头型泛化),另有少数神经元对特定绝对大小的面孔反应而与视网膜像大小无关,支持对象中心(object-based)编码;但对身份的选择性在 18 个被测神经元中有 16 个并非完全视角无关——身份信息保留的同时反应仍受视角影响,且视角依赖、部分视角无关与视角无关的神经元混存于同一区域。
- 表情与身份的功能分离:45 个面孔选择性神经元中,15 个对身份差异反应而与表情无关,9 个对表情反应而与身份无关;表情神经元集中于 STS,身份神经元集中于下颞回。部分神经元对平时共同出现的社会性动作组合(低头、垂眼、闭眼睑,即猴子结束社会接触的信号)都起反应,可由赫布式竞争自组织解释。
图注解读
图 1 · 猕猴前部上颞沟及周边皮层的细胞构筑分区
原文图注:Figure 1. Coronal section showing the different architectonic areas in and bordering the anterior part of the superior temporal sulcus (s.t.) of the macaque (see text). Areas TE1, TE2 and TEm form part of the inferior temporal gyrus.
解读:该图为猕猴脑冠状切片分区示意图,标出上颞沟(s.t.)前部及其边缘的各细胞构筑亚区,注明 TE1、TE2 与 TEm 属于下颞回的一部分。图中呈现了沟内多模态区(TPO、PGa、IPa、TS、TAa 等)与沟腹侧唇及下颞回视觉区(TEa、TEm、TE1、TE2 等)的相对解剖关系。面孔神经元比例最高的 TPO 与 TEa、TEm 主要分布于上颞沟前部,主要编码身份的 TE 区位于腹侧下颞回。该图为正文关于各亚区功能特化(面孔神经元在特定区域占约 20%、其余区域占 4–10% 的分布差异,以及表情在 STS 与身份在下颞回的分工)提供了神经解剖学坐标。
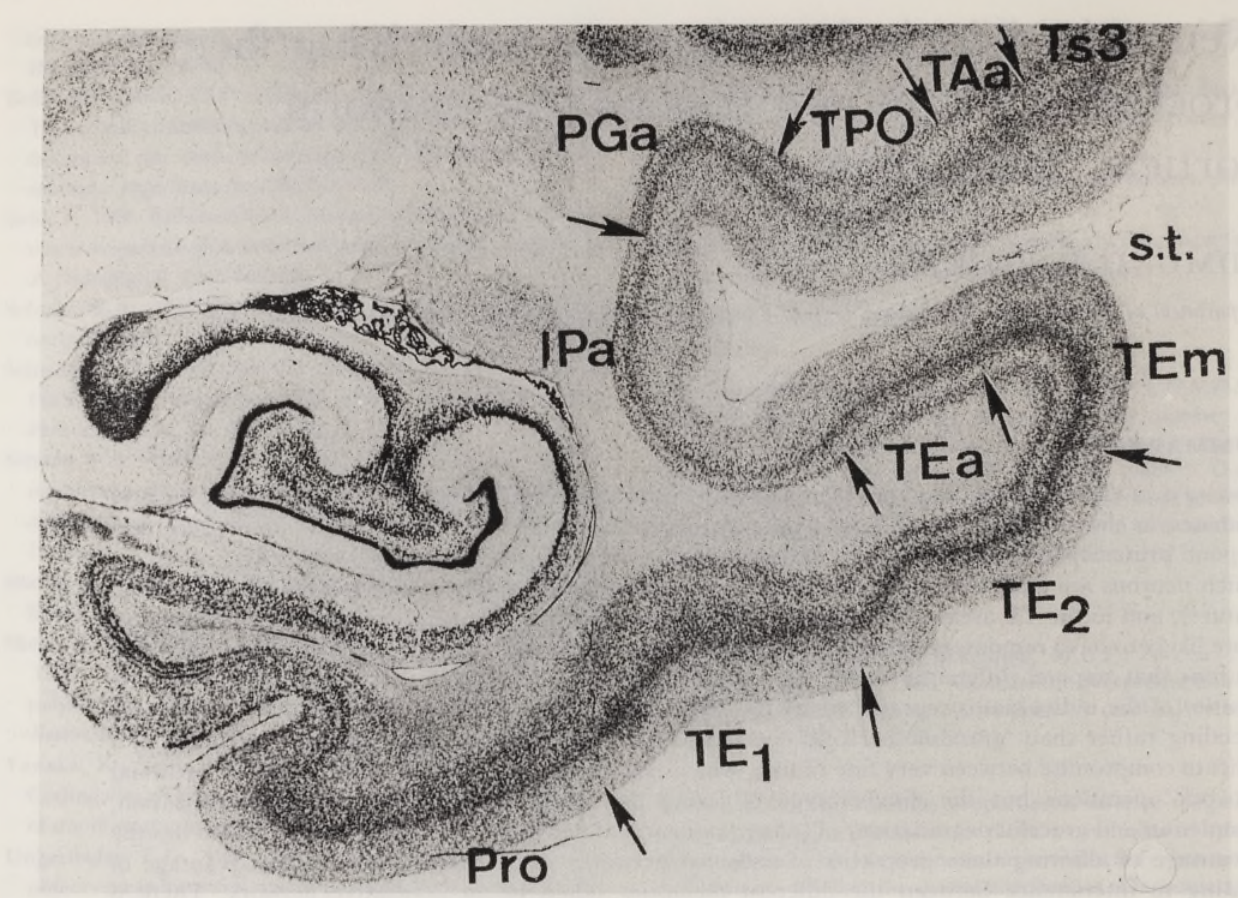
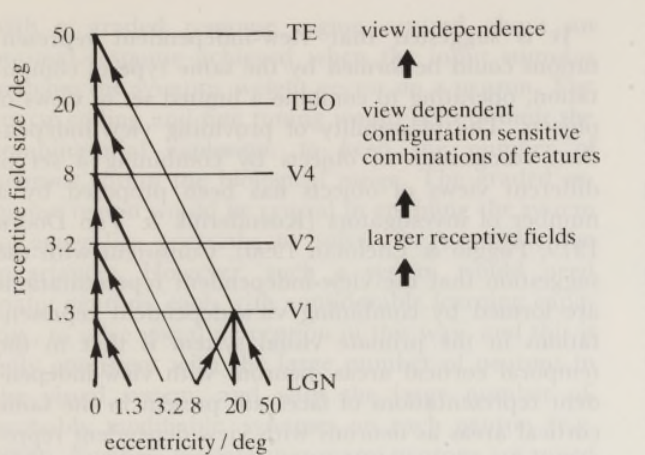
图 2 · 从 V1 到 TE 的逐级汇聚与各阶段可能构建的表征
原文图注:Figure 2. Schematic diagram showing convergence achieved by the forward projections in the visual system, and the types of representation that may be built by competitive networks operating at each stage of the system from the primary visual cortex (VI) to the inferior temporal visual cortex (area TE) (see text). LGN, lateral geniculate nucleas. Area TEO forms the posterior inferior temporal cortex. The receptive fields in the inferior temporal visual cortex (e.g. in the TE areas) cross the vertical midline (not shown).
解读:该图为层级前馈计算假说的总体架构示意图:展示从外侧膝状体(LGN)经 V1、V2、V4、后部下颞叶 TEO 至前部下颞叶 TE 的前馈投射与感受野逐级汇聚过程——感受野逐层扩大约 2.5 倍(V4 约 8°、TEO 约 20°、下颞叶约 50°),各级汇聚区域连续重叠。图中描绘了各级局部竞争网络构建的表征类型进阶:从初级局部特征,到对空间构型敏感的特征组合,再到顶端的视角无关表征;横轴标明离心度,并注明 TE 区感受野可跨越垂直中线。该图将不变性、构型敏感性及视角依赖与不变细胞混存等电生理发现整合为连贯的可检验模型架构。
讨论
在讨论与理论部分,作者把上述发现收拢为一个工作假说:皮层视觉加工是至少包含 V1、V2、V4、TEO、TE 及前颞区的多级层级,每级是一组局部自组织的竞争网络(前馈输入引起非线性激活,反馈抑制性中间神经元实现竞争,再按改进的赫布规则修改突触——用 NMDA 受体的电压依赖激活解释约 0.5 秒的可修饰时间窗)。由于真实物体在物理世界中连续移动,同一物体在相邻视网膜位置相继激活的特征分析器会在这个时间窗内被同一后突触神经元"记住"并加强连接,平移不变性由此从世界的统计规律中学习得到;尺寸、空间频率等不变性可用类似机制逐级习得,且每级只在小范围内找相关性,限制了连接空间的规模。为避免组合爆炸,每级神经元只学习输入的低阶组合(沿用 Feldman 的建议),而特征组合中固有的局部空间排布信息,使同一组特征任意重排不会激活同一神经元——这是作者对该层级内特征绑定问题给出的有限解。视角无关表征则被设想为把同一物体的有限几个视角依赖表征关联起来的产物,这与 Poggio & Edelman 等人的观点一致;来自相邻皮层区及杏仁核、海马的反向投射(backprojections)为各级竞争网络提供温和的教学引导,并承担回忆功能。
会议讨论记录里有两段值得注意的交锋。Cowey 指出解剖证据表明反向投射的终止范围比前向投射的起点更弥散,问这与模型是否相容;Rolls 回应:前向投射必须足够集中以提供驱动突触修饰所需的强后突触激活,反向投射则只需在突触前提供修饰所必需的项,且回忆时可激活学习当时活跃的早期阶段神经元,即便它们不在前向通路上。Bruce 追问面孔的"特征"究竟指什么、是否对应我们有语言标签的东西;Rolls 答称特征不必有标签,它是早期视觉皮层对环境中频繁出现刺激的活动模式的低阶组合,例如 V1 中两组特定排布的活动组合可以就对应"嘴"。局限方面,作者自己也把这整套机制称为"工作假说"(outline working hypotheses):文中未给出模型的定量仿真验证,竞争学习、反向投射教学等环节在 1992 年仍属推测,文中未详述其可与数据直接对撞的具体检验。
一句话总结
该综述系统整合了猕猴颞叶面孔神经元的电生理发现与层级神经网络理论:确立了面孔身份由稀疏分布式集群编码表征、表情与身份加工分别偏向 STS 与下颞叶的解剖分工,并提出逐级前馈汇聚结合基于时间连续性的局部赫布竞争学习是形成平移、尺寸及视角不变表征的可能生理机制。