这是 Gross 在皇家学会专题讨论会上做的一篇总结性综述,把普林斯顿实验室二十余年单细胞记录的成果凝练成十三条 IT 神经元特性,并借此回答三个大问题:面孔在颞下皮层(inferior temporal cortex, IT)里是否享有特殊待遇?"祖母细胞"(grandmother cell)究竟存在吗?面孔与复杂刺激的选择性是天生的还是经验的产物?文章给出的答案——面孔与其他视觉模式一样由神经元群体的放电模式(ensemble coding)表征、成体样选择性在 5.5 周龄幼猴中已就位——在 1992 年就为之后三十年的编码研究定下了框架。
研究背景
IT 皮层的故事有一段值得复述的学术史。1888 年 Brown 与 Schäfer 正是在皇家学会报告:颞叶损伤后猴子似乎不再理解所见之物的意义,尽管视觉本身正常——这些观察湮没在 Ferrier 与 Schäfer 关于听觉、视觉皮质定位的激烈论战中。五十年后 Klüver 与 Bucy(1938)在颞叶切除后重述了类似症状,Klüver 因迷幻药麦司卡林(mescaline)的致幻作用类似颞叶癫痫先兆而把目光投向颞叶,并把颞叶切除后的视觉识别症状命名为"精神性失明"(psychic blindness)。经 Chow、Pribram 及其学生 Mishkin、Weiskrantz 的工作,这类识别缺陷被定位到颞叶下凸面的皮层,即 IT 皮层或细胞构筑区 TE:IT 损毁严重损害猴子对视觉刺激的识别、学习与记忆,而基本视感觉功能(视锐度、各类阈值)与非视觉模态不受影响。用十九世纪的术语说,IT 损毁造成视觉失认(visual agnosia),兼有"知觉性"(apperceptive)与"联系性"(associative)两种成分(Lissauer 1890);用现代术语说,是对形状与颜色信息的加工与存储出了缺陷。人类颞皮层病变亦有类似综合征(Milner 1968),常累及面孔加工,有时面孔缺陷恰是最突出的症状(Damasio 1989)。
到这篇综述写作时,成体 IT 神经元的性质已经相当清楚:只对视觉刺激反应;感受野都包含中央凹且该处反应最强、但整体无视网膜定位组织;感受野巨大(中位数约 25°×25°)、多数跨垂直子午线伸入两侧半野;许多细胞对形状、质地或颜色有选择性但并非窄带滤波器;形状选择性在大小、对比度、波长变化下保持不变(形状恒常性);这些"感觉"特性在清醒动物和氧化亚氮麻醉动物中存在、在巴比妥麻醉下消失;反应还受近期经验(延迟匹配、习惯化、长时程记忆)、注意位置与刺激任务相关性调制;IT 是枕-颞通路的终点站,经 V2、V4 接受纹状皮层输入,同侧视野信息经胼胝体压部与前连合来自对侧半球。悬而未决的是三件事:面孔细胞是否构成特例、"祖母细胞"式的专一表征是否存在、以及这些性质如何发生。
研究思路
综述的组织本身就是论证:先铺陈十三条基本特性作为"共识底座",再逐一检验三个传闻级别的假说。对"面孔特殊论",策略是把面孔细胞放进与一般 IT 细胞相同的评价标准(对一组刺激的选择性谱、跨变换的不变性);对"祖母细胞论",策略是直接检验其可证伪的推论——是否存在对特定个体面孔在大小、朝向、颜色变换下保持窄带选择性的细胞;对"先天还是经验",策略是援引婴幼儿猕猴清醒记录的最新数据(Rodman et al. 1991,即本组上一批工作)。文章最后以一张"未解问题清单"收尾,把未能回答的问题诚实地列出来。
方法
本文为文献综述并附专题讨论实录,不涉及新实验。其证据基础包括:清醒行为猕猴与麻醉猕猴的 IT 单细胞记录(感受野测绘、刺激组筛选、FD 边界曲率刺激调谐、跨变换不变性检验);损毁与断离研究(IT 损毁、STS"面孔区"损毁、胼胝体与前连合离断);以及本组婴儿猕猴研究(Rodman et al. 1991):训练幼猴注视后记录 IT 神经元对复杂刺激的反应,另在氧化亚氮麻醉制动状态下测绘感受野,测得麻醉下 4 月龄以下有反应细胞比例仅约 10%、清醒幼婴及更年长动物超过 85%,且该麻醉敏感性为 IT 特异(纹状皮层与 MT 不受影响)。
主要结果
- IT 神经元的核心特性是"泛化中的选择性":形状选择性在刺激大小、对比度、视网膜位置改变时保持相似(图 1),为跨视网膜位移的知觉等价(perceptual equivalence across retinal translation)提供基础;形状恒常性同样适用于面孔等自然刺激。IT 无视网膜定位组织、感受野巨大且必含中央凹,这与形状知觉以注视中心为主的角色相吻合。
- 面孔选择性细胞有明确的判定标准(对面孔组反应显著大于其他刺激、且该选择性跨大小、颜色、对比度不变),类型多样:有的只对特定朝向反应("观察者中心")、有的对各朝向等同反应("物体中心");有的只认完整面孔、有的在去除五官后反应下降、有的对孤立部件也有反应。其分布高峰在两个相邻区域——上颞沟腹岸的 IT 部分与沟背岸的上颞多感觉区(STP)部分(Baylis et al. 1987),此外杏仁核基底副核、腹侧壳核、额叶弓状区腹外侧部也有面孔(或手)选择性细胞。
- 不存在"祖母细胞"式的专一探测器:迄今没有发现对特定个体面孔在大小、朝向、颜色变换下保持窄带选择性的 IT 细胞,即使最挑剔的面孔细胞也对多种个体面孔放电、并通常对其他刺激有较弱反应。面孔与其他视觉刺激一样由"选择性各异的细胞群体放电模式"编码,面孔细胞只是面孔专精群体的成员。面孔群体成员显得更专一有两个自然理由:猴子必须区分面孔,而面孔彼此又比任何其他刺激更相似——若进化压力要求猴子分辨某棵橡树的所有叶子,也会造出一片"橡树叶专精群体"。
- 面孔细胞与面孔失认(prosopagnosia)的联系目前只是"候选编码"(candidate code,Perkel & Bullock 1968 术语):把二者挂钩有三个障碍——人类面孔失认通常不限于面孔(同类相近个体如鸟、汽车也认不出);面孔细胞最密集处在上颞沟,而人类最常见的关联病灶却是双侧腹内侧枕颞区;最严重的是,猴 STS"面孔区"损毁并不产生面孔识别缺陷。一个有趣的例外线索是注视方向:STS 中有对注视方向选择性的细胞,而猴 STS 损毁与人类病人都出现注视方向辨别缺陷,提示面孔加工的不同侧面可以神经解离。
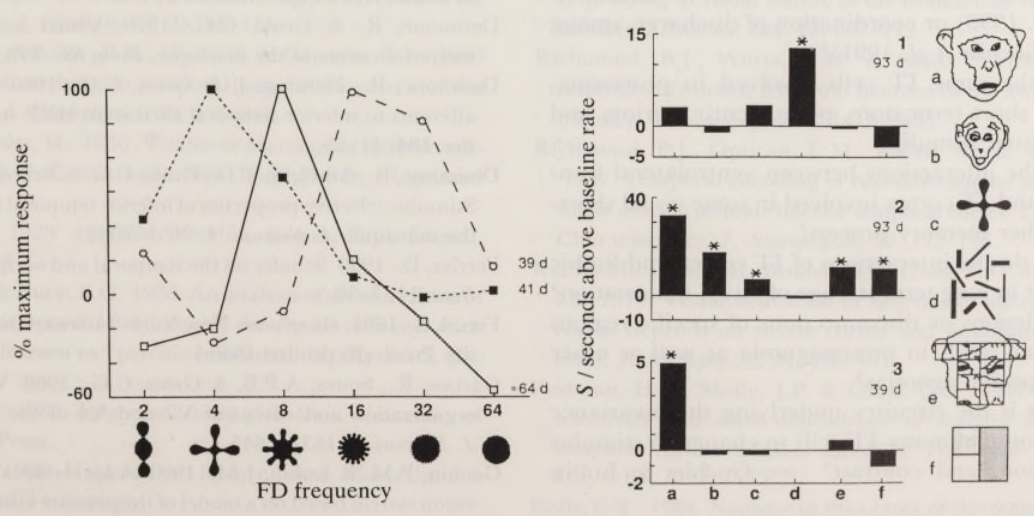
- 发生学上"康德战胜洛克":5.5 周龄幼猴在清醒注视任务中,IT 神经元对面孔、几何图形与其他复杂刺激的选择性已与成体无法区分(图 3),且从婴幼期到青春期未见任何发育趋势;但麻醉敏感性在约 4 月龄发生转变(麻醉下有反应细胞比例从约 10% 升至 85% 以上),提示该龄前后 IT 有突触或代谢层面的成熟过程。
图注解读
图 1 · 形状选择性的三重不变性
原文图注:Figure 1. Responses of three IT neurons to a set of shapes. The shape selectivity remains similar over changes in stimulus size (a), contrast (b), and retinal location (c). Responses are plotted as percent change of each neuron's mean spontaneous rate. Each point is a mean of ten responses. Key to symbols: f, fovea; c, contralateral field; i, ipsilateral; u, upper; l, lower. (After Gross et al. 1985.)
三个小面板各画一个 IT 神经元对同一组形状(横轴为形状频率 2–64 的调谐曲线)的反应,纵轴是相对该神经元平均自发放电率的百分比变化,每点为 10 次反应的均值。(a) 改变刺激大小、(b) 改变对比度(图中标出 light/dark 两套曲线)、(c) 改变视网膜位置(符号 f/c/i/u/l 分别代表中央凹、对侧、同侧、上、下视野)之后,调谐曲线的峰形基本不动。读法是逐面板比较"峰在哪个频率":只要峰不挪位,就说明选择性不变而只有幅度变化。这张图是结果 1"泛化中的选择性"的原始证据,也是 IT 作为形状恒常性载体这一论断的最常被引用的图示。
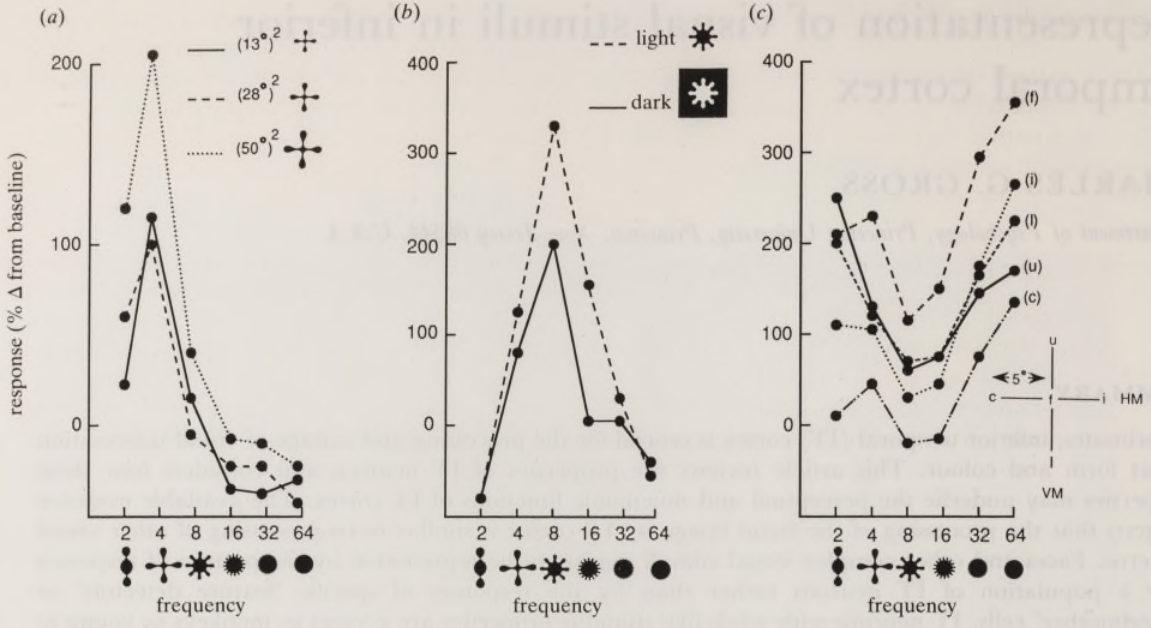
图 2 · IT 的输入主流与边缘连接
原文图注:Figure 2. Main afferent routes to IT cortex and some IT-limbic connections.
这张线路示意图把 IT 放进大系统里:VENTRAL SYSTEM(腹侧系统)标出纹状皮层经 V2、V4 到 IT 的形状-颜色分析主流,DORSAL SYSTEM(背侧系统)另走一边,OTHER "DORSAL" AREAS 与之并置;IT 之外还画出了向 LIMBIC SYSTEM(边缘系统)方向的连接,途经标注为 PR、PH 的区域(结合正文"面孔细胞输出可能经腹侧走向鼻内皮层或其他边缘皮层"的讨论,应指围嗅皮层与海马旁皮层方向)。读这张图要抓住两点:同侧视野信息经胼胝体压部与前连合汇入 IT(正文第 10 条);以及 IT 与边缘系统的连接是长时程视觉存储假说(未解问题第 5 条)的解剖基础。
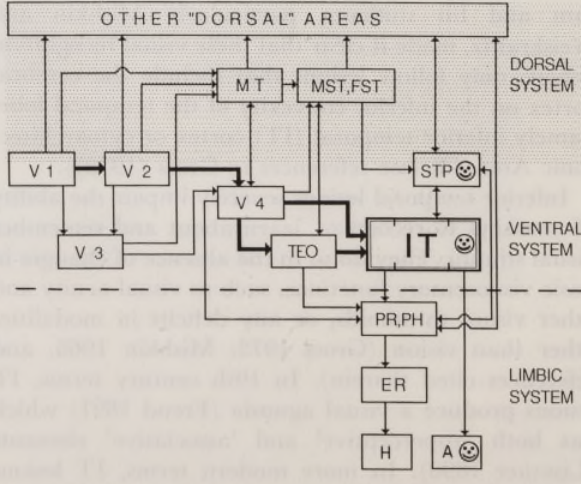
图 3 · 清醒幼婴 IT 神经元对形状的反应
原文图注:Figure 3. Responses of IT neurons in alert infant monkeys to the shapes illustrated. Zero on the left ordinate is spontaneous activity level. Age in days (d) at which each cell was recorded is indicated. Stimuli were black and white except for a, b, e and f. Each point or bar is an average of ten responses. Asterisks indicate statistically significant responses. (After Rodman et al. 1991.)
纵轴零点是自发活动水平,各小图记录不同日龄(d)幼猴的单个 IT 神经元对图示形状的反应,每点或每柱为 10 次反应的均值,星号标记统计显著的反应;除 a、b、e、f 外刺激均为黑白。读法是按日龄从小到大浏览:即便在很小的日龄,也能找到对特定形状显著反应、对其他形状不反应的细胞——与成体记录同型。这张图(转引自 Rodman et al. 1991)支撑结果 5 的"康德"半边:成体样选择性在出生后数周即已存在,无需漫长视觉经验的雕刻。
讨论
作者把所有证据收拢到一个命题上:IT 皮层以与表征其他视觉经验(无论当下还是记忆中的)完全相同的方式表征面孔图像,即某种形式的群体编码。面孔群体之所以由相对挑剔的成员组成,是因为面孔的分辨需求与彼此相似度都是所有刺激之最。作者同时坦率地划界:无论是"祖母式"还是"群体式"编码,目前都只是"候选编码"而非生物学上已证实的编码;面孔细胞参与面孔知觉与记忆的证据至今为零。文章的诚实还体现在收尾方式上——不编织结论,而列出九个未解问题:群体编码的本性(多少细胞、如何特化与空间排布)、放电频率之外时间结构(时间模式、振荡、神经元间放电协调)是否载有信息、同一批细胞是否兼管加工与短期/长期存储与意象、腹外侧额叶与 IT 的交互是否参与视觉短时记忆、IT-边缘交互如何实现长时存储、IT 特定区域的损毁能否造出面孔失认及其他类别特异性失认、不变性的环路基础、丘脑枕核对 IT 的注意调制、以及 IT 各分区细胞构筑与连接差异的功能意义。专题讨论中 de Schonen 追问:5 周龄猴皮层突触尚未削减到成体水平(Rakic et al. 1986),面孔反应细胞是否分布在比成体更广的区域?Gross 答复:婴儿与成体的刺激特性(含面孔选择性)相似,但采样不足以判定空间分布是否相同——这一问答本身说明了当时数据的边界。
一句话总结
这篇综述最值得学的不是哪条具体结论,而是它处理"特殊论"的方式:每当一个听起来神奇的细胞类型出现,先问它的判定标准、再问它的不变性范围、最后问损毁它会不会真的让对应能力消失——三问之后,"祖母细胞"从传闻降级为候选假说。以我的理解,文章里那句"面孔细胞参与面孔识别的证据为零"在 1992 年是审慎,在今天看来几乎是预言:此后"面孔区损毁是否特异性破坏面孔知觉"确实成了争论数十年的硬骨头。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[]