这篇文章在清醒猕猴的颞上沟皮层(superior temporal sulcus)与颞下皮层开展单细胞记录,通过头部倒置实验检验面部敏感神经元采用的参考坐标系:观察者中心(viewer-centered)还是物体中心(object-centered)。研究记录到 10 个对特定头部转动具有选择性的神经元,且该选择性在头部倒置及从背后观察时依然保持——由于倒置颠倒了视网膜与观察者坐标系中的运动向量,这一现象为物体中心编码提供了电生理证据。第二部分实验进一步发现,37 个面孔选择性神经元中有 18 个能够跨视角区分不同个体,但其中多数神经元的放电幅度仍受观察视角调制,作者将其解释为介于观察者中心与完全物体中心表征之间的中间加工阶段。
研究背景
识别同一对象时,视觉系统必须应对观察角度不断改变的问题。正面与侧面的脸在视网膜上差别很大,却可以属于同一个人;低头这一动作从正面、背面或倒置角度观看,也会产生不同的图像运动。早期物体识别理论由此区分观察者中心与物体中心描述:前者以当前观看位置为参照,后者依据对象自身的轴和结构组织信息。物体中心表示有望减少为每个视角分别保存描述的负担,但理论上的便利并不是神经实现的证据。患者对不常见视角的物体匹配困难,以及猴颞下皮层受损后的变换辨别障碍,提示颞叶参与这种稳定表示的形成,却仍不能确定单个细胞采用什么坐标系。
面孔选择性神经元提供了进一步检验的入口。此前已知部分颞上沟和颞下皮层细胞对面孔大小或距离变化较为宽容,但大小恒常性本身不能区分物体中心与观察者中心编码。运动研究还发现,有些细胞偏好头部朝向或远离观察者的运动,有些则对头部绕轴转动敏感;后一类反应究竟追踪屏幕上的运动方向,还是头相对自身的动作,尚无明确答案。静态面孔研究同样存在两种现象:身份选择可能跨视角保持,反应强度却仍随视角变化。因而,局部的不变性不能直接等同于完全物体中心表征,需要让不同坐标系给出相反预测的刺激操纵。
本文用头部倒置建立这种区分:倒置改变观察者所见的运动向量,却不改变动作相对头部自身是低头还是仰头的定义,再以侧位、背位和旋转录像检验选择性保持的范围。另一组实验系统组合静态面孔的身份与视角,考察身份差异能否跨观察方向保留,以及这种保留是否伴随视角调制。两个问题共同指向颞叶表征从图像描述走向稳定对象描述的程度,而非要求所有细胞符合一种坐标系。研究中的头动选择细胞数量有限,身份实验也只覆盖特定面孔与视角;反应模式可为物体中心编码提供证据,却不足以证明完整三维模型已经形成,更不能直接确认作者提出的联结学习机制。
研究思路
作者的实验逻辑是选取“倒置改变观察者中心描述,但不改变物体中心描述”的刺激条件,使两类理论假说产生可分离的预测。实验一利用头部转动:头部做腹侧屈曲(ventral flexion,低头)还是背侧屈曲(dorsal flexion,仰头),在物体自身坐标系中定义固定,但当头部倒置时,视网膜上的运动方向发生翻转——若细胞依据观察者中心或视网膜坐标编码,倒置后应响应相反方向的几何运动;若依据物体中心编码,则倒置前后响应相同的动作类型。实验进一步结合侧位、背位等各向异性视角变换与图像平面内的各向同性旋转进行检验。同时,将反向运动作为控制条件:反向运动与正向运动经历相同的静态构型序列但时序相反,可检验细胞是否仅对特定静态配置敏感。实验二转向静态面孔的个体身份编码:向神经元呈现多个个体在不同视角下的面孔,通过双因素方差分析分离身份因素与视角因素的主效应及交互作用,并通过向量合成量化每个细胞的最优视角偏好及对视角的调谐敏感度。两组实验相互印证,旨在评估颞叶面孔表征在参考坐标系层级中的建构阶段。
方法
记录用玻璃绝缘钨丝微电极(Merrill 与 Ainsworth 1972 方法,不镀铂),在 3 只清醒猕猴(1 只恒河猴 Macaca mulatta,6.5 kg;2 只食蟹猴 Macaca fascicularis,3.5 与 4.5 kg)坐于猴椅上进行;动作电位经放大转为数字脉冲,由 Microvax 2 计算机在线分析。电极位置用 X 光片相对永久植入的参考电极与骨性标志定位(以蝶骨后翼为参照),并结合连续 50 μm 切片上的参考电极与部分微电极轨道末端的微损毁重构。实验一:在围住猴子的屏幕上开 6 cm 孔(对应 12 度视角)、实验者在 1 m 外以中性表情做头动——腹侧/背侧屈颈与逆/顺时针各向异性转动,幅度约 90 度、历时 1.5 秒;定量测试用手工触发窗口内的每秒脉冲计数。确定偏好运动方向后,把偏好运动与反向运动在中点朝向为正立、90 度与 180 度各向同性旋转、左右侧位、背后等最多 16 种条件下随机或平衡呈现;真实头动靠实验者弯身实现,视频刺激靠旋转显示器实现。另测控制刺激:光栅与非面孔图像、头的平移与迫近、手与刷子的转动等,并测试不同个体、三维头模型、不同距离与二维录像。统计用双因素方差分析比较偏好运动与反向运动在多种处理间的反应。实验二:37 个面孔选择性神经元接受不同个体、不同视角的静态面孔刺激。9 个细胞用三维真面孔经 1 秒快门呈现;28 个用数字化面孔(256×256 像素、256 灰阶,帧存随机呈现),其中 13 个看两个面孔的 8 种视角(左右 45 度与全侧位、正立、上下俯仰、背后),15 个看三个面孔的 21 种视角(水平每 22.5 度一档加俯仰)。猕猴在测试中同时做小圆点(S+ 白圆 0.5 度舔果汁、S- 黑圆不舔以免高渗盐水)辨别任务以保证注视;眼位用植入的银/氯化银电极做眼电图(EOG)监测(精度 1–2 度),注视不稳或 600 ms 内眼动超过 3 度的试次剔除;反应取刺激呈现后 100–600 ms 的脉冲数,每套刺激重复 4–10 次(每次新随机序列)以供方差分析。
主要结果
- 约半数被筛细胞中挑出一小组"头转动"选择细胞,且全部是物体中心编码。在预筛的 1865 个神经元中,12 个对头的各向异性转动选择性反应(4 个偏好腹侧屈曲、5 个背侧屈曲、2 个逆时针、1 个顺时针),其中 10 个在宽范围起始朝向下做了完整测试;它们对静止刺激一律无反应。全部 10 个细胞在双因素方差分析中呈现高度显著的"物体中心转动方向"主效应,与起始朝向无关(如 Iil176:F=220.4,P=0.000018;NN0756:F=2382.1,P<0.001,测了 16 种朝向;表 1)。
- 倒置与背位不翻转选择性——物体中心编码的关键证据。测过倒置的 6 个转动敏感细胞全部在头倒置时仍响应同一运动(图 2、图 3);QQ018 对三维头的腹侧屈曲在正立、倒置、任一侧位、背后观察时都强烈反应,对背侧屈曲几乎无反应,对垂直平移与对照运动不高于基线(图 4)。更关键的是 QQ018 对二维视频的测试:把显示同一头动录像的显示器旋转 0、90、180 度,腹侧屈曲特异性照样保持(图 5)——说明三维物体中心描述可以从二维图像算出,并排除了深度线索或光照变化的解释。
- 选择性是"面部专属"且对个体泛化。这些细胞对平移、迫近、非面部物体(手、刷子)的转动不反应(仅 1 例泛化到手的转动);4/4 个受测细胞在换用不同个体做同一头动时保持反应。特例:Iil176 除腹侧屈曲外还选择性地响应闭眼(眼睑下落)与眉毛向眼的运动,倒置后仍保持(图 8),且与注视方向无关。
- 身份编码部分地跨越视角,但多数仍带视角调制。37 个面孔选择性细胞中,18 个对不同个体在跨越各向异性变换的视角间保持一致的反应差(身份主效应显著;图 10a);但其中绝大多数(正文统计为 15/18,摘要作 16/18)的响应仍受视角显著调制(图 10b:QQ0740 对 GCB 的反应强于 MEH,且侧位、四分之三侧位与仰视时差异更大)。反向地,19 个无一致身份差异的细胞中 16 个有显著的视角主效应——纯观察者中心编码。
- 最优视角广泛分布、调谐普遍不尖。向量分析(图 11)显示各细胞的最优视角散布在很宽的范围,并不聚集于正脸或 90 度侧位;更多细胞偏好能看到头部前部的视角(正面信息量大),但多数细胞对视角的敏感度(向量长度 0–1 的对比度式度量)不高,反应在视角间有相当的不变性或泛化。两类细胞在解剖上弥散分布于同一区域(图 9、图 12),且常与静态视角选择细胞相邻。
图注解读
图 1 · 一个头动选择细胞的原始反应
原文图注:Fig. 1. Examples of the responses of one head-movement selective neuron (Iil176) to some of the stimuli: ventral and dorsal flexion of a head presented through the shutter, and static faces presented on a video monitor. The spontaneous activity during presentations during which the shutter was opened with no stimulus visible is also shown. Six or 7 peristimulus time rastergrams and a peristimulus time histogram are shown for each stimulus. The onset of the visual stimulus was at time 0. The bin width was 10 ms. The means and the standard errors of the responses are shown in this and subsequent figures
这是细胞 Iil176 的原始数据展示:每组刺激(快门后呈现的头腹侧屈曲、背侧屈曲,以及显示器上的静态面孔)配 6–7 条刺激周围时间栅图(peristimulus rastergram)加一条直方图,时间 0 为刺激呈现,格宽 10 ms,最右一栏是快门打开但无刺激可见时的自发活动对照。读图要点:腹侧屈曲一栏在 0 时刻后放电爆发,背侧屈曲与静态面孔各栏几乎贴着自发水平——强烈的选择性与低自发放电是本文全部转动敏感细胞的典型面貌。
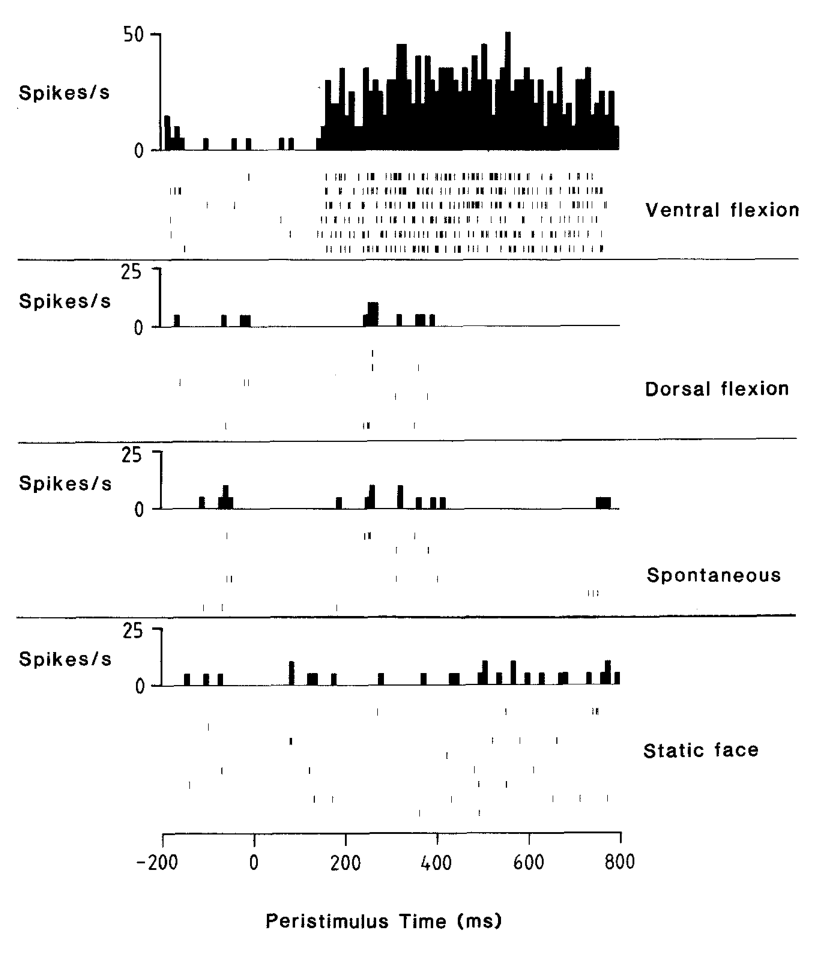
图 2 · 倒置不改变腹侧屈曲偏好
原文图注:Fig. 2. The responses of neuron Iil176 showing selectivity for ventral flexion of a head across a wide range of cases, tested in upright, inverted and other midpoint orientations. These responses were maintained across different individuals. V = ventral flexion; D = dorsal flexion
横轴按不同中点朝向(正立、倒置及其它)分组,每组内并排 V(腹侧屈曲)与 D(背侧屈曲)两根柱,纵轴为平均放电率(0–50 spikes/s,误差棒为标准误)。无论头是正立还是倒置、无论用哪个人做刺激,V 柱都显著高于 D 柱。这正是结果 1、2 的核心证据:倒置会反转视网膜上的运动方向,细胞的偏好却纹丝不动。
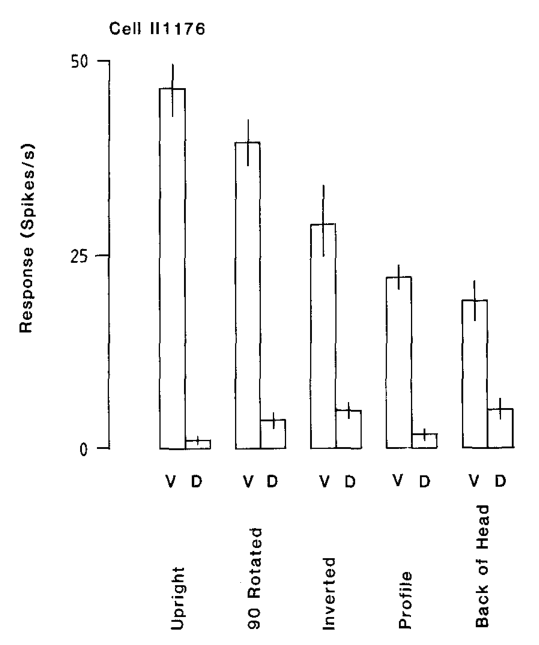
图 3 · 八种处理下同样的腹屈偏好
原文图注:Fig. 3. A neuron (NN0521) responsive to ventral flexion (V) versus dorsal flexion (D) tested across a wide range of treatments. These include full-frontal view, right and left profile, and back of the head, in both upright and inverted conditions
细胞 NN0521 在正面、右侧位、左侧位、背后四种各向异性视角 × 正立/倒置两种状态共八种处理下的 V/D 对比柱状图。三因素方差分析显示腹屈对背屈高度显著(F(1,3)=215.1,P<0.001),其它主效应与交互都远达不到显著。它把"物体中心选择性"从 Iil176 一例推广到多视角全条件,支撑结果 1。
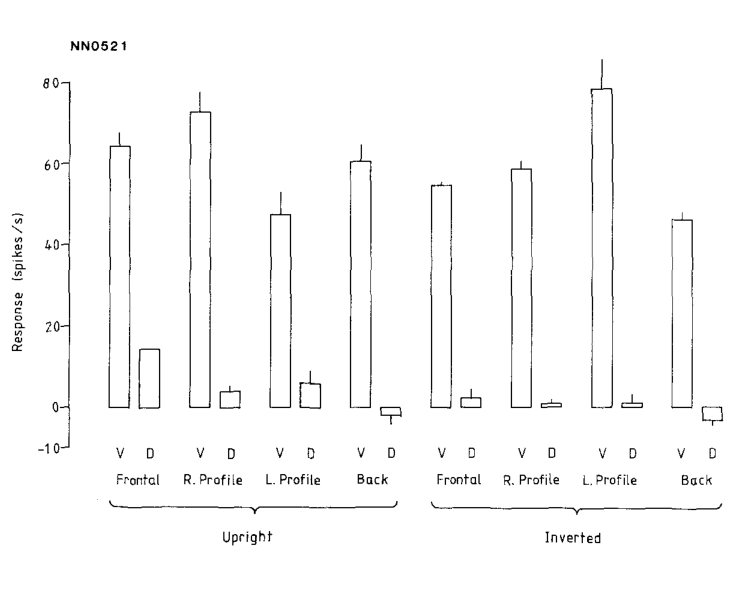
图 4 · 三维头模型下的全视角不变性
原文图注:Fig. 4. Responses of a neuron to ventral flexion of the head viewed in 3 dimensions, showing invariance across isomorphic and anisomorphic transforms. The neuron shown here (Cell QQ018) responded vigorously to a head undergoing ventral flexion (V), whether the head was viewed upright, inverted, presented in either profile, or seen from behind. There was little response to dorsal flexion (D), and the response to vertical translation was minimal
细胞 QQ018 对三维头模型的反应柱状图:正立、倒置、左右侧位、背后等条件下的 V 与 D 对比,外加垂直平移的控制条件。V 柱在各视角下都高,D 柱与平移柱贴近基线。这一图例同时充当了阴性对照的示范——所有转动敏感细胞对平移等控制运动都不显著高于基线(结果 2、3)。
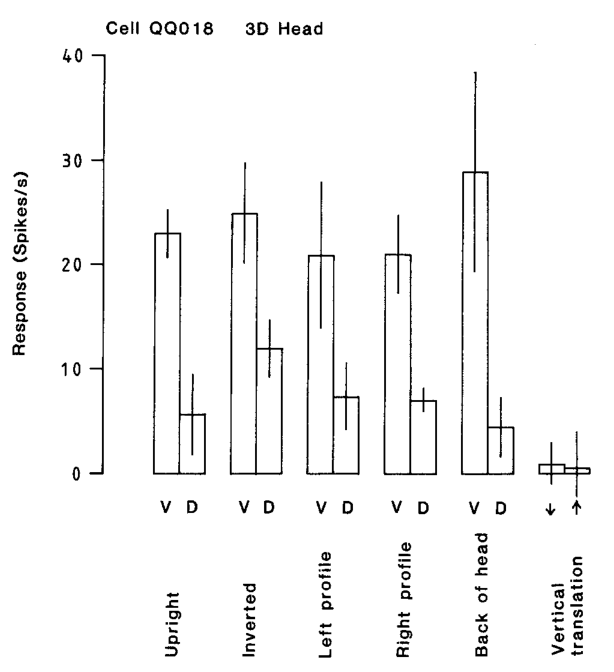
图 5 · 二维录像同样不破坏选择性
原文图注:Fig. 5. Responses of the neuron in the previous figure (QQ018) to a video sequence showing ventral flexion of the head. Specificity for ventral flexion (V) versus dorsal flexion (D) was maintained across 90 deg and 180 deg isomorphic rotation
同一细胞(QQ018)对视频头动的反应,横轴为显示器被各向同性旋转的度数(0、90、180),每组仍是 V/D 对比。录像中的个体与图 4 的三维头还不是同一个人。V 的优势在三个旋转角度下都保持,说明该细胞从纯二维图像中就提取了物体中心的三维运动描述——这是排除"深度线索或光照变化造成视角不变性"这一替代解释的关键控制(结果 2)。
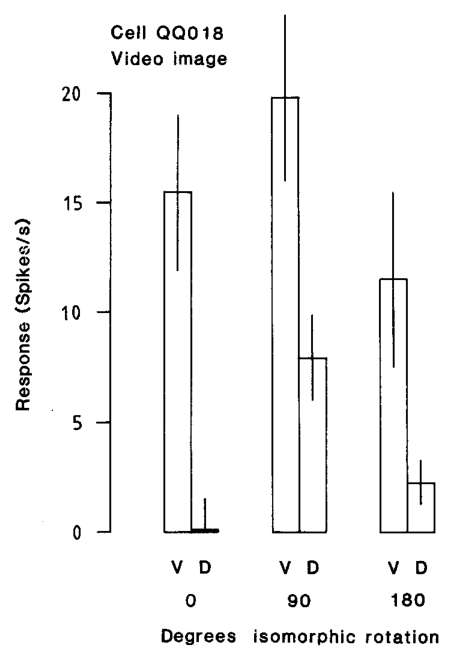
图 7 · 逆时针转动选择细胞的 16 条件检验
原文图注:Fig. 7. The responses of a neuron responding to counterclockwise movement of the head (as viewed from above). This neuron (NN0756) was tested across a wide range of cases. Upright and inverted conditions were tested for face forward, left profile, back of the head, and 90 deg isomorphic rotation. Rightward arrows indicate clockwise rotation, and leftward arrows indicate counterclockwise. The sector from which the head rotated to center (full face) is indicated by R or L (see text)
细胞 NN0756 的大规模检验:正立与倒置两大组,每组内按正面、左侧位、背后、90 度各向同性旋转四种中点朝向再分,每组内又分从右侧(R)还是左侧(L)转回正面、顺时针(右向箭头)还是逆时针(左向箭头)。四个不同运动在每个参考位下受测,物体中心转动条件高度显著(F(1,3)=2382.1,P<0.001),其它一切处理均不显著。这是表 1 中 F 值最大、条件最多(16 种朝向)的细胞,是结果 1 的最强单例。
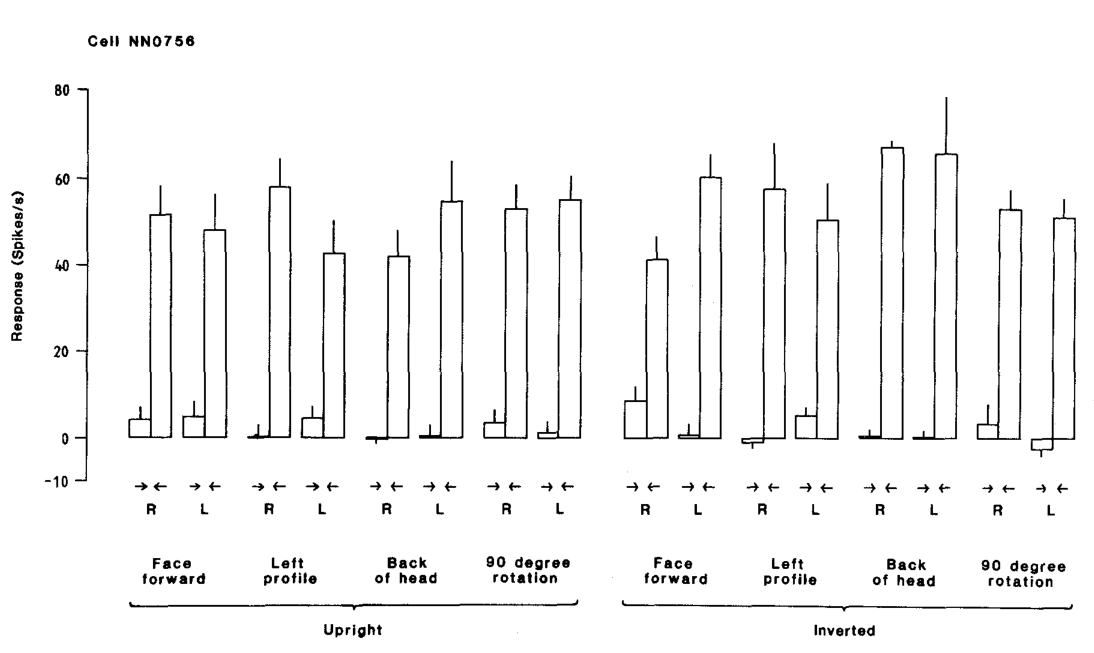
图 8 · 同一细胞还编码"闭眼"这一面部动作
原文图注:Fig. 8. The responses of neuron Iil176 which showed selectivity for closing movements of the eyelids and movement of the brow toward the eye, maintained even when the face was presented in inverted orientation
细胞 Iil176 对面部局部动作的反应:对眼睑下落(闭眼)反应最强,对眉毛向眼部的运动反应较弱,且倒置呈现时依然保持;对单纯的眼动(注视方向变化)无差别。作者特别看重这个双重选择性——低头与闭眼在猕猴的支配互动中常一起出现,同属"打断社交接触"的行为组,这为"输入空间中的相关学习塑造细胞反应"的假说提供了素材(结果 3 的行为学延伸)。
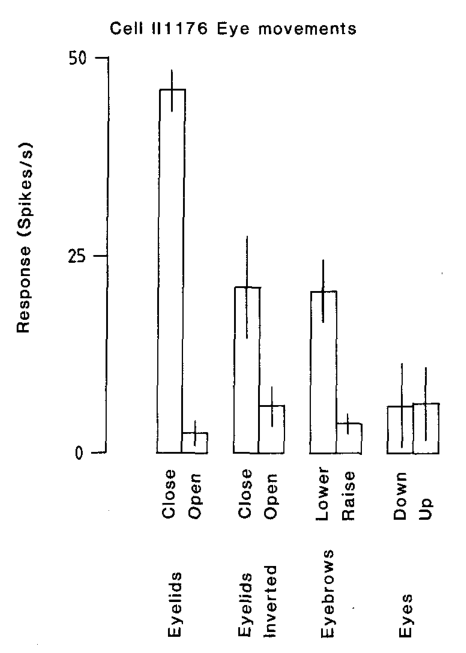
图 9 · 实验一细胞的位置重构
原文图注:Fig. 9. A schematic representation of the location within the cortex in the superior temporal sulcus of the neurons described in experiment one. The antero-posterior position of each neuron relative to sphenoid is listed in Table 1. The population of neurons studied was located within the cortex lying between the dashed lines
实验一所报细胞在颞上沟皮层内的位置示意图(前后位置以蝶骨为参照列于表 1,左右与深度在此图上标出,虚线之间为取样皮层)。要点是这些细胞并非聚集成一小块,而是散布在已报告过面孔反应神经元的各个构筑区内,且常紧邻对某特定静态视角有选择性的细胞——这为"观察者中心与物体中心编码在同一区域共存"的说法提供了解剖注脚。
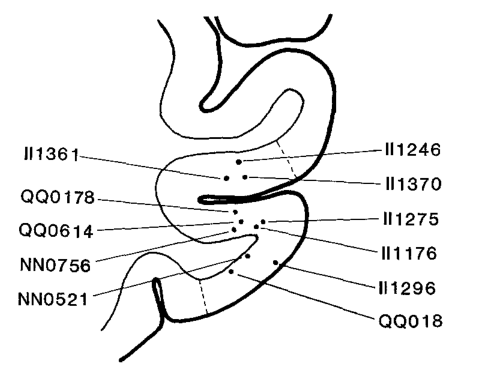
图 10 · 身份差跨视角保持:极坐标图上的两条线
原文图注:Fig. 10a, b. The responses of two neurons which responded differently to the faces of two individuals irrespective of viewing angle. Responses to two different faces are marked as solid and dashed lines on polar plots which show the viewing angle. Zero degrees is the front of the face, and 90 deg is the left profile of the stimulus face. The firing rate response is shown by the distance from the center of the polar plot, and the calibration circles show spikes/s, a This neuron responded consistently differently to two faces across most orientations except for the back of the head. b An example of a cell showing consistent differences between individuals with some modulation by viewing angle as well, in that the cell responded better to profile views than to other views
极坐标图:角度为观察视角(0 度为正脸,90 度为刺激面孔的左侧位),离圆心的距离为放电率,实线与虚线分别对应两个不同的个体,校准圆标出 spikes/s。(a) 中的细胞除背后视角外,在几乎所有朝向上对两张脸都保持一致的差距——接近理想的身份编码;(b) 中的细胞(QQ0740)对个体 GCB 的反应整体高于 MEH,但差距在侧位、四分之三侧位与仰视方向被进一步放大——身份信号叠加了视角调制。这两幅图并列呈现了结果 4 的两种形态:完全的与不完全的跨视角身份编码。
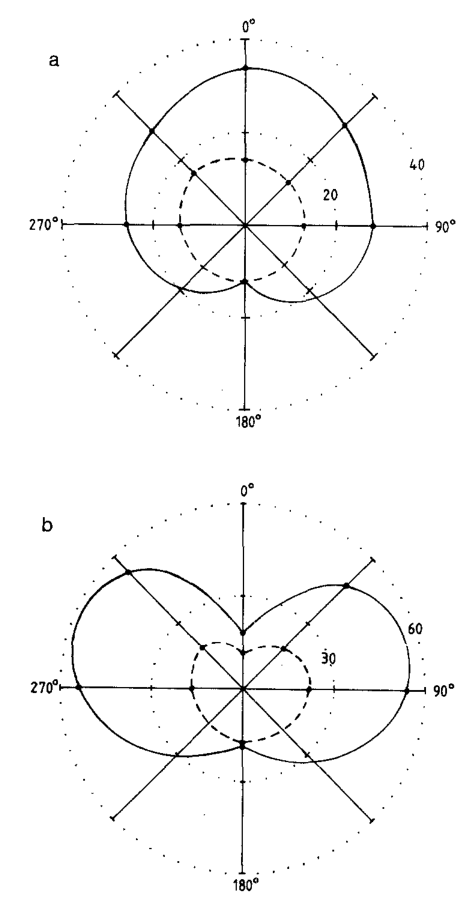
图 11 · 最优视角的分布与视角敏感度
原文图注:Fig. 11. This polar response plot shows the viewing angle at which the different neurons responded optimally. Each line represents the optimal viewing angle shown by one of the neurons to one face. The length of the vector indicates the sensitivity of the neuron to viewing angle, as described in the text
每个向量代表一个细胞对一张脸的最优视角(方向由对各视角反应做向量合成求得,向量长度按对比度式公式 (Xmax−Xmin)/(Xmax+Xmin) 度量,0 到 1)。读图要点:向量的方向散布极广,并不聚在正脸或侧位;长度多数偏短,说明大多数细胞对视角的调谐并不尖锐、跨视角泛化明显;而方向略偏向"能看到脸的前部"的一侧,与正面信息量更大的事实一致。此图支撑结果 5,并暗示系统并非只存储少数几个特征视角。
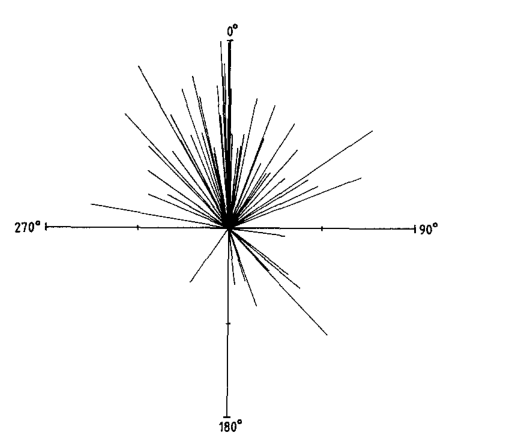
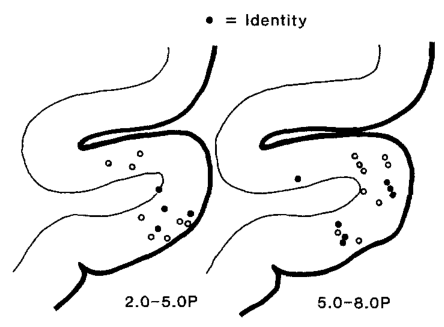
图 12 · 实验二细胞的位置重构
原文图注:Fig. 12. A schematic representation of the location within the cortex in the superior temporal sulcus of the neurons described in experiment two. The responses of neurons which responded differently to different individuals across anisomorphic transforms are shown for two monkeys by the closed symbols. The open symbols show the recording sites of the other neurons analysed
实验二细胞的记录位置:实心符号是两只猴中"跨各向异性变换区分个体"的细胞,空心符号是其它被分析的细胞。与图 9 呼应,身份选择细胞与视角选择细胞混杂分布在同一片颞上沟/颞下皮层区域,没有按坐标系分区的迹象——这直接支撑讨论中"该区是两种表征交接的加工阶段"的观点。
讨论
作者将实验结果分为两部分进行论证。第一,物体中心运动编码的直接证据:在测试倒置条件的 6 个转动敏感细胞中(包括 QQ018、NN0521、NN0756、Iil176 等),当刺激头部倒置时均维持了原有的动作选择性,而倒置操作反转了视网膜与观察者坐标系中的运动矢量;QQ018 的二维视频测试进一步表明,物体中心的三维动作表征可直接从二维图像特征中计算得出。第二,身份编码表现出部分视角不变性:37 个测试细胞中 18 个能够跨视角区分不同个体,但多数放电仍受观察视角调制,作者据此推论此类神经元处于观察者中心向物体中心转换的中间表征阶段,并提出视角不变表征可能通过在同时编码视角与个体信息的神经元之间建立联结可塑性而逐步形成(Perrett et al. 1987;Rolls 1987);图 11 中分散的最优视角分布亦表明视觉系统并非仅表征少数特定的规范视角。此外,作者指出身份信息依托群体编码(ensemble encoding),不同个体诱发不同强度的放电而非全或无式的单一细胞响应。
文中同时分析了具有观察者中心特性的细胞(如偏好转头背离观察者的运动细胞及特定静态视角选择性细胞),认为不同坐标系编码在同一皮层区域的共存反映了从多视角图像向稳定三维表征过渡的计算层级。在行为功能方面,攻击或屈服等社交动作常伴随头部垂直俯仰或水平偏转,在群体交互中常从不同视角或非正立位置被观察,具备物体中心不变性的动作识别具有生态适应价值;Iil176 细胞对低头与闭眼的双重敏感性亦与猕猴中断社会接触的行为组合相吻合。在方法局限方面,转动敏感神经元的样本规模较小(完成全部测试者共 10 个),基于联结学习构建视角不变性的假说主要基于理论推导,尚缺乏直接的突触可塑性生理证据。
一句话总结
本研究通过头部倒置与多视角变换实验,证实猕猴颞上沟皮层存在以物体自身为参考坐标系的头部运动敏感神经元,并揭示了面孔个体身份编码在跨视角辨别中呈现出介于观察者中心与完全物体中心之间的连续过渡特性。