这篇综述正面回应一个流行的二分法:Milner 与 Goodale 主张"行动视觉"(vision for action, VFA)与"知觉视觉"(vision for perception, VFP)分属背、腹两条通路。Lebedev 和 Wise 汇集错觉心理学、神经心理学与猴单细胞记录的证据,提出反驳:高级皮层区(前额叶、后顶叶、下颞叶)大多同时参与知觉与动作控制,两套系统在解剖上并不分离,只能靠行为和生理学手段分离开来。文章以其课题组自己的实验为压轴——前额叶皮层中两群混居的神经元,一群报告"猴子看见了什么",一群报告"猴子往哪儿看"——是"同一脑区双功能"论点最直接的证据。
研究背景
"知觉是猜想、是预测性假说,可能是错的"(Gregory),而我们对物体的物理交互却相当精确——如果知觉充满错觉,那些交互凭什么准确?过去十年主流答案是 Milner 与 Goodale 的"双视觉系统"理论:一个系统把在线视觉输入映射到运动坐标以引导动作(VFA),另一个系统支撑视知觉(VFP)。临床与心理物理证据支持这种"分离论"(dissociationist view):视觉性失认(visual agnosia)患者认不出物体却能操纵它,Balint 综合征患者则相反;最著名的是患者 D. F.,缺氧造成弥漫性脑损伤后,她既不能用言语也不能用手势报告狭缝的朝向,却能准确地伸手穿过同一条狭缝。正常人身上也有类似证据:Humboldt 在 1799 年记下的"自主运动错觉"(autokinetic illusion)里,黑暗中静止的光点被看成漂移不定,可眼睛的注视却稳稳锁住它——动眼系统至少在某种程度上"免疫"于知觉错觉。
缺口在于:分离论讲的只是行为或功能上的分离,并没有证明两套系统各有各的解剖座位。恰恰相反,按分离论去给脑区"贴标签"的努力接连碰壁:额叶、基底节、背侧流都先后被提名为 VFA 的" seat",又都被非运动信号的存在或缺失所动摇。那么,如果高级皮层区并不按 VFA/VFP 解剖划分,神经生理学家还怎么独立研究这两个系统?猴的知觉又只能通过外显动作来报告,而复杂的目的性行为完全可以在无觉知状态下完成(如盲视患者对盲野刺激仍能做出运动反应)——动作报告本身不能证明觉知。这正是本文要系统梳理的问题。
研究思路
作者的论证策略是三步走。第一步先为"分离论"立靶:综述错觉实验(框架位移错觉、尺寸对比错觉等)中知觉与动作的 dissociation,同时把批评者的质疑(注意分配不同、手指独立控制两个边缘点、手的遮挡、记忆参与等)与辩护者(Dyde & Milner 的高低视觉错觉二分、记忆依赖效应)一并摆上台面,得出"行为上可分离、且主要限于高级视觉"的结论。第二步做解剖批判:逐一检验额叶、基底节、背侧流三个候选的 VFA 解剖座位,用"运动区里有知觉信号、知觉区里有运动信号"的双向证据说明任何解剖划分方案都站不住。第三步是建设性的:既然解剖不分离,就靠巧妙的任务设计在生理学上分离两套系统——文中系统总结了五大策略(双眼竞争、盲视测验、后向掩蔽、抽象规则、错觉),最后以作者自己的框架位移错觉单细胞实验收尾:强迫前额叶神经元"表态",它的活动反映的是光点的物理位移(VFA),还是猴子对位移的知觉报告(VFP)。
方法学的自觉贯穿全文:作者明确把"知觉"定义为意识觉知(与陈述性记忆、外显知识同义),并指出研究知觉的神经关联时必须考虑的大量变量(系统状态、注意、预期输入、无意识加工、反应选择与抑制、感觉反馈等),以及两条关键设计原则——用随机强化或不强化的探测试次防止操作条件化混淆、让"同一知觉对应不同反应"或"同一反应对应不同知觉"成为可能。
方法
本文是综述,其"材料"是被引实验的范式设计,其中最核心的是作者课题组的框架位移错觉(frame-shift illusion)猴实验(Lebedev, Douglass, Moody, & Wise, 2001)。范式源自 Wong & Mack (1981):注视点旁有一个光点嵌在背景方框中,方框与光点会先后离散地移动;当方框位移幅度大于光点时,人会把光点的位移方向看反(例如光点实际右移 1 度、方框右移 2 度,被试报告"光点左移"),但他们的扫视眼动仍准确地落向光点的真实位置。猴实验据此设两个任务:VFP 任务中,猴注视两个报告目标之一来报告光点"看起来"往哪移;VFA 任务中,猴直接扫视光点本身去注视它。两个任务的刺激与眼动在位移幅度、精度要求上完全匹配,只是报告对象不同——信息量相同,排除了"任务难度差异"的混淆解释。行为上验证猴子真的经历了错觉(框架位移更大时报告与框架相反的方向;光点与方框一致移动时报告接近机会水平;错觉与一致移动探测试次是几个月后才加入的稀有试次且任意反应都有强化,猴子按人类错觉模式报告的比例约 83%,远超"向强化适应"预期的约 50%,说明报告并非单纯的操作条件化产物)。记录部位为猴前额叶(anterior frontal cortex)皮层,按"在 VFP 任务中是否有显著方向信号"或"在 VFA 任务中是否有显著方向信号"分别挑选神经元群体,再交叉检验其信号在另一任务中的表现,并用按眼动方向或按视觉输入匹配的试次子集对照。
其余被引方法包括:Cowey & Stoerig 的猴盲视范式(单侧切除 V1 后测"报告没看见"的能力)、Thompson & Schall 的后向掩蔽范式(目标出现 50 ms 后用覆盖全部八个可能位置的面具掩蔽,猴用扫视/不扫视报告目标有无)、Logothetis 与 Bradley 等的双眼竞争与结构自运动双稳知觉范式、Wallis 等的抽象规则任务(匹配/非匹配规则逐试次切换、每日用新刺激)。改为:本文是综述,无统一样本量;作者的框架位移实验使用1只猴,图8汇总4只猴,其余多数被引实验的完整样本量和统计细节需查阅原始论文。
主要结果
-
知觉与动作的行为分离真实存在,但受错觉来源层级与记忆的调制。尺寸对比错觉(Ebbinghaus/Titchener 圆盘)欺骗知觉报告,而抓握时的手指张开程度相对免疫(Aglioti 等,1995;图 3);框架位移错觉欺骗知觉报告,扫视眼动却仍准确(Wong & Mack,1981;图 2)。Dyde & Milner 进一步区分:轮廓交互错觉源于 V1/V2 一类的低级视觉,它同时影响知觉报告和伸手动作;棒-框错觉源于高级视觉,只影响报告不影响抓握;把两种错觉以相反符号叠加使知觉效应抵消时,知觉误差下降而动作误差不变。记忆是重要边界条件:刺激短暂闪现或加入延迟后,动作失去对错觉的免疫(图 4C 的 Müller-Lyer 图形持久呈现时指点顶点准确,闪现后靠记忆指点则出错;Wong & Mack 的"回看扫视"——回到记忆中的起始位置——明确反映错觉记忆)。故 VFA 优先用在线视觉输入,没有时才动用 VFP 存储的信息。
-
批评者的多数质疑可被"错觉来源层级+显式记忆"框架吸收,但运动免疫并非普遍。单盘呈现时尺寸错觉同等影响知觉与抓握;错觉还影响握力、运动时间、速度乃至按 Fitts 定律变慢。作者不回避这些"动作受骗"的案例,而是把它们归因于低级视觉来源的错觉或显式记忆的介入,结论是:VFA 与 VFP 在行为上可分离,"尤其对高级视觉所涉及的信息加工而言"。
-
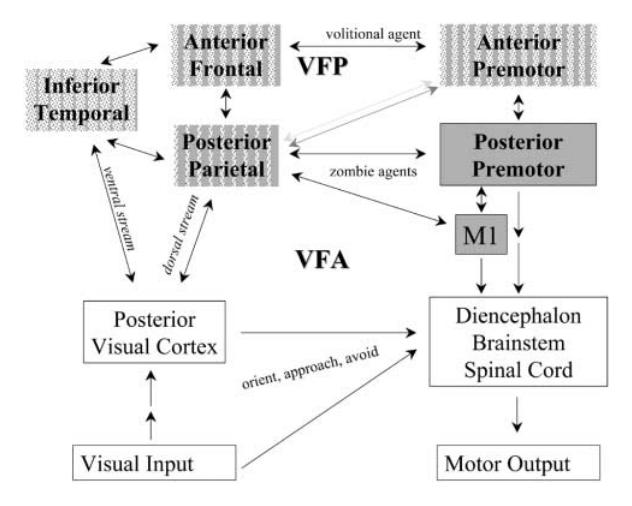
给 VFA 找"解剖座位"的三次提名全部失败。额叶论:传统上"中央沟之前是运动"的感官—运动层级图式(可追溯到 Ferrier 1876;图 6、图 7)即使对 M1 都不成立——M1 有心理旋转、感觉线索、序列决策、肌肉振动错觉、振动触觉辨别等非运动信号,前运动区有镜像神经元等,前额叶活动更是既非感觉亦非运动而是二者的组合(作者对 Constantinidis 等"前额叶纯感觉"主张给出运动准备性的替代解释)。基底节论:其解剖前提("漏斗式"回到运动区)早已被推翻——接受下颞叶与前额叶输入的纹状体/苍白球区把输出送回同样的皮层区(Middleton & Strick 2000),基底节病人的缺陷更像是动作"持续释放"而非丧失,尾状核多巴胺耗竭的狨猴反而更专注旧规则、更不分心。背侧流论:后顶叶参与知觉的证据很多(变化觉察 fMRI 同时激活背腹两流与前额叶、TMS 干扰知觉任务、双侧后顶叶病人既不能伸手也不能描述同一目标位置、观察动作激活执行动作的同一顶叶区、编码手臂位置的顶叶神经元对"逼真假手臂"有反应);腹侧流也参与动作——条件性运动学习(按颜色形状选动作)需要下颞叶—前额叶完整连接而非后顶叶完整,后顶叶病人靠目标颜色变化纠正伸手的时间几乎正常。结论:两条流都同时扮演知觉与动作角色,只是按各自处理的信息类型(腹侧的颜色/纹理/形状 vs 背侧的空间信息)有所偏重(图 12)。
-
五大行为—生理策略在猴身上把 VFA 与 VFP 分离开来。双眼竞争:同一输入对应两种交替知觉,猴报告的时间模式与人一致;对竞争刺激不给任何反馈,排除了条件化解释;低级视区只有少量神经元跟随知觉报告,腹侧流高级区则是多数(Sheinberg & Logothetis 1997;MT 区对双稳透明圆柱的报告相关活动同理,Bradley 等 1998)。盲视测验(图 8):切除单侧 V1 的猴能对盲野单点伸手(VFA 保留),却在"报告没看见"任务中选择"无刺激"选项(VFP 受损),与人盲视对应——尽管作者提醒这类似消退现象、也可能是跨半野反应选择问题。后向掩蔽(图 9):FEF 的视觉神经元早期瞬态反应在"命中"与"漏报"试次差别很小,不能单独作为知觉的神经关联;随后的选择神经元与运动神经元的持续活动才清楚反映报告——作者采纳 Thompson & Schall 的解读:第 3 层的选择神经元参与知觉与注意(借其向纹外皮层的投射),第 5 层的运动神经元执行报告动作,故 FEF 内存在主要服务于 VFP 的群体。抽象规则:前额叶大比例神经元的活动反映"规则"而非呈现的刺激(Wallis 等 2001),且用了逐日新刺激来防"逐项记忆",不过作者指出未报告每个新刺激首试次的规则信号,留有余地。
-
作者自己的实验:前额叶中两群混居的神经元分别携带 VFP 与 VFA 信号。VFP 细胞(图 10)的方向信号跟随猴的知觉报告:一个"左偏好"细胞在猴子报告"左移"时高放电——不论光点实际向哪移、不论报告用的是向左还是向右的扫视,也不论报告是否出自错觉或光点与框架一致移动的试次;同样的细胞在 VFA 任务中(无论按眼动方向还是按视觉输入匹配试次)完全失去方向信号。VFA 细胞(图 11)则反映光点的实际位移或扫视方向:从 VFA 任务中选出的这类细胞在 VFP 任务中信号显著衰减,尤其表现在运动发起之前。两类细胞在前额叶内相互混居,且分类非全或无、中间类型常见——符合分布式网络的预期。由于两任务的信息需求与动作精度完全匹配,这种分离不能归因于信息量或难度差异。
-
结论与两种解释。VFA 与 VFP 在行为和生理上可分离、在解剖上不可分离;后顶叶、下颞叶、前额叶等高级区都同时参与两者(图 12)。高级皮层中出现视觉运动信号至少有两种不矛盾的解释:其一,这些信号参与对"自己动作"的知觉(经由再传入 reafference 或传出拷贝/伴随放电 efference copy,见图 1 虚线);其二,它反映两系统不同的加工分工——VFA 追求与物理世界交互所需的计算精度,VFP 生成关于"外面可能有什么"的猜想式假说。作者进而提出若干 VFA 系统(皮层下的标准映射、顶叶—额叶的转换映射、下颞—额叶的随意映射)与一个 VFP 系统的"抽象映射"(按猜想来报告,见表 1),并把从"用视觉信息引导行为"到"用猜想引导行为"的过渡视为知觉演化的谦卑起点。
图注解读
图 1 · 视觉、动作与知觉三者关系示意
原文图注:Figure 1: Relation of Vision (V), Action (A), and Perception (P). NOTE: The dashed lines indicate the contribution to perception of action from sensory input (reafference) or efference copy (corollary discharge).
概念图:视觉同时馈给动作(A)与知觉(P)两条支路,动作输出又经由两条虚线反馈进知觉——一是动作引起的感觉输入变化(再传入),二是运动指令的副本(传出拷贝/伴随放电)。这张图确立了全文的一个核心概念:高级区的视觉运动信号未必是"泄漏的运动信息",它们可能正是我们知觉自己动作的来源。它是结果 6 第一种解释的图解。
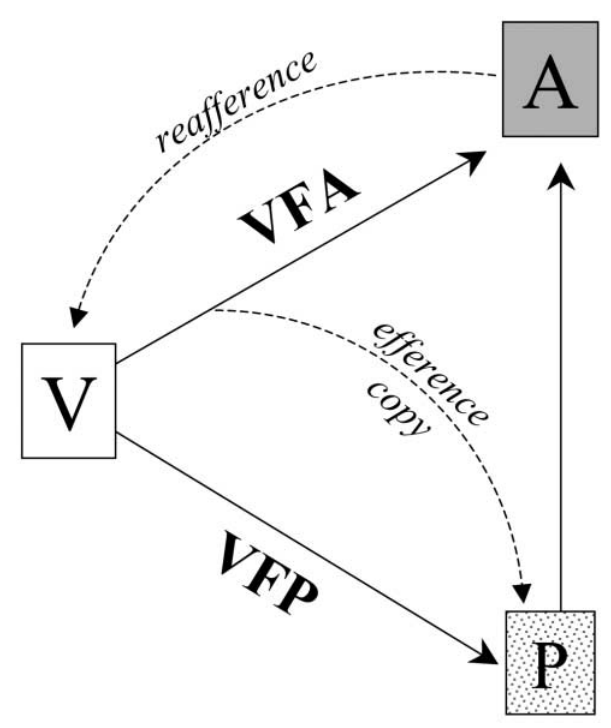
图 2 · Wong & Mack 框架位移错觉
原文图注:Figure 2: Frame-Shift Illusion of Wong and Mack (1981). NOTE: A. Left: A frame (rectangle) and light spot (filled circle) originally appeared in the configuration shown in A1. The frame and the light spot next disappeared and reappeared in the configuration shown in A2, after which the participant responded with a saccade to the light spot and reported its shift direction. Right: Facsimile eye-position record and the participants' reports about light-spot shifts (in these examples, always left). In A, the frame did not shift location from A1 to A2. Accordingly, no illusion resulted and the participant made accurate reports and saccadic eye movements. When the participants, as instructed, "looked back" to the original location of the light spot, participants correctly reversed their pre……
A、B、C 三栏逐级制造错觉:A 栏框架不动,报告与扫视都准确;B 栏框架与光点同向移动,被试把位移"归因"给框架;C 栏光点右移 1 度而框架右移 2 度,被试反而报告"光点左移",但眼位记录显示扫视仍准确地落在光点真实位置(需要向右的扫视)。被试按指示"回看"光点原位时,回看扫视不再免疫、明确偏向错觉记忆的方向。这张图是分离论最经典的行为学证据,也是第 4、5 号图所示猴实验的原型。
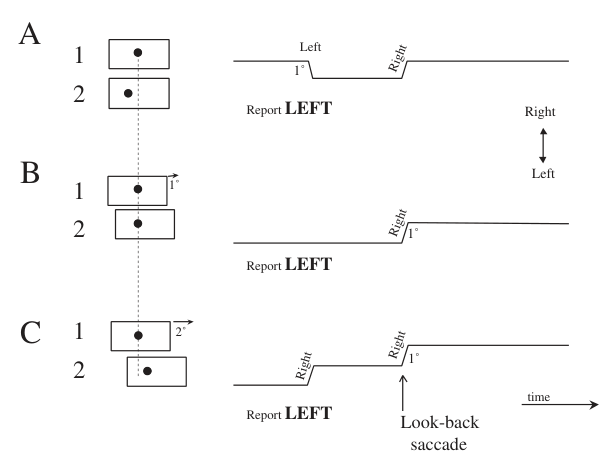
图 3 · 尺寸对比错觉的显示与抓握测量
原文图注:Figure 3: Visual Display for the Size-Contrast Illusion. SOURCE: Reprinted from Current Biology, volume 5, Aglioti, DeSouza, & Goodale, "Size-contrast illusions deceive the eye but not the hand," pp. 679-685, Copyright 1995, with permission from Elsevier Science. NOTE: A. Top: The central disks have equal diameters, but participants perceive those two disks as incongruent. Bottom: The right central disk has a larger diameter, but participants perceive the two central disks as congruent. B. Relative protection of grasping movements from the illusion, for incongruent disks perceived as congruent. The curves show the degree of hand opening as a function of time during a reach to grasp the central disks.
A 上排:两个直径相同的中心盘因周围环绕盘不同而被看成大小不一;A 下排:把右侧中心盘实际做大,被试反而看成一样大。B 是抓握轨迹:纵轴为手的张开程度(mm),横轴为时间(秒),大/小盘两条曲线分开走——即"知觉上等大、实际不等大"的盘,手仍按真实大小张开。此图对应结果 1:知觉报告被骗而抓握相对免疫。
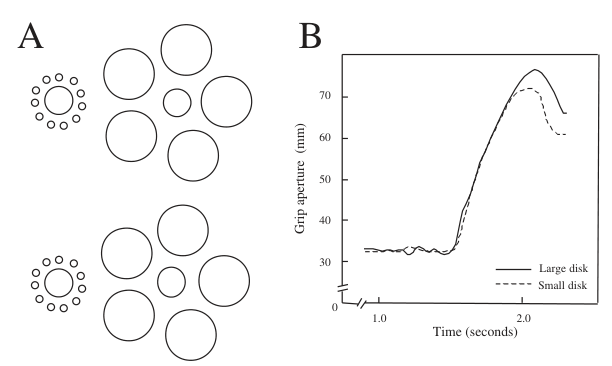
图 4 · 三种视错觉示意
原文图注:Figure 4: A. Contour-interaction illusion. B. Rod-and-frame illusion. C. Müller-Lyer illusion.
三幅错觉小图:轮廓交互错觉(A)、棒-框错觉(B)、Müller-Lyer 箭头错觉(C)。在 Dyde & Milner 的实验里,A 类"低级视觉来源"的错觉同时骗知觉和动作,B 类"高级视觉来源"的错觉只骗知觉——C 则是记忆条件实验(持久呈现指点准确、闪现后出错)所用图形。此图对应结果 1、2 中"免疫有层级和记忆边界"的论证。
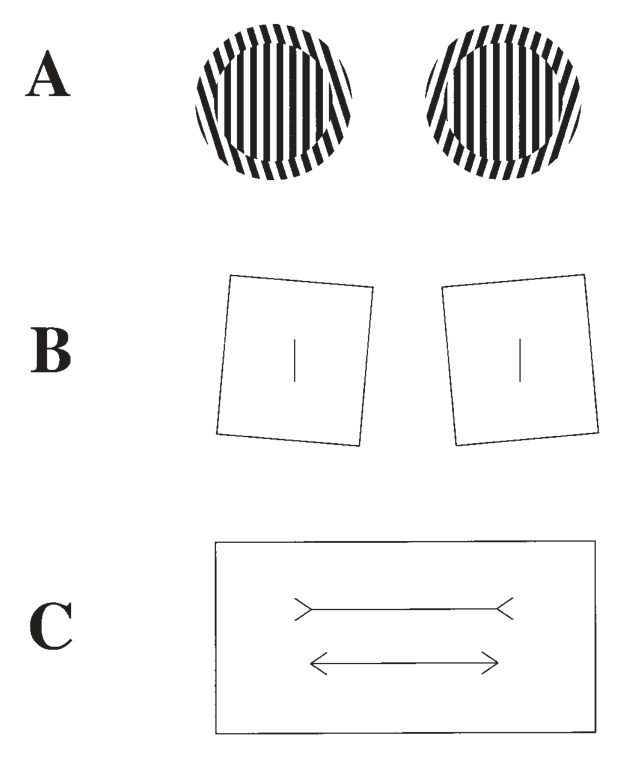
图 5 · Milner & Goodale 双流解剖图式
原文图注:Figure 5: Sketch of the anatomy of the vision-for-action (VFA) (solid gray boxes) and vision-for-perception (VFP) (stippled boxes) systems, modified from that proposed by Milner and Goodale (1996) to incorporate the commonly held view that anterior frontal cortex plays a key role in the VFP system.
分离论的解剖底图:实心灰框为 VFA 系统(背侧流),点刻框为 VFP 系统(腹侧流)——注意这是经作者修改的版本,已把"前额叶主要属于 VFP"这一共识并入其中,以便与 Fuster 的方案(图 6)对照。后文对这一图式的解剖批判(结果 3)正是以此图为靶子。
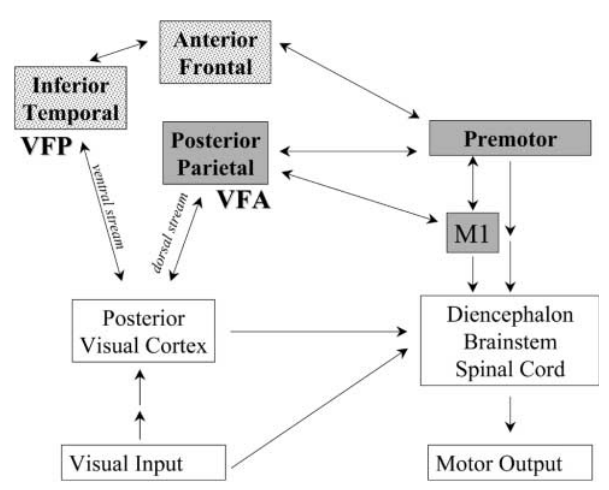
图 6 · Fuster 的知觉—动作循环
原文图注:Figure 6: Cortical Areas Underlying Perception (sensory hierarchy, stippled boxes) and Action (motor hierarchy, solid gray boxes) According to Fuster (2001). SOURCE: Redrawn from Neuron, volume 30, Fuster, "The prefrontal cortex—an update: time is of the essence," pp. 319-333, Copyright 2001, with permission from Elsevier Science.
Fuster 的备选图式:知觉归于感觉层级(点刻框)、动作归于运动层级(实心框),前额叶居于两层级顶端的"知觉—动作循环"处。这是与背腹二分并列的第二种解剖划分——沿前后轴而非背腹轴分。作者用它说明:感官—运动层级这一古老图式从 Ferrier(1876)到 Fuster (2001) 几乎未变,但感觉区与运动区之间的往返连接使这种截然二分难以成立。
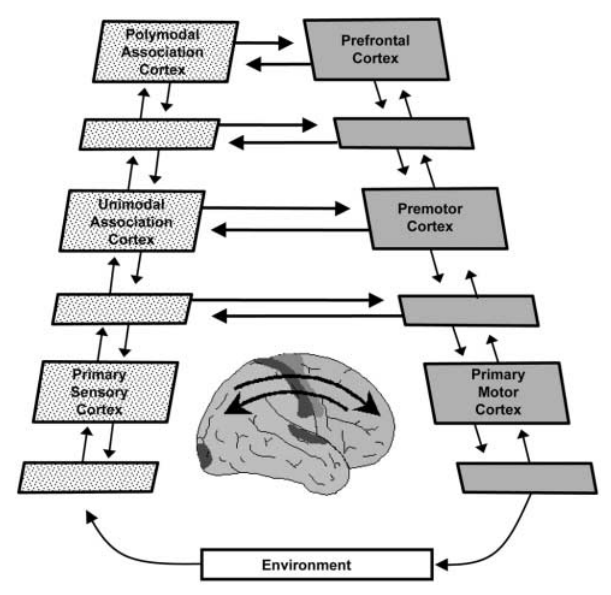
图 7 · Ferrier (1876) 的知觉与动作回路
原文图注:Figure 7: Perception and Action Circuits According to Ferrier (1876), Modified From Macmillan (1992). SOURCE: Redrawn from Macmillan (1992) with permission of Harcourt, Inc. NOTE: Circle F represents the somatosensory cortex; Circle F' represents the motor cortex. The solid gray circles represent the action system; the stippled circles represent the perception system. Circle G represents the anterior frontal cortex. Med. Oblong. = medulla oblongata; Hemispheres = cerebral cortex.
历史彩蛋:1876 年 Ferrier 就画出了几乎同构的"知觉系统(点刻圆)—动作系统(实心灰圆)"双回路,F 为体感皮层、F' 为运动皮层、G 为前额叶。作者引 Macmillan 的重绘来说明"把皮层分成感觉与运动"的观念有多古老——旧观念死而不僵,这正是对额叶/基底节提名逐一检验(结果 3)的思想史背景。
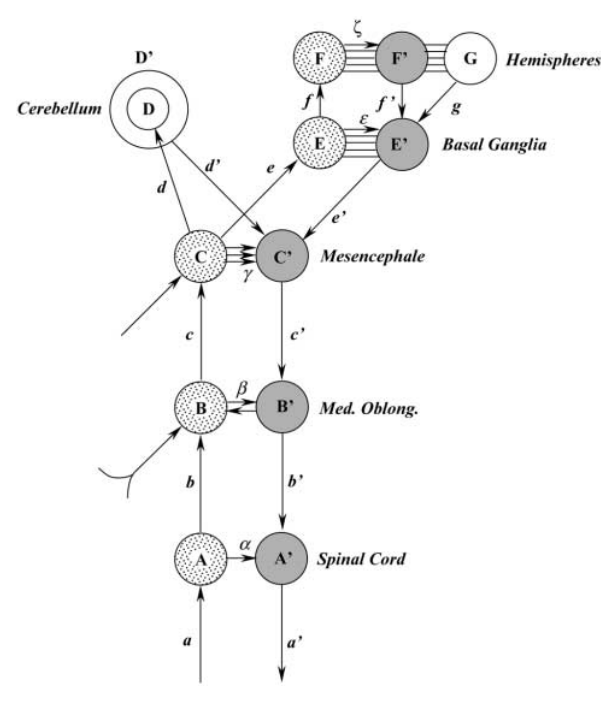
图 8 · 猴盲视测验
原文图注:Figure 8: Blindsight Task. SOURCE: Redrawn from Neuropsychologia, volume 35, Cowey & Stoerig, "Visual detection in monkeys with blindsight," pp. 929-939, Copyright 1997, with permission from Elsevier Science. NOTE: A. The monkeys began each trial by touching a central light spot. Radiating lines indicate illuminated light spots. B. Three of the possible displays that followed A. The monkey touched a light spot if it was perceived (left and right displays) but touched the rectangle otherwise (middle display). C. Results from 4 monkeys, 1 control monkey and 3 with lesions of the left V1 cortex. The control monkey accurately reported stimuli to the left and right as well as trials in which no stimulus appeared. Experimental (Exp.) participants, however, failed to detect stimuli in the bad (right) hemifield and inaccurately reported that no stimulus appeared. The same monkeys could, however, reach to a light spot in the same location when it appeared alone, as in human participants with blindsight.
A:每试次以触摸中央光点开始(放射线示意哪些位置可被点亮);B:随后三种可能的显示——左/右半野出现刺激时触摸该光点,无刺激时触摸矩形"无刺激"框;C:四只猴(1 对照 + 3 只左 V1 切除)的正确报告百分比(纵轴)。对照猴对左右刺激和"无刺激"试次都报告准确;实验猴对损伤对侧(坏)半野的刺激报"无刺激",却能在该位置单独出现光点时伸手触碰——猴版盲视。此图支撑结果 4 中"用报告无知来测 VFP"的策略,也承载作者对其解释的两点保留(类似消退、跨半野反应选择)。
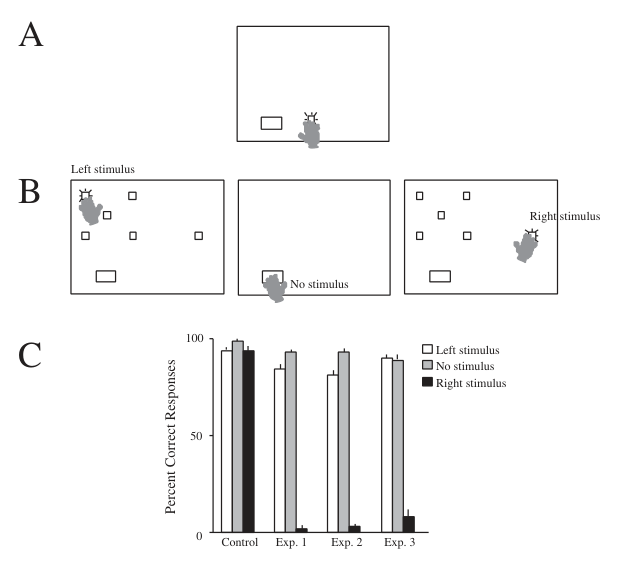
图 9 · 后向掩蔽任务与 FEF 三类神经元
原文图注:Figure 9: Backward Masking Task. SOURCE: Constructed from the original data of Thompson and Schall (2000), with permission. NOTE: A. On some trials, a target for an eye movement appeared at one of eight possible locations (left). A masking stimulus, consisting of an array covering all eight locations, appeared 50 milliseconds later (right). On the other trials, no target preceded the array. The monkey reported target presence by making a saccade toward its location and target absence by making no saccade. The monkey correctly made saccades to the target on some trials (hits) but also failed to do so on other trials (misses). B. Population activity for hits (solid curves) and misses (dashed curves) in the frontal eye field. C. Activity difference between the hit and miss trials for three populations of neurons (labeled beneath each column).
A:部分试次在八个可能位置之一出现目标,50 ms 后覆盖全部位置的阵列作为掩蔽出现;猴以扫视(报告"有")或不扫视(报告"无")作答。B:FEF 群体活动,实线为命中、虚线为漏报,横轴时间(ms)、纵轴平均放电率(spikes/s)。C:命中与漏报之差按三类神经元(视觉、选择、运动)分列。读图要点:视觉神经元的早期瞬态反应在两类试次间几乎无差(早期成分不能单独作为知觉相关物),持续的选择与运动成分才拉开差距。此图支撑结果 4 中"知觉依赖晚期反应成分、FEF 含 VFP 群体"的结论。
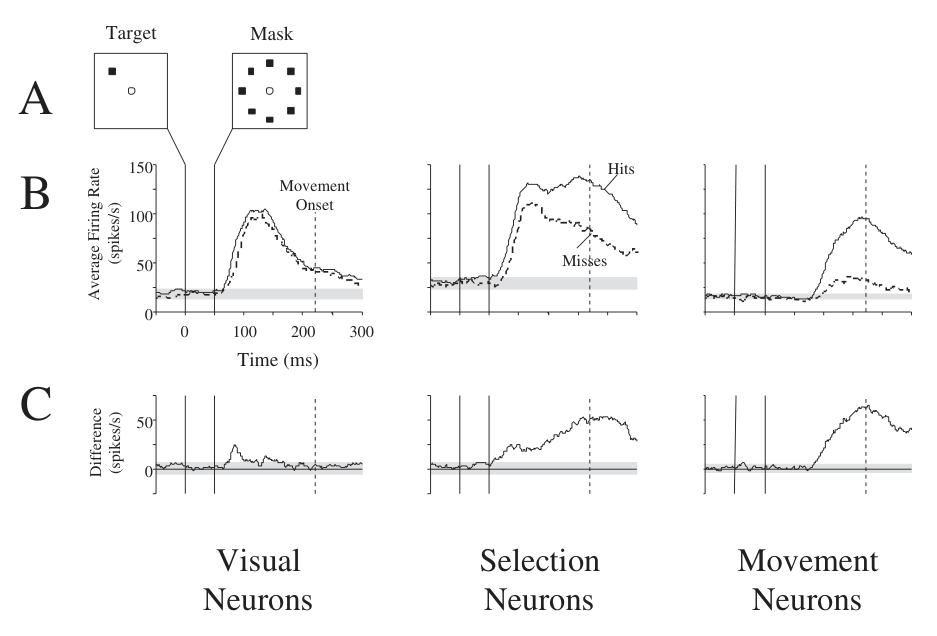
图 10 · 框架位移错觉任务中的 VFP 细胞
原文图注:Figure 10: Frame-Shift Illusion Task, Vision-for-Perception (VFP) Cells. NOTE: A. The VFP task, A(a) and A(b), was similar to that illustrated in Figure 2. The upper array (A1) first appeared. Then it disappeared, and after a brief delay, the lower array (A2) became visible at approximately the same location on a video display. Upon that event, the monkey made an eye movement (arrow) to report the perceived direction that the central light spot (gray circle) had shifted. A frame (rectangle) that surrounded the light spot might also shift from A1 to A2 to induce illusions. The monkey made perceptual reports by fixating one of two report targets (unfilled circles) located near the edges of the frame. In A2(a) and A2(b), the monkey reported that the light spot had shifted left, although it had actually shifted right. As illustrated in A2(b), the "left" report could be made with a rightward saccade. The VFP task, A(a) and A(b), contrasted with a vision-for-action (VFA) task, A(c) and A(d), which required only that the monkey make an eye movement to fixate the light spot. Otherwise, the movements and visual inputs closely matched in the two tasks…… B. Population activity in anterior frontal cortex. Each cell in this population showed a significant activity difference between its preferred (solid curves) and nonpreferred (dashed curves) directions and was selected for this analysis on that basis. Furthermore, that difference corresponded to the report…… C. Net directional signal in the VFP task…… Note that neurons with directional signals in the VFP task (left) had no such directionality in the VFA task (middle and right).
A 给出 VFP 任务(向报告目标注视以报告光点"看似"的位移方向,可与实际位移方向相反)与 VFA 任务(直接扫视光点本身)的对照,两者刺激与眼动严格匹配。B 为前额叶群体平均放电率(实线=偏好方向、虚线=非偏好方向、灰条=基线±3 SD):按 VFP 任务选出、且信号对应"报告"的细胞群。C 为净方向信号(实虚线之差):左列(VFP 任务)信号明显,中列与右列(VFA 任务中分别按眼动方向、按视觉输入匹配试次)信号归零。这是全文核心证据的前半:这批前额叶神经元编码的是"猴子报告看见什么",而非光点物理位移或眼动方向——结果 5 的直接支撑。
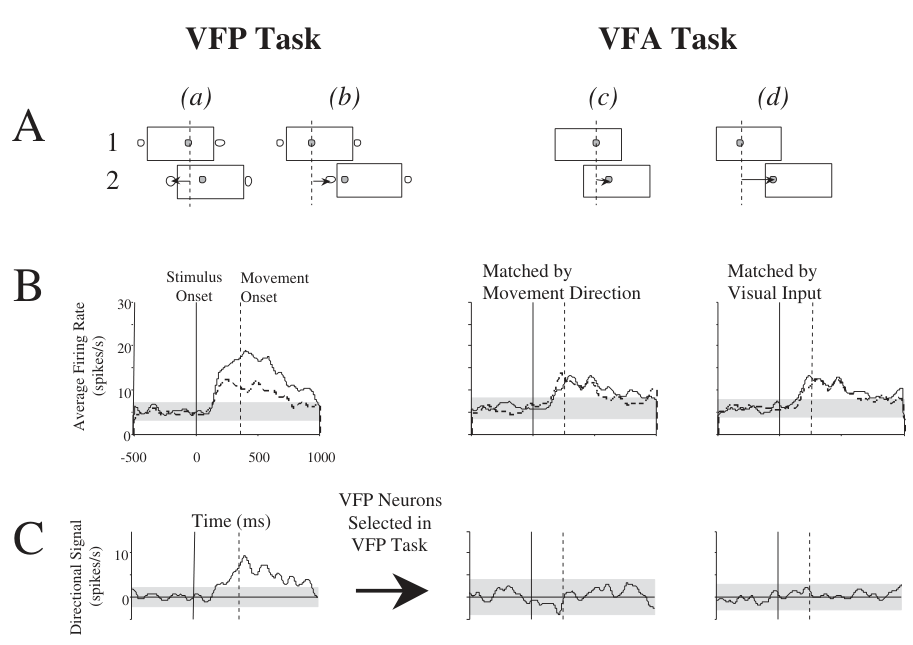
图 11 · 框架位移错觉任务中的 VFA 细胞
原文图注:Figure 11: Frame-Shift Illusion Task, Vision-for-Action (VFA) Cells. NOTE: A. VFA neurons in anterior frontal cortex were selected for significant directional signals in the vision-for-perception (VFP) task (left), much as was done for the cells in Figure 10. VFA cells, however, showed a directional signal that reflected eye movement direction, and unlike the cell class illustrated in Figure 10, this directional signal persisted in the VFA task (middle and right). Format as in Figures 10B and C. B. We selected a different, although related, population of cells on the basis of their significant directional signals in the VFA task (right), then examined that directional signal in the VFP task (left). These cells showed greater directional selectivity in the VFA task. Lebedev, Douglass, Moody, and Wise (2001) found that these VFA cells were intermingled with VFP cells (Figure 10) in the anterior frontal cortex.
与图 10 同格式的镜像证据。A:先按 VFP 任务中的显著方向信号选出一群细胞——这批细胞的方向信号实际反映眼动方向,且在 VFA 任务中(中、右列)持续存在;B:再按 VFA 任务中的方向信号另选一群细胞,其在 VFP 任务(左列)中的信号显著衰减,衰减在运动发起前尤其明显。与图 10 合起来得到"同一前额叶区域内 VFP 群体与 VFA 群体相互混居"这一结论(结果 5),是"解剖不分离、生理可分离"论点的终局证据。
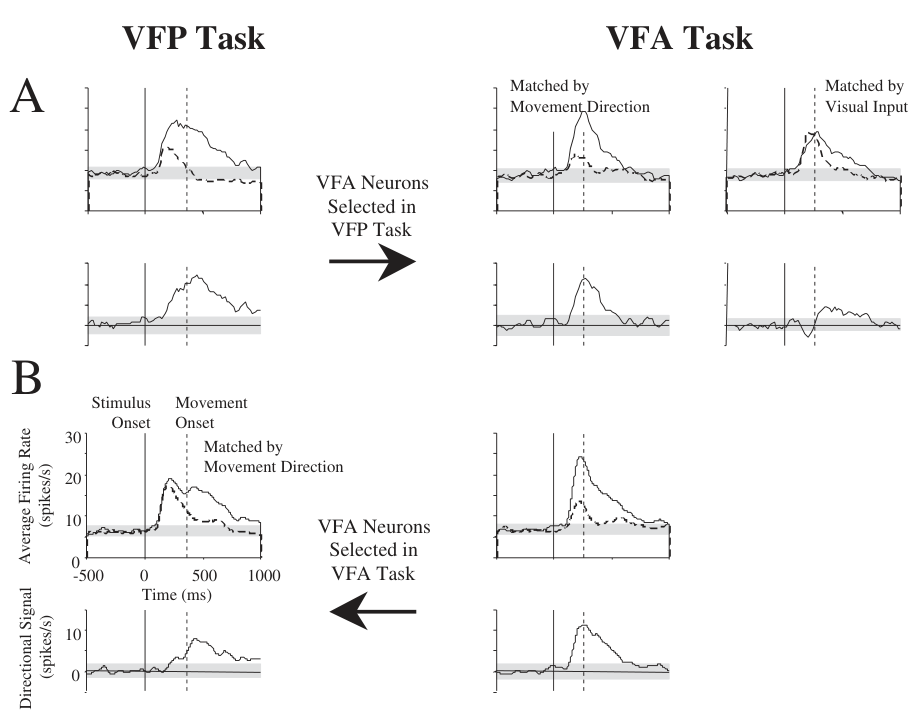
图 12 · 本文设想的 VFA/VFP 系统草图
原文图注:Figure 12: Sketch of the Vision-for-Action (VFA) (solid gray stripes) and Vision-for-Perception (VFP) (stippled stripes) Systems, as Envisioned Here. NOTE: Anterior premotor cortex here includes the presupplementary motor area, anterior cingulate motor areas, and the rostral part of the lateral premotor cortex. Posterior premotor cortex includes the supplementary motor area proper, caudal cingulate motor areas, and the caudal part of the lateral premotor cortex. M1 = primary motor cortex. The width of the alternating stippled and gray bars depicts the bias toward VFA (solid gray) and VFP (stippled) functions.
本文的正面主张图:与图 5 的"非此即彼"不同,这里把各皮层区画成交替的实心灰条(VFA 偏向)与点刻条(VFP 偏向)组成的宽带,条宽表示偏向程度——M1 以 VFA 为主但非纯粹,往后顶叶、下颞叶方向 VFP 成分渐增,前额叶则是两种条带交替共存、宽度相近。前运动皮层还按"前部(pre-SMA、前扣带运动区、前部外侧前运动区)/后部(SMA 本部、尾扣带运动区、尾外侧前运动区)"细分。这是结果 3、6 的空间总结:高级区大多双功能,只是偏重不同。
讨论
作者的收束有两层。实证层面:VFA 与 VFP 的分离是"行为与生理学意义上的、从不完全的分离",把两个系统与背腹两条流画等号既低估了腹侧流对动作的贡献(条件性运动学习、颜色引导的在线纠错),也低估了背侧流对知觉的贡献(变化觉察、错觉中的知觉、对自身动作与效应器的知觉);高级皮层区大多双功能,它们之间没有可供"贴标签"的解剖边界。理论层面:高级区中的视觉运动信号至少有两个用途——贡献于对自身动作的知觉(经由再传入或传出拷贝),以及体现两套系统因任务约束不同而生的信息加工分工(与世界交互要精度,形成假说要关系性知识)。作者用"标准/转换/随意/抽象"四种映射(表 1)把这条分界说得更精细:VFA 用可用的或记忆中的感觉信息引导动作,VFP 用关于世界的"猜想"引导报告;猜想一旦被证实(无论证实得对错)便构成动物的现实。由此"意识难题仍留在原地,但清掉了一些想象的怪物,也许包括僵尸"。
局限方面作者态度坦率:综述里的多数关键实验(如 D. F. 的脑损伤解剖定位困难、掩蔽实验中知觉与报告动作无法解耦、Wallis 规则实验未报告新刺激首试次的信号、Cowey & Stoerig 任务与消退现象的相似性)都被作者自己点出了保留意见;他们并不声称前额叶的双群体现象是该区独有;也不认为任何皮层区影响运动的能力与 M1 相同——只主张"给大多数皮层区贴运动或感觉标签大大过于简单化"。与既有文献的对话集中而明确:对 Milner & Goodale (1996) 的双流理论、Fuster (2001) 的知觉—动作循环、Mishkin & Petri 的基底节习惯系统逐一检验,并借 Gregory 的"知觉即假说"为 VFP 定性,以 Koch & Crick 的"内在僵尸"和 Whitehead 关于"文明靠不假思索的操作而进步"的名言收尾。
一句话总结
在我看来,这篇综述最锋利的一刀是提醒大家:行为上的双分离不等于解剖上的双分家——背腹流"各管一摊"的教科书说法,在 M1 有心理旋转信号、腹侧流能引导运动、后顶叶参与知觉这些事实面前确实站不住。图 10/11 那对镜像实验把"前额叶里住着两群各说各话的神经元"变成可检验的命题,即使二十年后以解码视角重看,"同一区域、混居群体、任务特异的信号"这一发现依然站得住。当然,"知觉=猜想"的定义把意识问题改写成了信息加工分工问题,这一步迈得大,读者应当把它当作启发式框架而非意识的最终答案。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A] - Fig10: 提取质量
good,对齐度full,识别面板[A] - Fig11: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig12: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[A] - Fig3: 提取质量
good,对齐度full,识别面板[A, B] - Fig4: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[] - Fig7: 提取质量
good,对齐度full,识别面板[F, G] - Fig8: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig9: 提取质量
good,对齐度full,识别面板[A, B, C]
关键事实与局限性声明
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '猴子的行为验证了其真的经历错觉', 'reason': '行为模式支持这种解释,但不能直接建立非人动物的主观体验。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '任务匹配排除了任务难度差异', 'reason': '实验控制了位移量、扫视精度和信息需求,但没有排除所有注意、规则和认知负荷差异。'} -> 评注:
- 审校纠偏: {'classification': 'INTERPRETATION', 'claim': 'VFP细胞编码猴子看见的内容', 'reason': '数据证明的是放电活动与报告内容的选择性相关,而不是知觉表征的因果必要性或充分性。'} -> 评注:
- 补充要点: : (第 117 页)