这是一篇关于猴下颞叶皮层(inferior temporal cortex, IT)的综述:作者藤田一郎结合 20 世纪 90 年代以来 IT 神经元的新特性——在物理属性大幅改变时依然保持的形状选择性、被 GABA 能抑制掩盖的潜在兴奋性输入、双眼视差与三维表面选择性、学习对调谐特性的塑造,以及形状特征的柱状聚集——系统整合解剖与组织化学证据,梳理了 TE 区“架构—计算—表征”的整体机制。综述阐释了“视觉字母表假说”(visual alphabet hypothesis),提出 TE 依托 1300–2000 个特征柱构成的有限单元,通过组合方式表征丰富的物体形态。
研究背景
猴下颞叶损伤会导致视觉物体辨别障碍,而单细胞记录在这一区域发现了对复杂几何图形敏感的神经元,这两方面证据确立了下颞叶在物体识别中的关键地位。沿着腹侧视觉通路,从早期视觉皮层经 TEO 到 TE,神经元的感受野与有效激活刺激的复杂程度总体递增,形状偏好对物体位置、视觉线索及遮挡也表现出一定的容忍度。然而,这种经典的层级描述主要反映了信息加工的输入输出特性,未能完全阐明 TE 内部的局部计算机制。同时,TE 与邻近的上颞沟(STS)及鼻周皮层在连接和功能上各有侧重,若统称为识别通路的单一终点,容易掩盖形状分析、三维立体视觉与视觉记忆之间的分工。该综述旨在从单纯罗列细胞反应特征,转向探讨特征背后的回路与结构机制。
研究中面临的直接障碍之一是神经元选择性高度依赖刺激搜寻策略。预设图片库可能难以涵盖真正有效的特征组合;而采用从复杂物体逐步删减特征的“刺激简化程序”,其结果受限于搜索路径,找到的最优图形未必对应全局最优解。此外,麻醉深度、训练经验与记录位点差异均会影响测试结果,因此不同实验中宽调谐与窄调谐的表观分歧不能直接判定为矛盾。与此同时,局部抑制性药物阻断、学习范式与双眼视差实验表明,TE 的选择性并非只是对上游输入的被动继承:局部抑制作用能够掩盖潜在的兴奋反应,经验能够动态重塑反应偏好,而形状与深度信息还可由同一细胞共同编码。这些现象需要能够兼顾传入通路、局部回路与空间拓扑组织的合理解释。
Fujita 将这些问题置于功能柱、水平轴突斑块(patches)以及沿枕颞通路变化的树突与神经化学梯度中进行讨论。相似特征偏好的细胞在局部聚集,而单个物体能够同时激活皮层表面的多个斑块,这为中等复杂度特征组合编码物体的“视觉字母表”假说提供了依据。该假说主张物体识别不依赖单一细胞对应单个物体的“祖母细胞”模式,而依赖离散特征单元的协同激活。作者据此将单细胞层面的生理计算与宏观皮层组织联系起来,并指出了尚未解决的疑问:柱间水平连接究竟遵循特征相似性还是共现规律,视差柱与形状柱的空间对应关系仍未完全明确,且柱数量与组合容量的理论估算仍需行为学实验验证。
研究思路
作者采取“性质—机制—架构”三层递进的分析思路:首先梳理 TE/STS 神经元的视觉反应性质(大感受野、中等复杂度特征偏好、双眼视差与不变性);继而剖析各项性质背后的细胞与回路机制(会聚性投射、GABA 能抑制、学习重塑、跨半球连合);最后落脚于结构与神经化学层面的解剖架构(功能柱组织、水平轴突斑块拓扑、沿枕颞通路的神经元形态与分子表达梯度),尝试通过结构约束理解皮层计算。该逻辑强调,TE 神经元的计算特性具有解剖与生化基础,包括更大的锥体细胞树突野、更稀疏的水平轴突斑块间距,以及沿通路梯度分布的可塑性相关分子。
作为综述性论文,作者从文献中筛选和辨析证据:一方面对比不同技术方案的差异(如麻醉与清醒记录、预设刺激集与刺激简化流程、受训与未受训动物),另一方面将其实验室采用的简化程序、双逆行/顺行追踪剂标记与高频电刺激证据,与光学成像及其他实验室的单细胞记录结果相互对照,进而界定当前明确的结论与仍待验证的科学问题。
方法
综述涉及的方法主要基于清醒或麻醉猴的单细胞电生理记录,其中“刺激简化程序”(stimulus simplification procedure)是关键技术:实验初期向猴展示超过 100 种三维实体模型及各类剪纸图形(变换朝向、距离与观察面),初步确定某一 TE 神经元反应强烈的物体及其最佳触发条件,将其拍摄为数字图像;随后在计算机控制下逐步删改或简化图像的局部特征,实时监测放电变化,直至提炼出激活水平与原物体相当(甚至更强)的最简几何构型,即该神经元的“关键刺激特征”(critical stimulus feature)。作者分析了该程序的特点:初筛阶段覆盖了上百种图形;简化过程常能分离出驱动效率高于原自然图像的特征组合;由繁入简的搜索路径规避了自下而上拼接非线性特征的盲目性。其局限性则在于缺乏严格的形式化算法支持、依赖实验者的在线直觉、隐含“单细胞对应单一关键特征”的假设,且所得结果可能对应高维刺激空间中的局部极值。
在解剖架构层面,综述汇总了以下方法获得的数据:利用顺行与逆行追踪剂(如生物素化葡聚糖胺 BDA)显色内在水平轴突斑块及皮层层间投射;在相邻皮层位点双注射以对比轴突斑块分布;出生后第 3 天标记、第 7 天取材的发育学追踪;在固定猴上开展的垂直与切向穿刺电生理记录,结合多电极互相关分析鉴别抑制性神经元;以及利用内源信号光学成像(optical imaging)显示皮层表面功能柱活化斑块。在组织化学方面,整合了 μ 型阿片受体、蛋白激酶 C 底物磷酸化水平、钙结合蛋白(calbindin)、AMPA 受体亚基 GluR2/3、小白蛋白(parvalbumin)及 occ1 基因表达沿枕颞通路的分布数据。
主要结果
-
TE 感受野较大但仍保留粗略的空间位置信息。典型 TE/STS 神经元的感受野覆盖 15–20 度视角,偏向对侧视野但均包含中央凹区域,且许多细胞的感受野跨越垂直子午线进入同侧视野;多数感受野的空间敏感度分布规则,可用高斯函数拟合,少数存在高敏感反应区或反应缺失区。定量测量显示感受野大小在细胞间存在明显差异(部分细胞感受野仅数度),感受野质心分布在同侧 4°至对侧 8°之间,表明 TE 神经元群体仍具备传递旁中央凹空间位置信息的能力。双侧视野反应依赖两侧半球 TE 间的胼胝体和前连合投射:切断连合投射或损毁对侧 V1 会使同侧感受野消失,药理学失活对侧 TE 同样会阻断同侧视野反应。
-
TE 神经元偏好中等复杂度的几何特征,且视差敏感细胞同时具备形状选择性。早期视觉区(V2、V4、TEO)有效激活所需的刺激构型比 TE 更简单(如十字、T 形、极坐标或双曲光栅),物体特征沿通路逐级抽象;除面孔特异性神经元与习得复杂物体特异细胞外,多数 TE 神经元对中等复杂度特征反应最强。TE/STS 中对双眼视差(binocular disparity)及视差梯度敏感的神经元(图 3)均同时具备形状选择性,可同步表征平面轮廓与相对注视平面的深度信息;STS 中对视差梯度定义的三维曲面敏感的细胞比例高于 TE,而 V4 中也存在视差敏感神经元,这表明背侧与腹侧通路并非绝对按视觉属性完全割裂。
-
形状选择性具备跨维度变换的不变性,但具有特定的边界。神经元的形状偏好在感受野内部的不同位置、不同对比度定义线索(亮度、纹理、运动或视差)、部分遮挡以及杂乱背景的自由注视条件下基本保持不变,但绝对放电率会随观看条件出现调制。对物体尺寸与对比度极性变化的耐受程度因细胞而异;多数神经元对平面旋转敏感;对镜像翻转的耐受程度普遍高于对上下倒置或图-底反转的耐受度,这一神经生理学特征与人类视觉辨别的心理物理学表现(如儿童辨别字母时 b/d 镜像混淆多于 b/p 倒置混淆)相对应。
-
GABA_A 受体介导的局部抑制塑造了刺激选择性,TE 神经元存在未显现的潜在兴奋性输入。TE 区域内约四分之一的细胞为含 GABA 的抑制性中间神经元;局部微量注射 GABA_A 受体拮抗剂荷包牡丹碱(bicuculline)能够显著增强神经元对特定刺激的反应,甚至使原本无反应的刺激引发放电,且该效应并非全局性增益放大或基线上移,说明 TE 神经元接收多通道输入,其中部分输入受到刺激特异性 GABA 能抑制的选择性压制。多单元互相关分析表明抑制性神经元本身同样具有特征选择性,且抑制性相互作用更多出现在偏好差异较大的神经元对之间。此外,行为训练与视觉经验能改变神经元调谐,该效应在鼻周皮层和 TE 腹侧更为显著,可通过调谐变窄(提高选择性)或建立联想(拓宽选择性)两种途径实现。
-
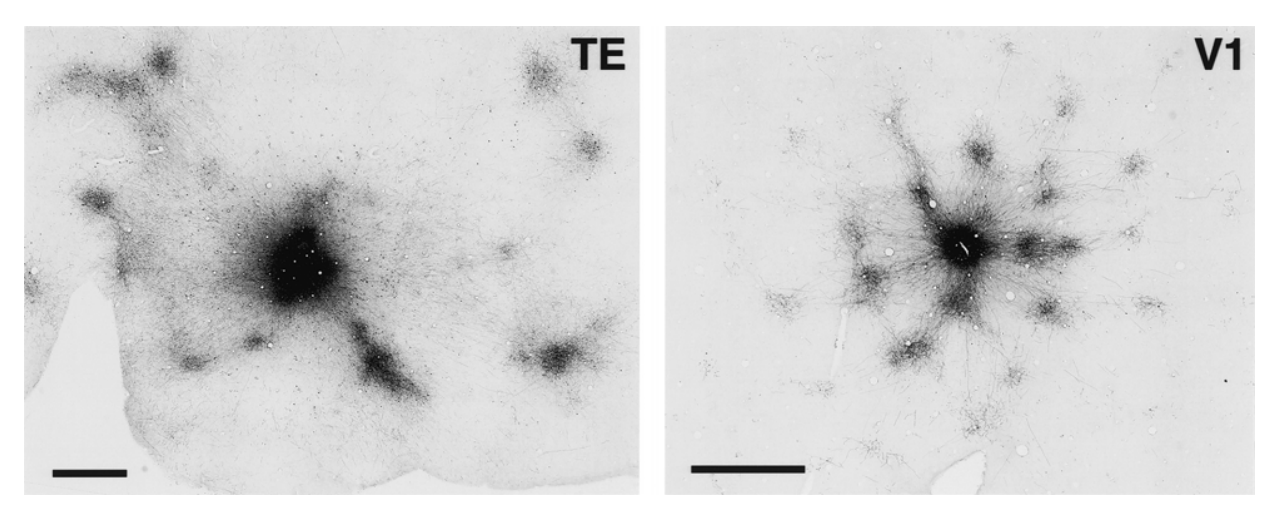
TE 存在形状特征柱,其内在解剖架构与 V1 形成明显反差。具有相似选择性的神经元在 TE 内贯穿皮层各层呈柱状排列,横向直径约 0.4–0.5 mm,同类特征柱的间距约为 0.4–1 mm(图 4),单侧半球估计包含 1300–2000 个功能柱;同一穿刺道内的神经元在刺激集包含该区关键特征时,放电相关系数可达 0.30–0.35。在解剖层面,TE 内在水平轴突斑块宽度为 0.35–0.4 mm,与功能柱尺寸相符,斑块间距与同类柱间距相当;与 V1 相比,TE 的水平轴突斑块体积更大、分布更稀疏且排列更不规则,逆行标记强度随距离衰减的趋势明显弱于 V1,相邻两点注射所标记的轴突斑块基本互不重叠(图 5),呈现模块化斑块分布模式。沿腹侧通路向前,锥体细胞树突野范围、分支数量及树突棘密度逐步增加;在 TE 第 2/3 层给予水平轴突高频电刺激可诱发长时程增强(LTP),而 V1 相同刺激诱发长时程抑制(LTD);组织化学指标(μ 鸦片受体、PKC 磷酸化底物、calbindin 阳性锥体细胞、GluR2/3 向前递增,parvalbumin 与 occ1 向后递增)同样印证了这一层级梯度。
-
物体表征体现为激活特征柱的组合编码(“视觉字母表”假说)。光学成像显示单个物体能在 TE 表面诱发多个离散的活化斑块,逐步简化测试图像会减少被激活的斑块数量;作者提出 1300–2000 个特征柱类似于有限的视觉字母,通过中等复杂度特征的组合模式表征多样的物体。该组合模式区别于全皮层弥散参与的群体编码,也区别于单细胞对应单物体的极端稀疏编码;由于同一功能柱内部神经元的调谐特性存在细微差异,柱内放电模式的变化能够在维持物体身份表征的同时编码视角与光照等观看条件。
图注解读
图 1 · 下颞叶皮层及相关脑区解剖图
原文图注:Fig. 1. Inferotemporal cortical and related areas shown in the lateral and the ventral views of the brain. amts, pmts: anterior and posterior middle temporal sulcus, ios: inferior occipital sulcus, ots: occipitotemporal sulcus, sts: superior temporal sulcus. V1, V2, V4: visual areas V1, V2, V4, PR: perirhinal cortex, TEO, TE: posterior and anterior parts of the inferior temporal visual areas, TF, TH: parahippocampal areas.
展示猕猴大脑侧面观与底面观的解剖示意图,标注了 TE、TEO、鼻周皮层(PR)、海马旁区(TF/TH)以及各脑沟(amts、pmts、ios、ots、sts)。该图为全文提供了空间定位基准,正文中涉及的腹侧、前侧及解剖通路梯度均以此坐标框架为参照。
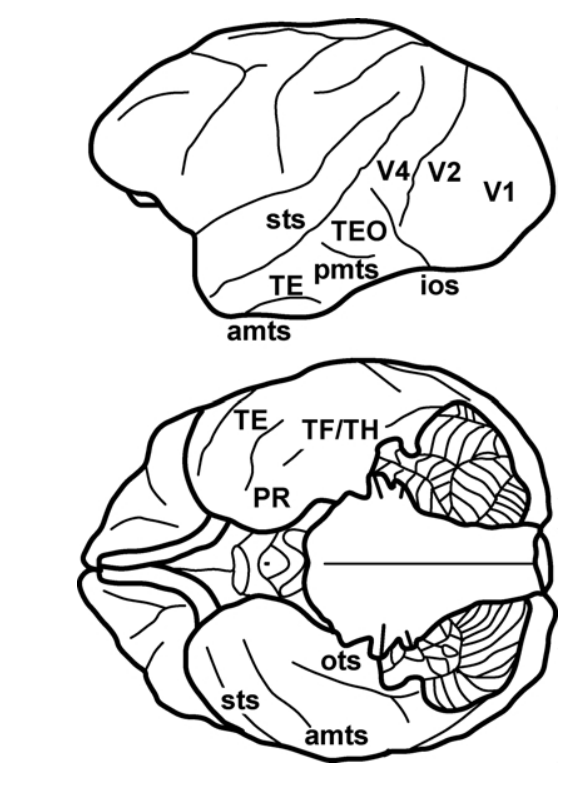
图 2 · 刺激简化程序示例:从胡萝卜到一条斜虚线
原文图注:Fig. 2. Stimulus simplification procedure. In this example, a TE neuron responded to a plastic model of a carrot with conspicuous highlights on its surface. By removing or modifying component features step by step while monitoring the neuron's responses, the minimal combination of stimulus features for the strong activation of this neuron was determined as a dotted line with a leftward tilt, particular spacing and component dot size, and brighter than the background (CE). Note the stronger responses for this critical set of features than the original object (A).
图 A 为塑料胡萝卜模型的原始照片,随后各图展示逐步剥离或修改局部特征的过程,各步骤附有对应神经元的动作电位反应直方图。结果表明(C、E 格),能够强效激活该神经元的最简特征为一条向左倾斜、具有特定点距与点大小且亮度高于背景的虚线;该关键特征组合诱发的放电水平高于原始胡萝卜图像。此例直观说明了刺激简化流程的操作方式及所提取的中等复杂度关键特征。
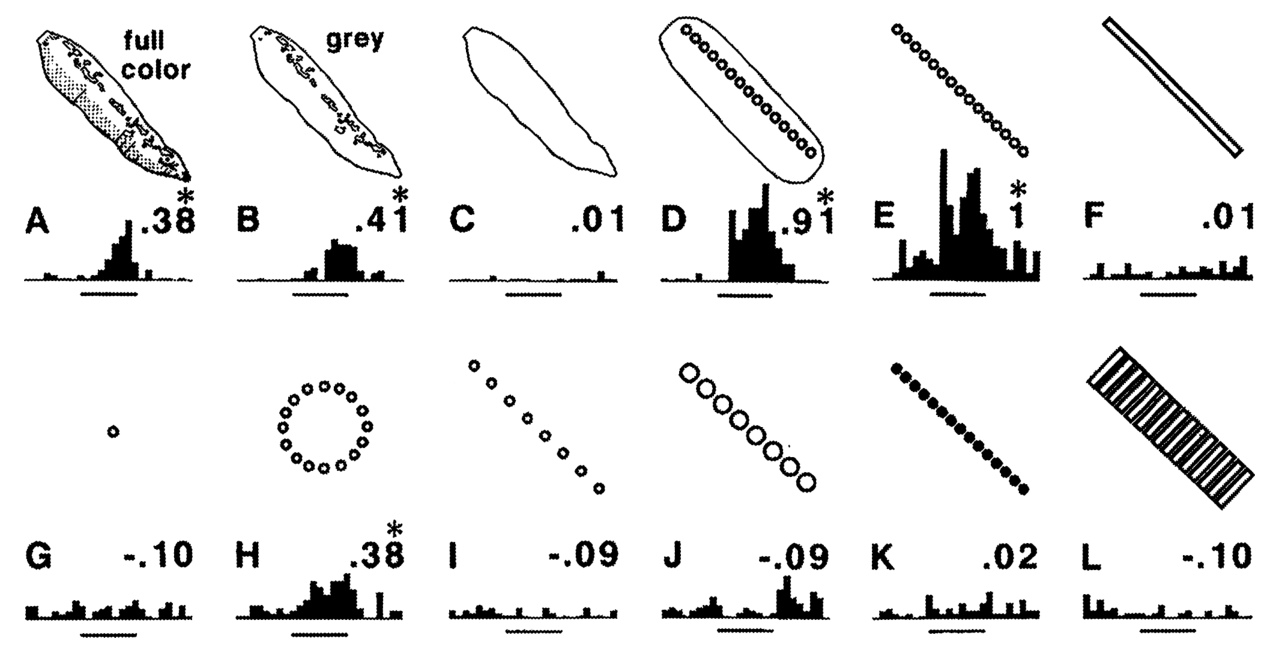
图 3 · 对视差和形状双重选择的 TE 神经元
原文图注:Fig. 3. Two examples of TE neurons selective for disparity. The cells are also selective for shape. H-bar, V-bar: horizontal or vertical bar, Square-rot: rotated square (diamond). Data from Uka et al. (2000).
展示两个 TE 神经元的调谐曲线:横轴为双眼视差(不同交叉与非交叉视差值),纵轴为放电频率。两个神经元均仅在特定视差范围内表现出强放电,且视差调谐偏好因呈现的几何形状(水平条 H-bar、垂直条 V-bar、旋转方块 Square-rot)而异。数据表明该类细胞同时调谐视差与平面形状,能够同步编码轮廓特征与相对深度。
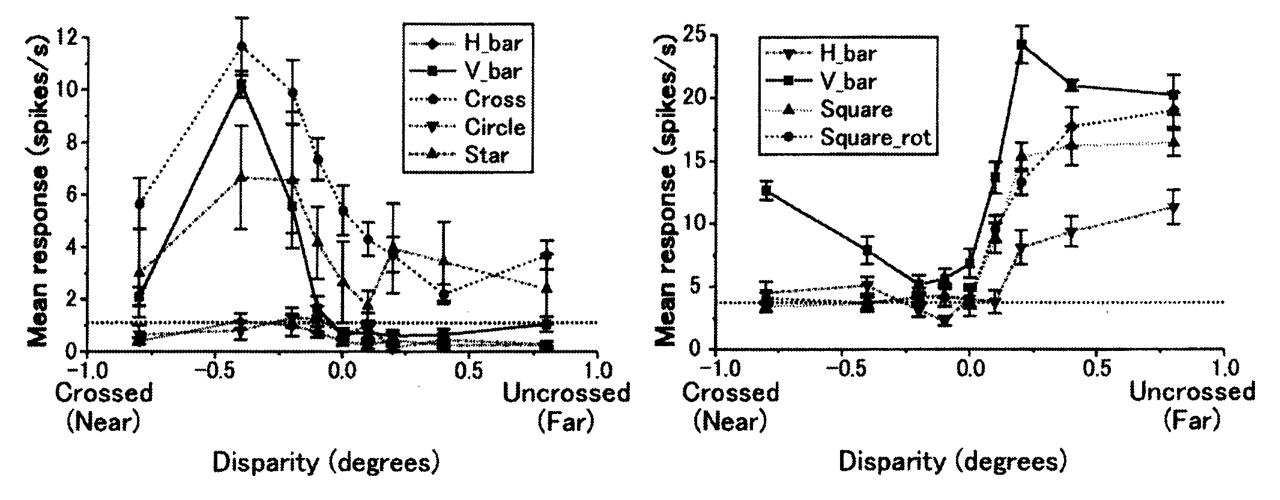
图 4 · TE 功能柱状组织示意
原文图注:Fig. 4. A schematic drawing of the functional columnar organization of the TE. Neurons within a column respond to the same or a similar stimuli, but the exact optimal stimulus or the tuning properties differ among them, as exemplified by similar but different icons within each column. Multiple columns are selective for similar features, and are shown with the same color.
该示意图将皮层绘制为贯穿各层的垂直柱状模块:同一柱内填充形态相近但细节有差异的图标,表示柱内神经元偏好相似但调谐特性不完全一致;相同颜色的柱表示分布于不同位点但对相似特征敏感的离散柱(间距约 0.4–1 mm)。图表阐明了视觉字母表假说的解剖假设,强调同一柱内的调谐多样性以及相似特征柱在皮层表面的离散重复分布。
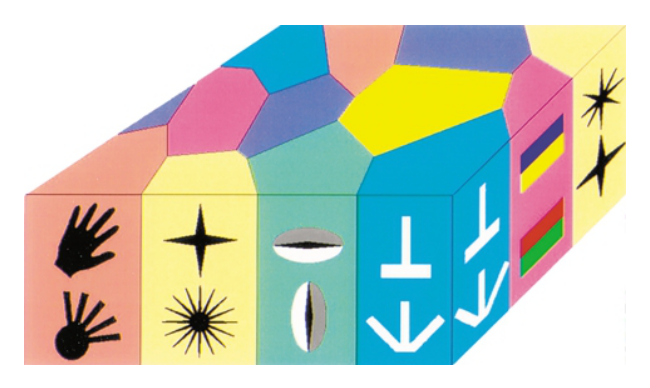
图 5 · TE 与 V1 内在水平轴突拓扑的惊人差异
原文图注:Fig. 5. Striking differences in the topographic features of intrinsic horizontal axons in the TE and V1. An anterograde tracer, biotinylated dextran amine, was injected into the TE and V1, and labeled axons and terminals were visualized with DAB reaction. Scale bars: 1 mm.
展示在同一皮层切片方向上顺行示踪剂(BDA)标记的内在水平轴突末梢分布:V1 区域的标记斑块体积较小、密度高且排列较为密集规则;TE 区域的轴突斑块尺度更大、更为离散、分布更不规则(比例尺 1 mm)。该形态学特征支持了生理学结论,表明 TE 的长距离水平轴突连接随距离衰减的程度低于 V1,不同位点投射到相对分离的斑块集群,构成了离散斑块式的皮层连接网络。
讨论
作者在讨论中重点阐述了生理特性与知觉现象的对应关系及其行为因果验证的局限性。一方面,诸多单细胞反应特性与心理物理学观察形成对应:跨线索与跨遮挡的反应稳定性对应复杂场景下的物体恒常性识别;对镜像翻转的耐受及对倒置的敏感对应人类在字母辨别中的错误分布规律;尺寸与对比度极性偏好的异质性对应视觉记忆可能以特定尺度存储的心理学推测。另一方面,综述指出这些生理特性的行为因果意义仍需系统检验:生理表现与知觉规律的吻合多属于相关证据,需要结合单细胞记录与行为决策进行同体因果操纵。目前在 TE/STS 区域的直接因果验证研究相对有限,较为明确的例证是 Sheinberg 与 Logothetis 在双眼竞争范式下观察到的 STS 面孔选择性神经元放电与动物知觉报告的高度一致性。
关于未决问题,综述梳理了以下几个方向:腹侧各子区在立体视觉加工中的具体分工机制;水平内在轴突是连接具有相似偏好的特征柱、互补特征柱,还是反映自然视觉中统计共现的特征柱;视差特征柱与二维形状特征柱在空间组织上的几何重叠关系;以及 TE 与 V1 在高频刺激下表现出相反突触可塑性方向(LTP 对比 LTD)的具体生物物理基础(膜电位特性、突触连接结构还是递质受体表达分布)。在理论脉络上,该综述补充了早期关于下颞叶仅简单继承前序区选择性的层级假说,修正了腹侧与背侧通路在属性加工上完全隔离的绝对观点,并将 TE 定位为一个由离散功能柱与稀疏水平连接构成的组合表征网络。
一句话总结
该综述系统阐述了“视觉字母表”组合编码框架:TE 并不直接存储具体物体的整幅图像,而是利用千余个具备中等复杂度偏好的特征柱进行组合表征,这一网络架构在提供巨大表征容量的同时,兼顾了视角变换下的恒常性识别与观看条件编码。