这是 Brown 与 Bashir 为皇家学会“认知过程生理学”研讨会撰写的整合性综述。文章综合脑区损伤研究、清醒猴单细胞记录、计算建模与大鼠离体脑片电生理四条证据链,探讨再认记忆中“熟悉性辨别”(familiarity discrimination)由鼻周皮层(perirhinal cortex)介导的神经生物学基础。其提出的核心编码假说为:刺激重复呈现时鼻周皮层神经元放电反应减弱,其潜在突触机制对应长时程抑制(long-term depression, LTD)。文章通过系统性排除其他候选神经机制,结合计算模型论证“反应减弱”在信息编码容量上优于“反应增强”,并总结了离体脑片中介导该反应减弱的突触受体通路。
研究背景
再认记忆包含两个认知成分:回忆过往接触的具体情境细节,以及判断某一刺激是否曾呈现过(即熟悉性辨别)。解剖学上,鼻周皮层接收来自颞下皮层 TE 区、海马及其他感觉通道的投射。神经损毁实验显示,双侧切除或损毁鼻周皮层会导致基于单次视觉条目的再认记忆表现显著受损,且受损程度通常明显高于单纯海马、杏仁核或前额叶受损。明确该行为效应后,进一步的科学问题在于确定其底层神经表征机制:该机制需具备单次接触即可诱导、可在较长时间尺度内保持、支持大规模刺激容量,且在无额外再认强化训练下能自主运作等生物学特性。
在多类候选神经活动形式中,刺激重复诱发的神经元反应减弱(response reduction)符合上述特征。相比之下,其他神经机制各有局限:匹配/非匹配反应差异主要反映当前试次的任务类型,不一定特异性标记具体刺激的新旧属性;延迟期的持续放电活动更接近注意维持或短时工作记忆;神经元反应增强通常依赖将特定目标与奖赏配对的训练条件;而神经元间的同步放电发生率低且时相偏晚,难以在知觉早期阶段快速提供识别信号。与此相反,反应减弱在单次视觉呈现后即可形成,在长间隔后依然维持,且与视觉诱发放电几乎同步发生。这提示颞叶前部 TE 区与鼻周皮层可能是该信号的局部起源位点。在机制层面,仍需解释为何“反应减弱”比“反应增强”更适应大规模容量的熟悉性辨别,以及该现象对应的突触可塑性基础。
Brown 与 Bashir 的综述将行为损伤、电生理记录、计算建模与脑片 LTD 证据相整合。网络模型表明,降低有效突触权重不仅能使神经系统对新异刺激保持高敏度响应,还能在神经元放电存在中等相关性的条件下维持极高存储容量;离体脑片记录则明确了依赖 NMDA 受体、代谢型谷氨酸受体(mGluR)及毒蕈碱型胆碱受体的 LTD 突触可塑性途径。由此构成了从认知行为到突触机制的假说链条:视觉重复诱发神经元反应减弱,LTD 为这一变化提供突触可塑性支持,鼻周皮层据此执行熟悉性辨别。不过,离体脑片中 LTD 的诱导时间窗口与在体环境下亚秒级的快速反应减弱尚存差异,脑片 LTD 与在体再认行为之间的直接因果必要性仍未完全证实,因此该链条目前主要作为相互自洽的候选机制假说。
研究思路
作者采取层层递进的逻辑链条推进论证:第一步,基于单次暴露、长时程维持、大容量存储与自主运作等约束条件,评估并排除多类候选神经机制,确立“刺激重复诱发反应减弱”为符合条件的核心信号(第 2 节);第二步,对比时间动力学特征,鉴于刺激呈现后约 90 ms 内群体水平即涌现新旧刺激的放电差异,而海马、前额叶及皮层下结构的潜伏期明显更长且检出率更低,反推该熟悉性信号最初由颞叶前部 TE 区与鼻周皮层局部产生,而非来自其他脑区的长潜伏期反馈(第 3 节);第三步,针对电生理记录呈现的“重复导致反应减弱”,通过神经网络建模检验其在速度、精度和容量上是否满足大容量记忆需求,从信息论角度解释突触效能减弱何以比突触增强更具容量优势(第 4 节);第四步,建模对突触特异性效能衰减提出要求,综述转向大鼠鼻周皮层离体脑片电生理,梳理该区域不同形式的 LTD 及其受体激活机制(第 5 节)。最后界定证据边界:离体脑片中的 LTD 现象属于必要条件层面的机制候选,其与在体反应减弱及行为辨别之间的因果对应关系仍有待验证。
整篇综述的论证结构在于各层次相互提供约束:在体单细胞记录确立了信号变化的方向(反应减弱),神经网络建模论证了突触效能衰减相对于增强的容量优势,而建模对突触特异性效能降低的要求,则进一步明确了离体电生理研究的探索方向。
方法
作为综述性论文,文中引用的研究方法涵盖三个层次。行为与在体单细胞记录:恒河猴执行连续视觉再认记忆任务(serial recognition memory task),每试次屏幕呈现一幅图片,首次呈现与重复呈现分别通过左右不同侧杠杆获取果汁奖励,试次类型随机穿插以消除预期效应;对照试次排除了运动反应与眼动扫描对神经元放电的干扰。记录电极置于颞下皮层前部 TE 区、鼻周皮层与内嗅皮层,基于累积刺激后时间直方图(PSTH)与栅格图对比同一图像在新旧条件下的放电频率,利用神经元群体平均(43 个神经元)测定记忆广度,根据新旧刺激累积放电计数的分叉点测算信息加工时间,并借助方差分析确定群体水平的差异潜伏期。计算建模:以 Bogacz、Brown 与 Giraud-Carrier (1999, 2001) 的前馈网络模型为主,设定单个突触在刺激首次激活时发生依赖于神经活动的可塑性改变(LTP 型增强或 LTD 型衰减),存储既往视觉经历;通过数值仿真与解析推导,对比抗赫布(anti-Hebbian,突触效能减弱)与赫布(Hebbian,突触效能增强)学习规则在不同神经元活动相关系数下的模式存储容量。离体电生理:成年大鼠鼻周皮层脑片,采用低频电刺激(1 Hz、200 脉冲)诱发突触 LTD,或通过灌注化学激动剂激活受体,记录场兴奋性突触后电位(fEPSP);利用 NMDA、代谢型谷氨酸受体(mGluR)与毒蕈碱型乙酰胆碱受体拮抗剂(AP5、EGLU、哌仑西平等)解析诱发机制。
主要结果
-
损毁实验证实鼻周皮层是视觉条目熟悉性辨别的关键解剖位点。非人灵长类(Zola-Morgan 等 1989;Gaffan & Murray 1992;Meunier 等 1993, 1996;Suzuki 等 1993)与啮齿类研究均显示,依赖个体视觉刺激既往接触史的再认任务(如延迟匹配/非匹配任务)在鼻周皮层切除后受到严重损害,其损伤程度明显高于海马、杏仁核或前额叶皮层损毁;单纯海马损毁引起的记忆障碍相对有限,通常在任务涉及复杂空间关系时才表现明显。内嗅皮层损毁仅导致短暂性再认受损(Meunier 等 1993;Leonard 等 1995),表明熟悉性辨别的关键神经基础不完全依赖内嗅皮层。
-
在五类候选神经机制中,仅有“刺激重复诱发的反应减弱”符合生理需求。匹配/非匹配反应差异(Gross 等 1979)仅标记试次任务属性而非具体刺激的新旧,且仅见于小刺激集任务;延迟期持续活动在长延时且刺激数目庞大的条件下难以维持,更倾向于表征工作记忆或注意选择;反应增强现象仅见于特定刺激与奖励绑定的训练范式(Miller & Desimone 1994),受限于刺激量较少和短延时间隔;毫秒级神经元同步放电(<6 ms)发生率较低,其时相偏晚且与运动执行更相关,无法在刺激知觉早期提供辨别信号(图 1 展示了这五类机制的示意)。与此相反,神经元反应减弱广泛存在(图 2 展示了鼻周皮层单细胞放电实例:同一图片第二次呈现时放电率显著下降),不受觉醒、动机、注意或眼动等混淆因素影响,单次接触即可形成,跨 24 小时仍可检出,且在未受专门再认记忆训练的天然状态下同样稳定存在。
-
在体电生理量化特征:约四分之一神经元参与,记忆保留期长,信号产生迅速。颞下皮层前部 TE 区、鼻周皮层与内嗅皮层中约 25% 的神经元在刺激重复呈现时表现为放电减少(Miller 等 1993;Xiang & Brown 1998b);在表现出反应减弱的神经元中,超过 50% 在间隔 24 小时后依然维持反应抑制,且长记忆广度神经元在鼻周皮层分布最集中(图 3 展示了 43 个颞叶前部与内嗅皮层神经元的群体平均反应,历经多个干扰试次乃至 24 小时后对旧刺激的反应依然显著低于新刺激 N)。相比之下,较后部的视觉皮层(V4 及后部 IT)虽然也观察到反应减弱,但持续时间仅数秒或数个试次。从反应时间看,刺激呈现后约 90 ms 群体水平即可检测到显著的新旧差异;许多单细胞反应改变的潜伏期与视觉初级反应潜伏期基本重叠(时间差仅 10–20 ms;图 4 展示 TE 区神经元对新旧图像的累积放电计数在约 75 ms 处即发生分叉)。海马区神经元对偶发重复刺激的反应抑制检出率不足 1%,潜伏期显著滞后;前额叶皮层检出率虽较高但潜伏期亦明显晚于颞叶;皮层下核团细胞数量有限,难以支持海量复杂图形的分辨。这表明早期熟悉性信号是在颞叶 TE 前部或鼻周皮层内部就地生成的。
-
计算建模表明“突触减弱”编码在速度、精度和容量上具备理论优势。以人类鼻周皮层约 10^7 个熟悉性辨别神经元、每个神经元约 10^4 个突触(参考 Insausti 等 1998 与 Xiang & Brown 1998b)为参数,Bogacz 等 (2001) 模型在 1% 错误率下可存储并辨别约 10^9 个刺激的熟悉性,在毫秒级时间内即可基于相对熟悉度输出判定。相关性分析显示,神经元活动相关性是决定存储容量的关键变量(图 6):传统基于突触增强(赫布型)的网络要求输入模式间的放电相关系数极低(约 0.05),相关性稍增即导致存储容量快速崩溃;而基于突触减弱(抗赫布型)的网络在存储过程中促使神经表征去相关,在中等相关水平下依然能保持极大容量(图 6a 与 6b 对比)。这为鼻周皮层表现出“反应减弱”提供了计算层面的合理解释。同时,模型要求突触修饰必须具备输入特异性,且鉴于鼻周皮层兴奋性突触数量显著多于抑制性突触(Thompson 等 2001),高容量辨别主要依赖可塑性兴奋性突触的衰减实现(图 5 展示了三种候选突触网络模型)。
-
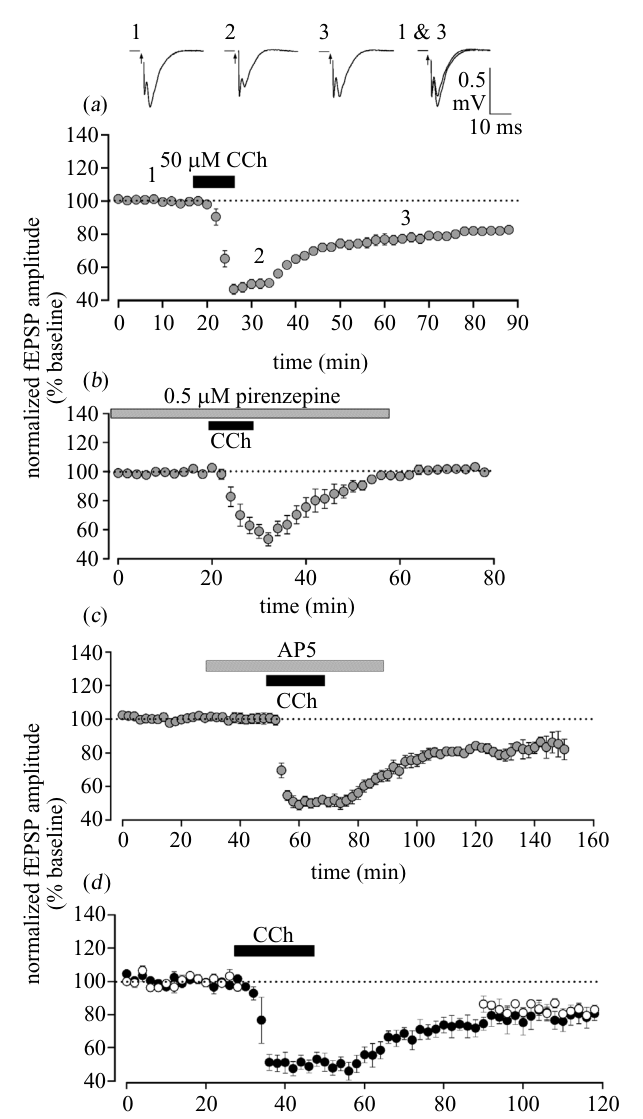
大鼠离体脑片电生理鉴定了介导突触效能衰减的分子受体机制。NMDA 受体激活可根据电刺激模式诱发 LTP 或 LTD(Bilkey 1996;Ziakopoulos 等 1999);I 组代谢型谷氨酸受体激动剂 DHPG 与 II 组受体激动剂 DCG-IV 均可单独诱发兴奋性突触传递的 LTD(McCaffery 等 1999)。在神经元膜电位钳制于 –70 mV 条件下,低频刺激(1 Hz、200 脉冲)诱发 LTD 同时需要 NMDA 受体与 I/II 组 mGlu 受体的共同激活(Cho 等 2000);而当低频刺激与 –40 mV 去极化配对时,则不再依赖 II 组 mGlu 受体。这一现象的机制为:I 组与 II 组 mGlu 受体之间存在协同效应,增强胞内钙释放;在 –70 mV 静息态下,NMDA 受体受镁离子电压依赖性阻断,该协同作用为诱发 LTD 提供必需的额外钙信号;去极化至 –40 mV 解除镁阻断后,NMDA 受体介导充足的钙内流,使得 mGlu 受体间的协同不再是必需条件(图 7)。在胆碱能受体方面,激动剂卡巴胆碱(CCh)可诱发持续的突触抑制(CCh–LTD),该过程可被 M1 毒蕈碱受体拮抗剂哌仑西平阻断,但不依赖 NMDA 受体,亦不需要突触高频刺激(图 8)。此外,毒蕈碱拮抗剂东莨菪碱能够阻断刺激依赖性 LTD,这与行为学上东莨菪碱损害再认记忆的现象相吻合。作者指出,同时依赖 NMDA 与 mGlu 受体的 LTD 形式在皮层脑区中较为罕见,提示鼻周皮层可能具备特异的突触调控机制;另一方面,脑片电刺激诱导 LTD 需耗时数分钟,而生理状态下的反应减弱在 1 秒内即可完成,体外电刺激模式与体内真实神经活动的衔接仍有待探索。
图注解读
图 1 · 五类候选神经活动变化示意
原文图注:Figure 1. Schematic representation of types of neuronal activity change found in perirhinal cortex during performance of familiarity discrimination tasks. The size of letter represents the magnitude of response to an individual stimulus. A change in size denotes a change in response on repetition. (a) Match/mismatch response differences. Neuronal responses may be larger or smaller on match compared with non-match trials in tasks where the repetition of one target stimulus must be judged on each trial and small stimulus sets are used. (b) Delay activity. The sustained activity between the initial presentation of a stimulus and its repetition is represented by the arrows. (c) Response enhancement. When an animal is taught that responding to the repetition of a target stimulus leads to reward…… (d) Response reductions. The response when a stimulus has been encountered before is reduced compared with its first presentation. In fact, there is more than one type of such response reductions, with there being three different, commonly found patterns of neuronal response on stimulus repetition (Xiang & Brown 1998b)…… (e) Simultaneous firing……
图中以字母尺寸表示神经元对单个刺激的反应幅度,字号变化表示刺激重复时的放电幅度改变,汇总展示了五类候选神经机制(匹配/非匹配差异、延迟期活动、反应增强、反应减弱、同步放电)。子图 (d) 注明反应减弱存在多种放电变化子模式(至少存在三种常见的放电抑制时序),提示背后可能涉及多种突触可塑性调控形式。该图构成了第 2 节排除法筛选神经机制的总体框架。
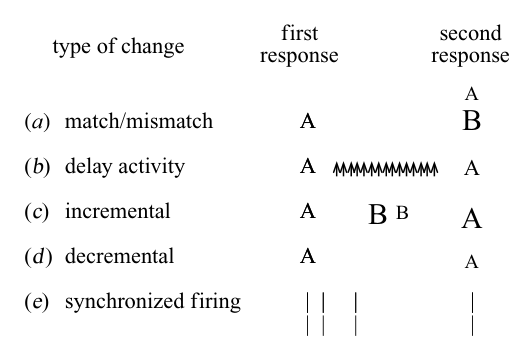
图 2 · 重复引起反应降低的单细胞实例
原文图注:Figure 2. Example response reduction on stimulus repetition. Illustrated are the cumulated peristimulus-time histograms and rasters showing the times of occurrence of individual action potentials for trials on each of which one of 10 different unfamiliar pictures was presented for either the first (a) or the second (b) time. Note the response reduction with stimulus repetition. The neuron's activity was recorded from perirhinal cortex while pictures were presented to a monkey performing a serial recognition memory task in which juice rewards were obtained for left-sided presses for first presentations and right-sided presses for repeat presentations……
图展示了 10 幅陌生图像分别在首次呈现 (a) 与第二次重复呈现 (b) 条件下的累积刺激后时间直方图(PSTH)与动作电位栅格图。两组放电密度的差异直观可见:面对相同图像刺激,神经元在第二次呈现时的放电频率显著降低。图注列明了对照控制条件:试次类型伪随机排列使得受试猴无法预测呈现次序,对照试次排除了运动反应与眼动扫视干扰,且所有正确试次均给予等量果汁奖励。该图为主要结果第 2 条中的反应减弱提供了单细胞层面的记录证据。
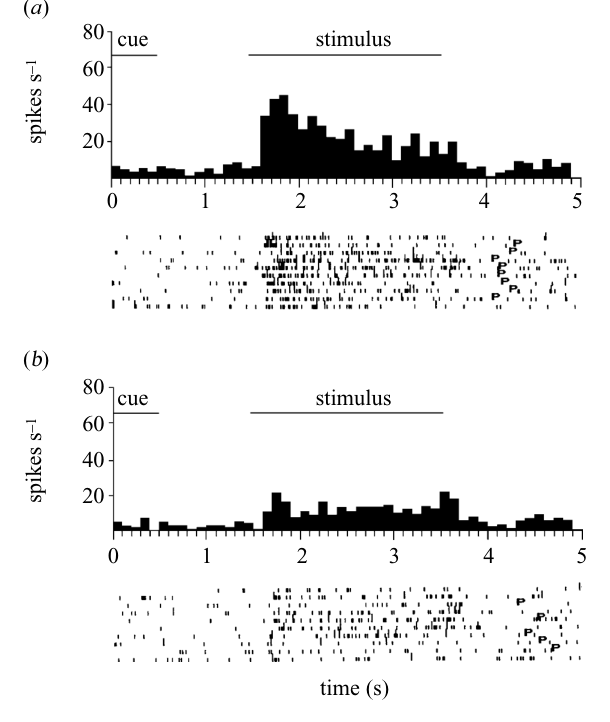
图 3 · 群体记忆广度
原文图注:Figure 3. Population memory span. Illustrated are the population mean (±s.e.m.) responses of 43 neurons recorded in anterior inferior temporal and entorhinal cortex to the first presentations of novel stimuli (N) and their repetition after varying numbers of intervening trials on which other stimuli were shown. The final bar (24 h) represents the response to stimuli not seen since the previous day. An asterisk implies a significant reduction in response compared to N. Ordinate: mean firing rate in 0.5 s after stimulus onset normalized relative to prestimulus activity (= 1)……
横坐标表示在刺激重复呈现前插入的其他干扰试次数(末端柱形表示间隔约 24 小时的隔天重复),纵坐标表示刺激呈现后 0.5 秒内的平均放电率(以刺激前自发放电率归一化,首次呈现 N 为基准),星号标示相对新刺激 N 存在统计学显著降低。数据显示,即便经历多轮无关刺激干扰或长达 24 小时的延时,重复刺激诱发的放电活动依然显著低于基线水平,且抑制程度基本维持稳定,为结果第 2、3 条中的长时程记忆广度提供了定量依据。
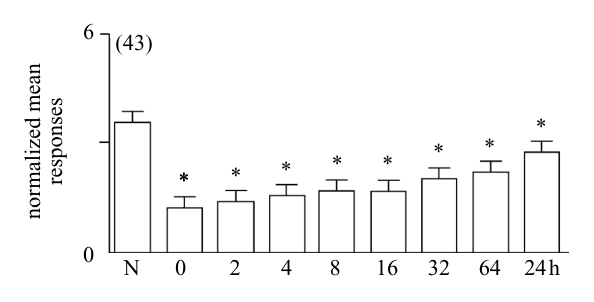
图 4 · 加工速度:新旧差异与视觉反应同步出现
原文图注:Figure 4. Speed of processing. (a) The cumulated action potential counts after stimulus onset (time = 0) for 20 novel (continuous line) and 20 familiar (dashed line) pictures for a neuron recorded in area TE. Note that the divergence of the counts occurs early (ca. 75 ms) and at approximately the same latency as the neuron starts to respond (shown by the increase in slope of the line for the novel trials). Peristimulus-time histograms and rasters for 20 novel (b) and 20 familiar (c) pictures for a neuron recorded in area TE……
子图 (a) 显示了 TE 区单个神经元面对 20 幅新图像与 20 幅旧图像的累积动作电位放电轨迹:实线(新刺激)与虚线(旧刺激)在约 75 ms 处发生分叉,该时间点与神经元视觉初始反应的潜伏期基本重合。(b) 和 (c) 分别对应新旧刺激的放电直方图与栅格图。群体水平的方差分析进一步确认,新旧刺激间的放电差异在刺激呈现后约 90 ms 内即可稳定检出。该数据为主要结果第 3 条中的快速加工特性提供了证据,并提示该反应差异更可能在颞下皮层局部生成,而非依赖高位皮层的慢速反馈投射。
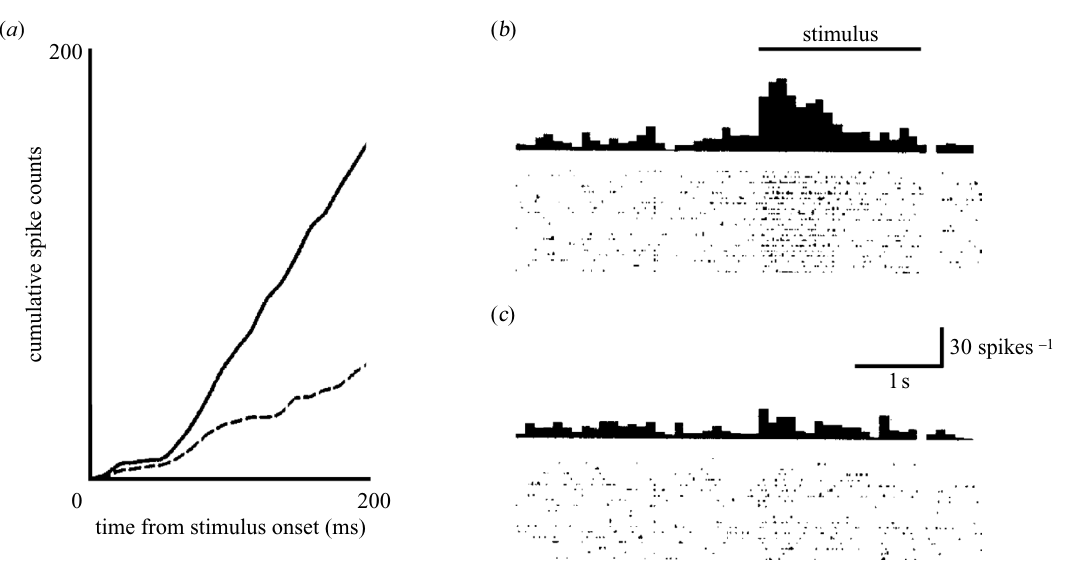
图 5 · 三种熟悉性辨别模型的突触机制示意
原文图注:Figure 5. Computational models for familiarity discrimination. The fundamental synaptic changes for three possible models are illustrated schematically: (a) based on anti-Hebbian learning (in which the primary change is a weakening of synaptic strength, for example as in LTD), (b) based on Hebbian learning (in which the primary change is an increase of synaptic strength, for example as in long-term potentiation), and (c) based on Hebbian learning between inhibitory interneurons and excitatory neurons. Triangles represent excitatory neurons and circles inhibitory interneurons. Horizontal lines on the left side of each diagram denote inputs to the network…… The upper row of diagrams illustrates the synaptic strengths and neuronal responses for a novel stimulus, and the lower row of diagrams those values after modification and when the stimulus is presented again (i.e. is familiar)……
上排展示初次呈现新异刺激时的突触权重与神经元反应,下排展示突触权重修饰后重复呈现刺激时的状态;三角形代表兴奋性神经元,圆形代表抑制性中间神经元,连接线粗细表示突触传递效能。图解对比了实现“刺激重复导致放电减少”的三种计算通路:(a) 兴奋性突触效能直接衰减,(b) 突触增强配合抑制性反馈,以及 (c) 抑制性中间神经元与兴奋性神经元之间的赫布型可塑性。图中未具体绘制用于维持网络总体兴奋性平衡的代偿性机制。该图对应主要结果第 4 条中的突触建模结构。
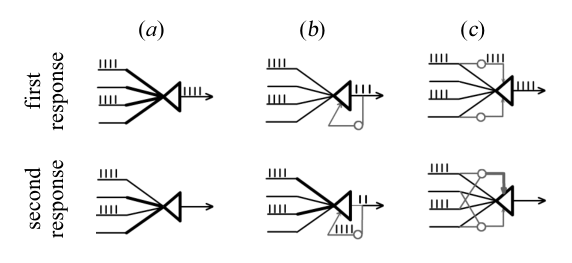
图 6 · 反应相关性对存储容量的影响
原文图注:Figure 6. The influence of correlation on capacity. Illustrated are the results of simulations and theoretical predictions of the number of stimuli (patterns: P) that can be stored by networks employing anti-Hebbian (a) or Hebbian (b) learning rules for different values (rij) of the mean coefficient of correlation between their responses…… Note that the storage capacity of the computational models is markedly reduced if the responses of the neurons are correlated with each other. For the Bogacz et al. (2001) model, and for other models using increases in synaptic efficacy (Hebbian learning) as the fundamental storage mechanism, both theoretical calculations and simulations indicate that capacity falls off rapidly even for very small values of rij. By contrast, if synaptic efficacy is reduced for active synapses (anti-Hebbian learning), then capacity is relatively little affected even at moderate values of the correlation coefficient. Note that the square root of rij is plotted on the abscissa.
纵坐标表示网络能够存储并正确识别的刺激模式数 P,横坐标为神经元间平均放电反应相关系数的平方根 sqrt(rij)。对比 (a) 抗赫布学习网络与 (b) 传统赫布学习网络可见:在赫布增强模型中,模式间的微小相关性即可导致存储容量急剧下降;而在抗赫布减弱模型中,存储容量在中等相关水平下依然保持平缓。该对比构成了主要结果第 4 条中探讨突触效能衰减何以具备大容量存储优势的理论核心。
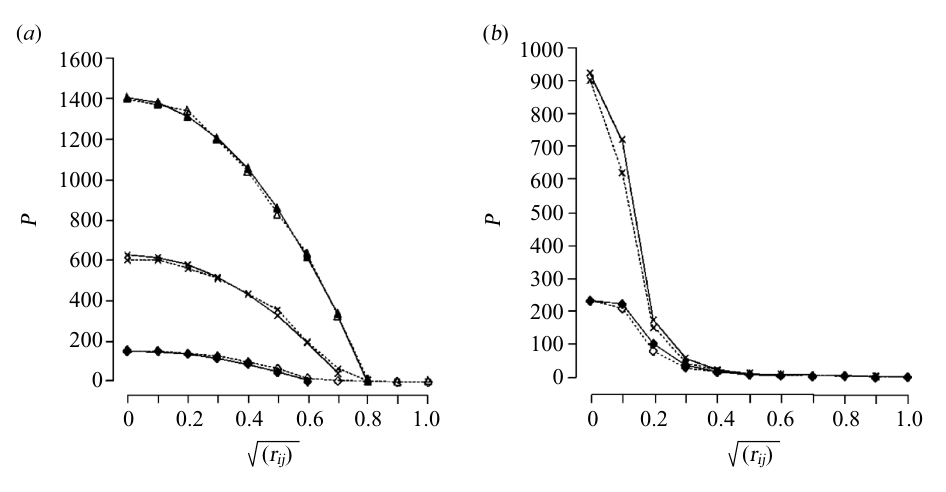
图 7 · 谷氨酸受体在 LTD 诱导中的作用
原文图注:Figure 7. The role of glutamate (glu) receptors in the induction of LTD (based on data from rat perirhinal slices). (a) At –70 mV calcium ion influx through NMDA receptor channels is minimized by a voltage-dependent magnesium block. Group II mGlu receptors (mGlu2/3) enhance the calcium mobilization due to group I mGlu receptor (mGlu1/5) activation by a mechanism that may rely on mGlu1/5 dephosphorylation. The combination of NMDA and mGlu receptor-mediated calcium mobilization results in the induction of LTD……
该受体信号通路图区分了 –70 mV 静息态 (a) 与 –40 mV 去极化态 (b) 两种电生理条件:在 (a) 中,镁离子电压依赖性阻断限制了 NMDA 受体的钙内流,II 组 mGlu 受体通过协同促进 I 组受体下游的胞内钙动员,两路钙信号叠加方可达到诱发 LTD 的阈值,阻断 II 组受体即可抑制 LTD 诱导;在 (b) 中,膜电位去极化解除了镁离子阻断,NMDA 受体介导的钙内流已足够触发 LTD,使得 II 组受体协同不再成为必需条件。图例中圆圈 G 代表 G 蛋白偶联途径。该机制阐明了主要结果第 5 条中 mGlu 受体在不同膜电位条件下参与 LTD 诱导的差异。
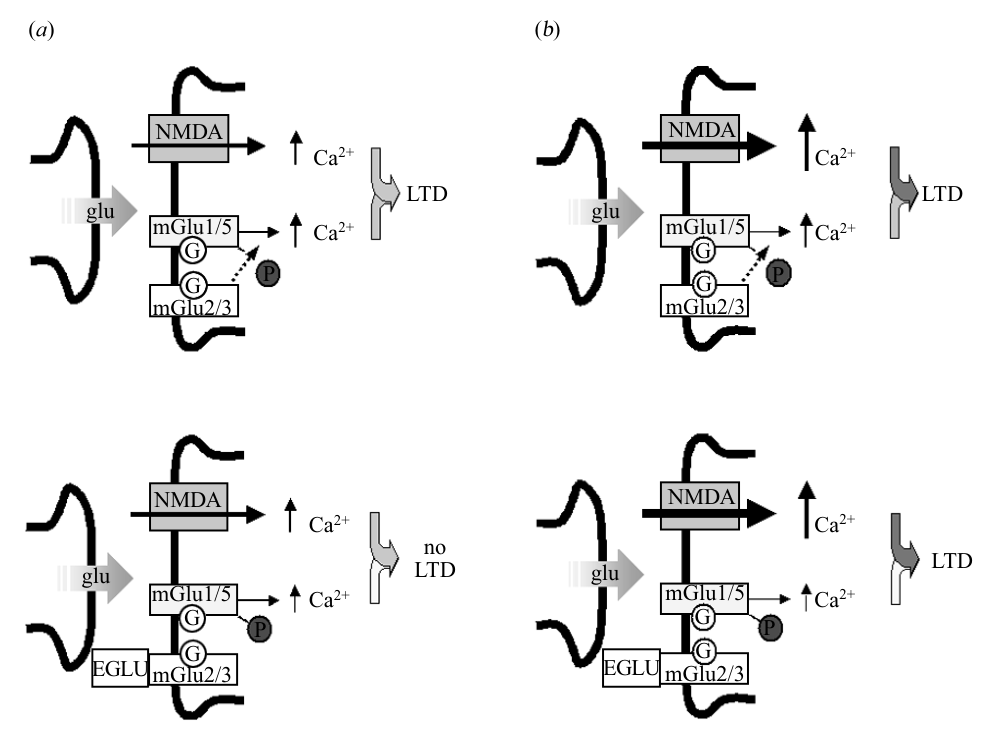
图 8 · 毒蕈碱受体介导的 LTD
原文图注:Figure 8. Muscarinic receptor-mediated LTD in rat perirhinal cortical slices. (a) The application of CCh results in long-lasting depression (CCh–LTD) of synaptic transmission that is (b) blocked by the M1 muscarinic receptor antagonist pirenzepine. The transient depression is, however, unaffected by M1 antagonism. (c) The NMDA receptor antagonist AP5 does not prevent CCh–LTD. (d) The induction of CCh–LTD does not require synaptic stimulation. Stimulation through one electrode (on the temporal side) was discontinued during and for 40 min after application of CCh; however, LTD still occurred in this input. Black circles, temporal; white circles, entorhinal; fEPSP, field excitatory post-synaptic potential.
图中纵坐标为场兴奋性突触后电位(fEPSP)幅度,横坐标为时间进程,实心圆代表颞侧刺激通路,空心圆代表内嗅侧刺激通路。(a) 灌注卡巴胆碱(CCh)诱发出药物洗脱后仍长期维持的突触抑制;(b) M1 受体拮抗剂哌仑西平能够选择性阻断长时程抑制,但不影响前期的瞬时抑制,提示两者存在分立机制;(c) NMDA 受体拮抗剂 AP5 未能阻断 CCh–LTD,证实其不依赖 NMDA 受体;(d) 在给药及随后的 40 分钟内暂停其中一条通路的突触电刺激,该通路依然诱发了 LTD,证明该形式的 LTD 诱导不依赖突触动作电位刺激。该图为结果第 5 条中的胆碱能突触抑制提供了实验依据。
讨论
作者的讨论由多个研究层面共同构成:损伤研究表明鼻周皮层对于个体复杂视觉刺激的熟悉性辨别具有必需性;电生理记录表明其直接的神经表征形式是刺激重复呈现时神经元放电反应的减弱;计算建模确认了这一机制在生物学尺度下的可行性——基于生理参数构建的抗赫布网络能够满足高速度与大容量的熟悉性辨别需求,并从表征去相关的角度解释了选择反应减弱而非增强的理论优势;离体脑片电生理则鉴定了依赖 NMDA 与 mGlu 受体协同或毒蕈碱受体激活的 LTD 形式,为突触特异性效能衰减提供了候选细胞学机制。该论证框架对传统以海马为核心的再认记忆理论进行了补充和界定(结合 Aggleton & Brown 1999 以及 Brown & Aggleton 2001 区分海马在情境回忆与空间维度中的功能,同时参考 Murray & Bussey 1999 关于鼻周皮层感知-记忆双重属性的观点),并与知觉适应(adaptation)及目标增强(enhancement)等替代解释划清了界限。作者明确指出了现有研究的证据边界:离体脑片中存在的 LTD 机制不能直接推论为在体熟悉性记忆的充分条件。确立这一因果关联,需要在药理学或分子遗传层面证明针对突触 LTD 的操纵能够平行影响神经元反应减弱及行为学上的熟悉性辨别。此外,离体实验中数分钟的电刺激诱导时程与在体环境下亚秒级的快速反应减弱之间仍存在时间尺度差异,在体局部场电位振荡(theta/gamma 频段)引起的膜电位波动如何影响 mGlu 受体的功能参与,亦有待后续实验加以明确。
一句话总结
该综述系统阐述了鼻周皮层在视觉熟悉性辨别中的神经机制:当已知刺激重复呈现时,神经元反应减弱构成了高效的信息存储形式;突触连接权重的特异性衰减在保持高表征容量的同时降低了模式间相关性。文章指出了当前证据链的边界,即离体脑片长时程抑制与在体行为辨别之间的直接因果对应关系仍待深入验证,但其从行为表型、神经编码、计算建模到突触受体通路的整合框架为再认记忆研究提供了重要参考。