本文在清醒行为猴下颞叶皮层(IT 皮层)同步记录单神经元对的放电活动,探讨局部特征的空间构型如何影响神经编码。研究发现,当同一组局部特征排列成类面孔构型时,神经元间的精确动作电位同步相关性显著强于随机构型排列,而两者的平均放电率几乎没有差异;这种构型依赖的相关性差异在刺激呈现后 300 ms 内迅速涌现。该结果为动作电位相关编码参与整体物体表征提供了直接的电生理证据。
研究背景
物体的知觉表征不仅取决于其包含的具体特征,还依赖于这些特征之间的空间构型。相同的眼、鼻、嘴部件,若改变彼此的相对位置,便无法构成完整的面孔知觉;因此,整体物体识别机制必须同时解释局部特征及其空间关系的神经编码。早期功能成像与单细胞记录已证实灵长类枕颞皮层和下颞叶(IT)皮层在复杂物体加工中起关键作用,然而大量 IT 神经元对整体图像中的局部特征亦具有良好调谐。如果大脑为每一种可能的特征组合分配专属神经元,组合爆炸将给神经表征带来严峻挑战。这促使研究视角从单个神经元对完整物体的选择性,转向多个特征调谐神经元如何协同表征特定的空间构型。
当时主要存在两类并非互斥的理论假说:群体发放率编码认为,不同神经元发放强度的组合足以区分整体构型;时间相关编码假说则提出,表征不同特征的神经元可以通过高精度的时间同步活动实现特征绑定。尽管此前在 IT 皮层已观察到细胞间存在尖峰相关放电,但这种相关放电是否特异性携带特征构型信息、其时程是否快到足以支持快速知觉识别,均未获证实。心理物理学中的“面孔构型优势效应”提供了一个切入点:当相同部件呈现为标准面孔排列时,识别的准确度与速度显著优于随机构型。要在神经层面建立关联,必须在严格保持局部部件完全一致的前提下操纵构型,并同步测定神经元发放率与尖峰相关性,避免将整体激活水平的差异误判为构型特异的相关信号。
本研究训练猕猴执行类面孔与非类面孔物体的分类判别任务,针对同步记录的神经元对筛选出共同具有高发放反应的最优部件组合,比较两种空间构型下的互相关特性及其动态时程。由海量组合构建的刺激库避免了单刺激过拟合与长期熟悉度干扰;仅依据放电率筛选刺激,保证了相关性分析的统计独立性。研究旨在检验特征构型是否动态调节皮层神经元间的时间协同关系,以及这种调节是否能独立于放电率提供额外的构型信息。同时需注意:观察到相关差异并不意味着放电率编码失去功能,亦不足以确立同步放电为物体识别的充分必要因果条件;共同上游输入、局部微回路调制及注意状态的影响仍需仔细鉴别;minimax 最优刺激筛选、有限的神经元样本以及零时延附近难以解析的盲区,也限定了结论向全脑网络和任意非面孔物体的外推范围。
研究思路
作者的核心实验设计遵循“控制局部特征、仅变换空间排列”的原则。研究预先设计了 120 个面部特征部件(眼部、鼻部、嘴部特征样图形各 40 个),通过空间排列组合构建出 64,000 个(40³)类面孔物体(face-like object, FO)及对应的非类面孔物体(non-face-like object, NFO)——每个 NFO 均由与配对 FO 完全相同的部件经非面孔几何位置随机重排而成。庞大的刺激池使得特定刺激在记录过程中几乎不重复出现,避免了单个 IT 神经元对特定完整物体的长期经验依赖性调谐(Kobatake et al., 1998; Baker et al., 2002),从而在实验设计层面将“空间构型”与“个体物体熟悉度”彻底解耦。
第二个关键策略是保障互相关分析的信噪比与统计客观性。互相关直方图对尖峰发放数量高度敏感,作者采用 minimax 优化算法为每对同步记录的细胞寻找能够使两神经元均维持较高放电率的最优部件组合,分别生成该细胞对的最优 FO(pFO)与最优 NFO(pNFO);在实验在线筛选过程中完全不计算互相关,确保刺激选择仅基于放电率水平。在此基础上,先展示单细胞对的互相关动态,进而开展群体统计与 ROC 分类分析评估构型信号的群体可辨度,最后通过滑动时窗分析揭示相关信号的神经涌现时程。
方法
实验使用两只健康成年日本猕猴(Macaca fuscata)。首先在延迟匹配样本任务(DMS,延迟 2 s)中对 120 个局部特征部件进行高强度训练(每个部件至少曝光 600 次),诱导 IT 皮层神经元对这些特征产生稳定的视觉调谐;随后训练 FO/NFO 行为分类任务:在 1.0°–1.4° 注视窗内呈现 FO 或 NFO 刺激 1 s(线索期,cue period),经 500 ms 延迟后出现执行信号,猴需在 1 s 内按键报告刺激属性,记录期任务正确率达 99.7 ± 0.4%。另设被动注视任务(5 个部件依次呈现 350 ms,间隔 600 ms)用于基础部件筛选。每个复合刺激由 4 个部件(各占 2.3°×2.3° 视角)在不重叠条件下排列于半径 3° 的视野范围内,刺激中心偏离注视点 2.1°。
微电极电生理记录覆盖下颞叶皮层腹侧前部 TE 区(立体定位前侧 15–20 mm)。通过单一微驱动装置独立进针 2 根钨丝电极(间距 0.6–1.0 mm),或单电极同步记录并离线聚类分离为单细胞单位,共获得 30 对满足放电率筛选标准的神经元对(猴 1 获得 15 对,猴 2 获得 15 对;其中 7 对同电极、23 对异电极)。互相关分析采用扣除逐试次平移预测因子(shift predictor)的平滑移位扣除互相关图(SSCC),将中心峰值转换为标准分数(z-score,置信限 p ≤ 0.05,经 Bonferroni 多重比较校正);补充计算正规化互相关系数(NCC)以排除基线发放率波动的干扰;通过 ±2 ms 盲区消除假性放电干扰。时程分析采用 500 ms 滑动时窗(步长 100 ms)及 100–300 ms、300–500 ms 分段时窗,基于配对 t 检验及置换检验(5000 次重抽样)评定显著性。
主要结果
- 单细胞对表现出明显的构型依赖性:在示例神经元对中,当呈现最优类面孔刺激(pFO)时,移位互相关图(SSCC)在约 4 ms 延迟处形成显著的放电相关峰(z-score 达到 4.1,p ≤ 0.05);而在呈现由完全相同部件构成的最优非面孔刺激(pNFO)时,互相关曲线平坦且未见显著峰值;在此期间两神经元的平均放电率对两类刺激保持相当(图 2)。
- 群体细胞对中广泛存在类面孔构型相关的增强偏好(图 3A):在记录的 30 对神经元中,23 对(77%)对 pFO 表现出更高的相关峰值,群体层面 pFO 的峰高显著大于 pNFO(配对 t 检验,P ≤ 0.003);其中 11 对对 pFO 呈现统计显著的相关峰,而对 pNFO 呈现显著相关峰的仅有 3 对。采用正规化互相关系数(NCC)评估时,pFO 组的均值同样显著高于 pNFO 组(0.017 ± 0.002 对 0.013 ± 0.002,P ≤ 0.01)。
- 神经元发放率未表现出一致的构型偏置(图 3B、图 4):各神经元对在 pFO 与 pNFO 刺激下的平均发放率无统计学显著差异(P ≥ 0.8,n = 30);在表现出 FO 相关优势的 23 对细胞中,12 对(52%)对 pNFO 的放电率反而更高;相关性归一化差值与放电率归一化差值之间无显著相关性(Spearman r = 0.16,P ≥ 0.4)。因此,FO 相关优势无法归因于整体发放率的上升,这些记录细胞亦不属于经典面孔专一性神经元。
- 尖峰相关信号在神经群体水平具有高可辨度(图 5):基于 SSCC 峰值 z 分数的 ROC 分析显示,区分两类构型的曲线下面积(AUC)达到 0.72,显著高于 0.5 的随机水平(P ≤ 0.001,置换检验,n = 30);而基于发放率的 AUC 仅为 0.55,与随机水平无显著差异(P ≥ 0.2)。互信息分析表明,单试次水平下相关放电所携带的构型信息显著高于随机重排对照(0.020 ± 0.003 对 0.006 ± 0.001 bits,P ≤ 0.005);尽管放电率的总信息量绝对值更高(0.27 ± 0.05 bits,P ≤ 0.001),但在 17% 的细胞对中(5/30),相关性所携带的信息量达到其放电率信息的 80% 以上。
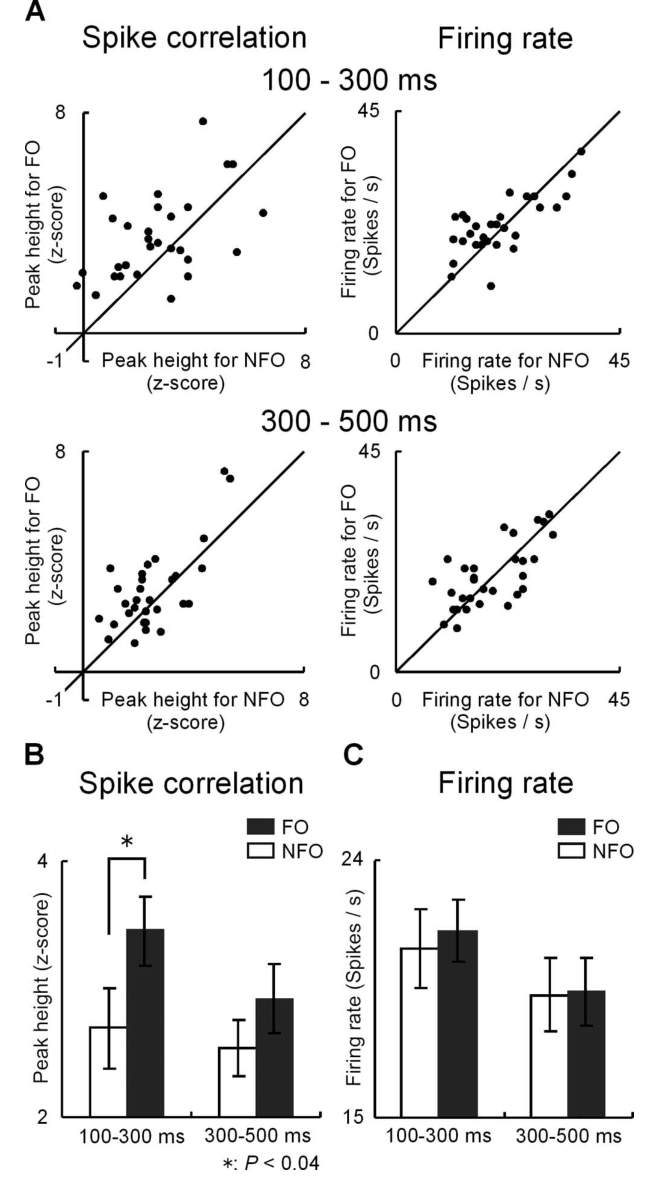
- 构型相关信号在刺激呈现早期迅速建立(图 6、图 7):滑动时窗分析表明,pFO 的群体相关性在刺激呈现后 500 ms 与 600 ms 处显著强于 pNFO(P ≤ 0.02 与 P ≤ 0.01,经校正);细分早期时窗发现,在刺激呈现后 100–300 ms 内,pFO 的相关优势即已达到统计显著(P ≤ 0.04,n = 29),该时段恰逢大多数神经元瞬态发放最强的时期,而两组刺激的发放率无显著差异(P ≥ 0.3);在 300–500 ms 时窗内相关差异有所回落(P = 0.12),发放率同样无差异(P = 0.9)。这一百毫秒级的时间尺度足以支持快速视觉知觉的加工。
- 非最优 FO/NFO 刺激对未能诱发显著的 FO 相关优势(补充表 1):结合 pNFO 条件下缺乏显著相关的现象,表明该效应并非由任意面孔构型所激发的弥散性全局同步,而是特异性依赖于细胞对偏好特征组合在空间上的构型整合。
图注解读
图 1 · 类面孔物体与非类面孔物体的构造
原文图注:Figure1. Wholeobjectsandtheirconstituentpartsusedinabehavioraltask.A,Examplesof whole objects: FOs (left) and NFOs (right) composed of the same set of parts. The background wasdarkblue,andtheobjectswereyellow.B,Constituentpartsofthewholeobjectsshownin A. We prepared 120 facial-feature-like parts (40 eye-like parts, 40 nose-like parts, and 40 mouth-like parts) to construct 64,000 (equal to 40 3) FOs and NFOs.
读图要点:A 行呈现刺激匹配逻辑,左侧与右侧刺激均由完全相同的四个局部部件构成,左侧按面孔空间关系排布构成类面孔刺激(FO),右侧经随机重排构成非类面孔刺激(NFO)。B 行展示 120 个面部特征候选部件的代表样例。该设计的核心在于保持局部物理特征完全一致,将空间几何构型分离为唯一变量;64,000 种刺激组合确保各复合刺激具有高度新异性,避免单个神经元对特定完整刺激形成经验依赖性调谐。该图支撑研究思路部分的刺激解耦设计。
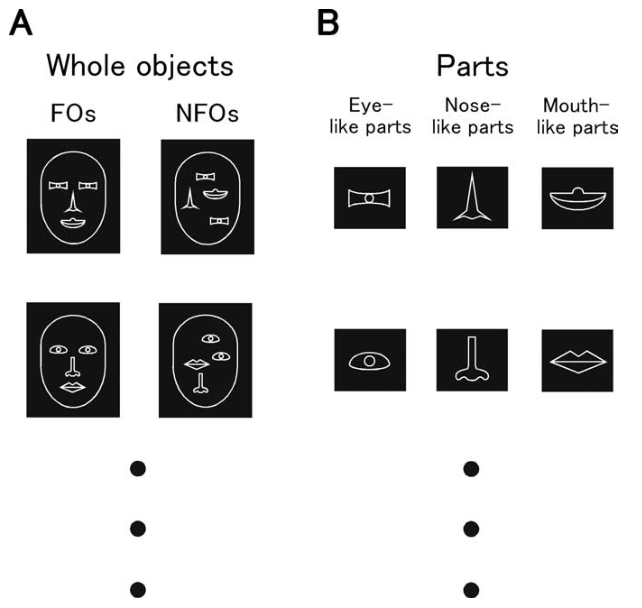
图 2 · 单个细胞对:只有 pFO 出现相关峰
原文图注:Figure2. Feature-configuration-dependentspikecorrelationofapairofITneurons.A,Waveforms,auto-correlograms,andperistimulustimehistogramsofapairofITneuronstotheiroptimal FO and optimal NFO. Fifty traces of action potentials were superimposed. Horizontal bars below each peristimulus time histogram indicate 1 s duration of stimulus presentation (cue period). B, Correlatedactivityofthecellpair.Top,Rawcross-correlogramsofthecellpairobtainedwiththeoptimalFO(left,red)andoptimalNFO(right,blue).Abscissa,Spiketimeofcell1relativetothatof cell 2. Bin width, 1 ms. Gray traces, Shift predictors. Bottom, SSCCs of the cell pair obtained with the optimal FO (left, red) and optimal NFO (right, blue). The cross-correlograms for the bins within ±2 ms were drawn with thin lines and were not included in the analyses (see Materials and Methods). Horizontal gray lines, Confidence limit ( p ≤ 0.05, corrected for multiple comparisons).
读图要点:A 栏展示记录神经元对对两类刺激的电生理响应(动作电位波形、自相关图及刺激期时间直方图),证实两个细胞对 pFO 与 pNFO 均保持相当水平的视觉驱动,排除了反应不对称导致的假象;B 栏上排展示原始互相关直方图(横轴表示两神经元动作电位的时间差,bin 宽度 1 ms,灰色轨迹为试次置换预测因子),下排展示移位校正后的互相关图(SSCC):红色轨迹(pFO)在约 4 ms 延迟处显著超出置信限横线,而蓝色轨迹(pNFO)未见显著偏折。该图为结果 1 提供了单细胞对层面的直接证据。
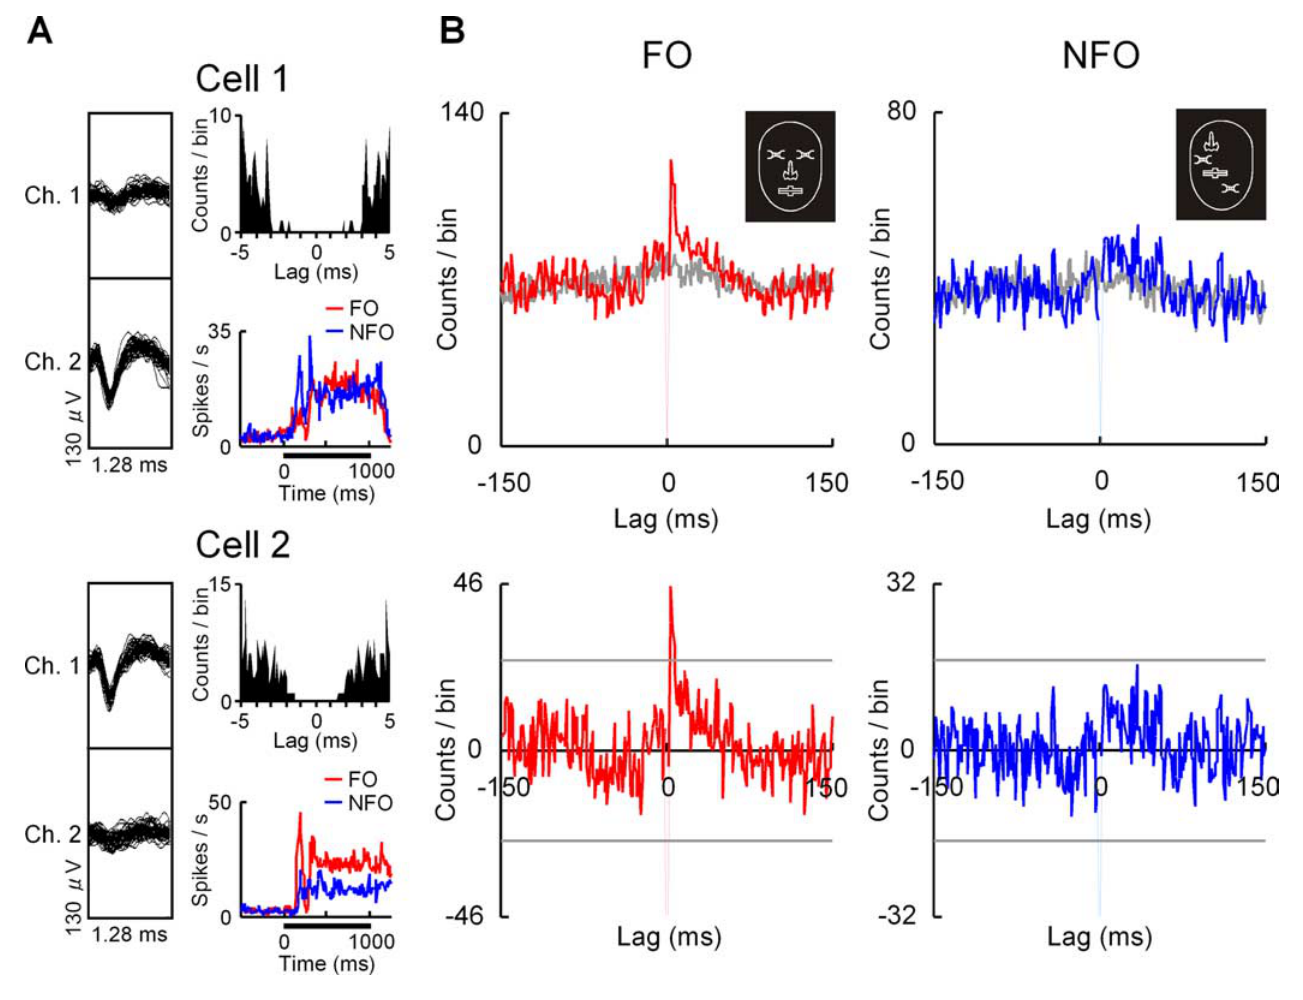
图 3 · 群体统计:相关有偏倚,放电率没有
原文图注:Figure 3. Population data for spike correlation and firing rate. A, Peak heights of SSCCs in z-scoresforallthecellpairs,obtainedforoptimalFOs(ordinate)andNFOs(abscissa)(n=30). Horizontal and vertical lines, Confidence limit ( p = 0.05). p value depicted in the figure was derivedfrompairedttest.Trianglesrepresentoutliersandwererescaledpreservingtheratioof the peak heights for the two conditions. B, Mean firing rates for all the cell pairs in the same periodasthatfortheabovecorrelationanalyses,obtainedforoptimalFOs(ordinate)andNFOs (abscissa) (n = 30).
两张散点图纵轴均为 pFO、横轴均为 pNFO。A 图中大多数点落在对角线上方(FO 相关更高,23/30),配对 t 检验 P≤0.003;横竖线标出显著性置信限,三角形是保留比值后重新标定的离群点。B 图中点大致均匀分布在对角线两侧(P≥0.8)。两图对照构成结果 2 与 3 的核心:构型只调制"相关性"而不调制"放电率"。
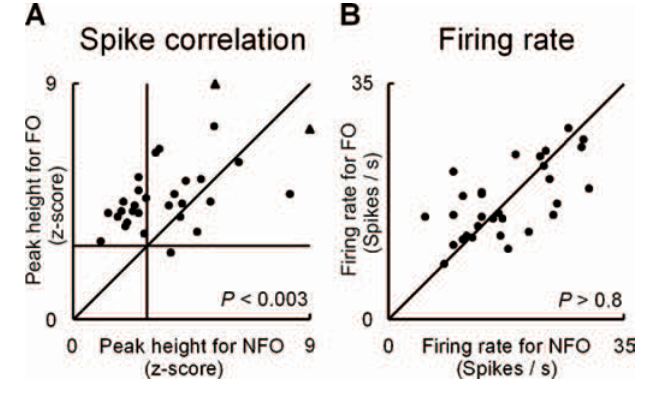
图 4 · 相关优势与放电率优势互不绑定
原文图注:Figure4. Relationshipbetweenspikecorrelationandfiringrateforeachcellpair.Difference in the SSCC peak height between the optimal FO and NFO for each cell pair was normalized by thesum(ordinate)andplottedagainstthenormalizeddifferenceinthefiringrateforthesame cellpair(abscissa).PositivevalueindicatesthattheoptimalFOevokedhigherspikecorrelation (ordinate) or firing rate (abscissa) than the corresponding optimal NFO.
横轴是每对细胞放电率的归一化差值(正值=FO 引起更高放电率),纵轴是相关峰高的归一化差值(正值=FO 相关更强)。若相关优势只是放电率优势的副产品,点应聚在右上方;实际散点几乎无关联(Spearman r=0.16,P≥0.4),且有 12/23 对落在第二象限(放电率对 NFO 更高、相关却对 FO 更高)。此图支撑结果 3 的"不能由放电率解释"结论。
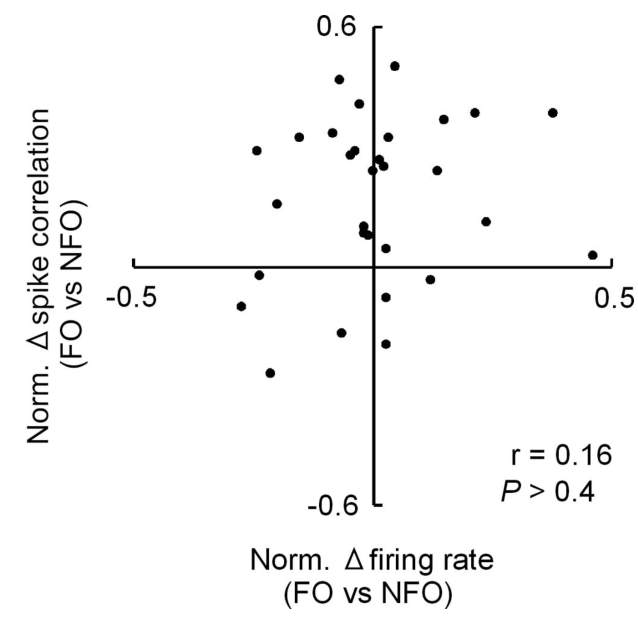
图 5 · ROC 分析:相关信号在群体层面可靠
原文图注:Figure 5. ROC analysis for assessing the reliability of spike correlation to discriminate be- tweendifferentfeatureconfigurations.A,ROCcurvesforspikecorrelation(black)andforfiring rate (gray). Ordinate and abscissa represent the hit and false alarm rate for detecting pFOs, respectively (see Materials and Methods). B, Area under the ROC curve for spike correlation (black)andforfiringrate(gray).Dottedlineindicatesthechancelevel.Statisticalsignificanceof theareaundertheROCcurveswereassessedbyconstructing5000surrogatecurvesbypermu- tatingtheoriginaldistributionsofSSCCpeakheightoroffiringrateamongthedifferentfeature configurations (pFOs and pNFOs).
A 图中黑线(相关)整体位于灰线(放电率)左上方,即同样误报率下命中率更高;B 图给曲线下面积:相关 0.72 对放电率 0.55,虚线为 0.5 的机遇水平,显著性由 5000 条置换 surrogate 曲线评估。读者需注意此分析的"群体"含义:把 30 对细胞的峰高分布当作两个"信号+噪声"分布来做信号检测论比较。此图支撑结果 4——相关差异虽然幅度不大,却足以在群体水平可靠区分两种构型。
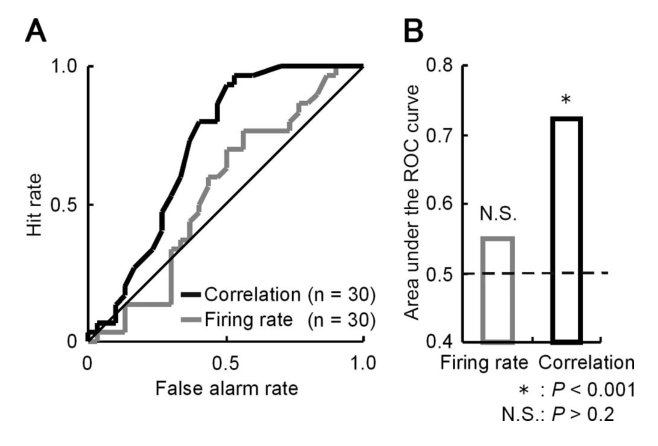
图 6 · 相关差异的时间进程:放电率全程无差
原文图注:Figure6. Temporal dynamics of spike correlation. A, Time course of spike correlation (z- score)ofapairofneuronsinresponsetotheoptimalFO(left)andNFO(right).Thesurfaceplots wereconstructedfromSSCCscalculatedusingspikesina500mswindowthatwassuccessively shiftedinstepsof100ms.SSCCatthetime0wascalculatedusingspikesina500msperiodjust beforecueonset.B,C,Auto-correlogramsofthepairofneurons(B)andtimecourseofnormal- ized firing rates of the cell pair in response to the optimal FO (red) and NFO (blue) (C). D, E, Averagetimecourses(thicklines)ofspikecorrelation(D)andfiringrate(E)foroptimalFOs(red) and NFOs (blue) across all of the cell pairs (n = 30). Thin lines, Average ± SEM. Seven and six cell pairs were excluded from the analyses for the time points of 0 and 100 ms, respectively, attributable to low
读图要点:A 图通过时间-时延曲面图呈现示例细胞对的相关动态(横轴为 500 ms 滑动时窗的中心时刻,纵轴为神经元间时延差,颜色表示 z 分数),pFO 条件在约 4 ms 时延处显现持续性脊线,而 pNFO 条件无类似结构;D 与 E 分别展示群体平均的相关性与发放率时程,D 图中红色曲线(pFO)在刺激后 500 ms 与 600 ms 处显著高于蓝色曲线(pNFO),E 图中两者的平均发放率曲线在全时程内高度重合。该图证实构型调制在刺激呈现期内持续存在,并与发放率动态解耦,支撑结果 5。
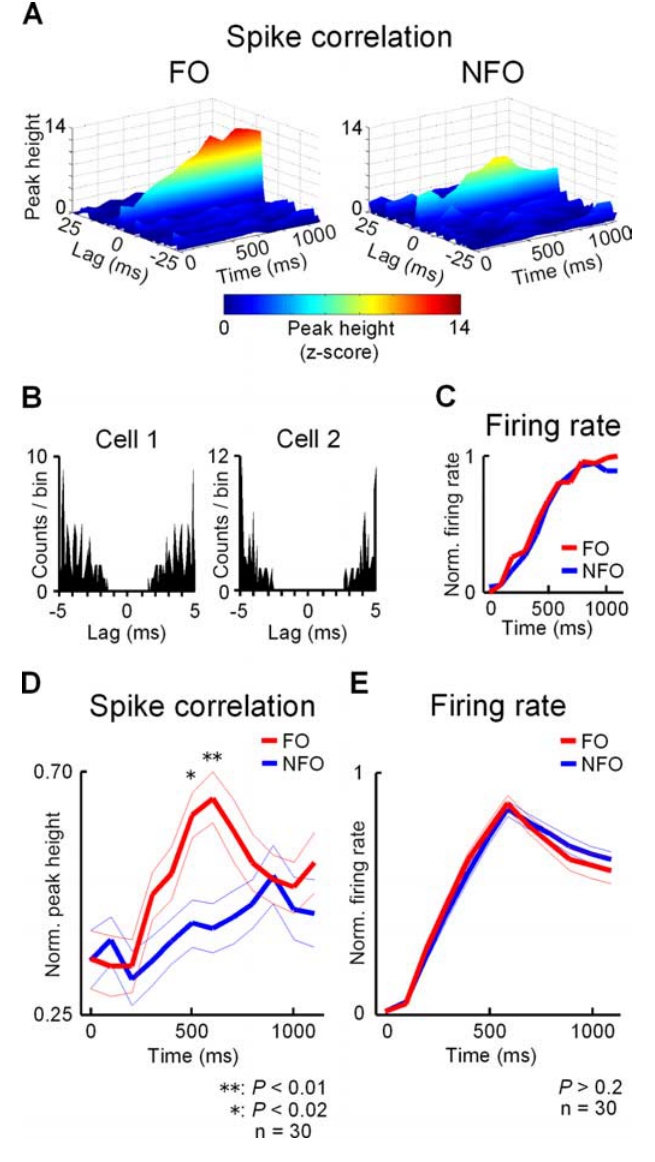
图 7 · 100–300 ms 内相关优势已显著
原文图注:Figure7. Rapidemergenceoffeatureconfiguration-dependentspikecorrelation.A,Scatter gramsshowingpeakheightsofSSCCsinz-score(left)andmeanfiringrates(right)forallofthe cell pairs, elicited by optimal FOs (ordinate) and NFOs (abscissa) in the periods of 100–300 ms (top; n = 29, one pair with small number of spikes was excluded) and 300–500 ms (bottom; n = 30) after cue onset. B, C, Average peak heights of SSCCs in z-scores (B) and average firing rates (C) across all of the cell pairs elicited by optimal FOs (gray) and NFOs (white) during the periodsof100–300ms(left;n=29)and300–500ms(right;n=30)aftercueonset.Asterisk, Significant difference assessed by paired t test corrected for multiple comparisons for the di- vided time window. Error bars represent SEM.
读图要点:图示将刺激呈现后 0–500 ms 细分为两个独立的 200 ms 早期时窗:上排(100–300 ms)散点显著偏向对角线上方,柱状图中 pFO 的平均相关峰(灰柱)显著高于 pNFO(白柱,P ≤ 0.04),而发放率未见差异;下排(300–500 ms)相关性差异降低至临界水平(P = 0.12),发放率同样无差异。该结果表明构型相关的神经信号在刺激呈现后 300 ms 内即可被有效提取,在时间维度上足以支持快速物体知觉加工,支撑结果 5。
讨论
作者认为:复杂整体中局部特征的空间构型,能够以皮层神经元间高精度尖峰相关性的形式在 IT 皮层迅速表达。尽管 pFO 诱导的相关放电占总尖峰的比例增加有限(相关峰下尖峰比例由 1.1% 上升至 1.6%),但由于突触后神经元具有重合检测(coincidence detection)特性(Alonso et al., 1996; Usrey et al., 2000; Roy & Alloway, 2001),微小的时间同步差异即可在下游网络中显著放大突触传递效率;群体 ROC 分析亦证实该信号在群体方差背景下具备统计稳健性。在方法学控制上,研究同时运用 SSCC 与 NCC 两种指标进行交叉验证,排除了试次间放电率涨落可能带来的假象。
关于类面孔构型优势的产生机制,作者系统排除了三种潜在假说:其一,是否存在特异性调谐于特定 pFO 整体的单一上游神经元投射?该可能性极低,因为 64,000 种刺激使各图像呈现实质上单次发生,且记录神经元对对两类刺激的发放率几乎等同,调谐更可能基于局部构件本身;其二,是否存在来自广谱面孔专一性神经元的弥散性输入?数据表明非最优类面孔刺激未能诱发相关增强,削弱了该解释;其三,是否源于对类面孔刺激更强烈的自上而下注意?尽管注意可增强神经同步(Steinmetz et al., 2000; Fries et al., 2001),但非最优刺激未能显现相关增强这一现象同样不支持注意假说。作者进而推论,构型调制更可能源自局部皮层微回路内突触权重的动态交互。
在与既往文献对话中,该效应为心理物理学中的面孔构型优势提供了神经生理层面的机制解释;虽然人类脑电研究曾报道正立面孔誘发增强的 gamma 相干(Rodriguez et al., 1999),但本记录未在单细胞水平观察到持续的 gamma 振荡,推测与单细胞互相关测量局部场电位同步的敏感性差异有关。局限性方面,分析主要覆盖经 minimax 算法筛选、对特定部件响应较强的神经元对,未入选神经元在整体表征中的角色尚待阐明;互相关分析中 ±2 ms 盲区限制了对单侧峰与双侧峰的精确区分;该效应是否受早期行为训练塑造,以及类似的时间相关机制是否普遍适用于非面孔物体的构型表征,仍是后续研究的重要课题。
一句话总结
本研究通过严格匹配局部部件物理特征的设计,证实下颞叶皮层单神经元对在表征特征空间构型时,主要表现为动作电位时间相关性的动态调制而非放电率的整体变化。这种百毫秒级的尖峰相关信号,为神经系统利用时序协调解决视觉特征绑定问题提供了直接的实验证据。