这篇文章在清醒行为猴的颞下皮层(inferior temporal cortex,IT 皮层)同时记录细胞对,检验一个经典问题:同一组局部特征排成面孔构型还是随机构型,神经反应会有何不同。作者发现,类面孔排列引起的神经元间尖峰相关性显著高于随机排列,而放电率几乎不变,且这种相关性差异在刺激呈现后 300 ms 内即出现——为"相关放电编码"参与整体物体表征提供了直接证据。
研究背景
视觉物体识别的一个基本步骤,是把空间上分离的多个局部特征整合为一个独特的整体。成像与单细胞研究提示这一过程由高级联合皮层完成:在人的梭状回与颞下回以及猴 IT 皮层中,存在对熟悉或学习过的复杂物体特异反应的神经元;但对许多复杂物体而言,IT 神经元对整体内的较简单特征同样反应良好。问题在于,即使只有少量离散特征,组合起来也能产生天文数字级的独特整体,每种组合中局部特征各有特定构型(configuration)。这类"独特整体 + 构型信息"的精确编码方案在当时仍然基本未知。
已有两种候选机制。其一是群体率编码(population rate coding):大量调谐各异的 IT 神经元作为群体足以编码任何独特整体;其二是相关放电机制(von der Malsburg, 1981; Singer & Gray, 1995):各自编码局部特征的神经元通过放电的时间相关实现整合。此前研究已证明 IT 神经元存在相关放电(Gochin et al., 1991; Gawne & Richmond, 1993 等),但尚无人检验两个关键问题:整体内局部特征的空间构型能否反映在 IT 的尖峰相关性中?这种相关性能否快到足以介导识别?心理物理学上的"面孔优越效应"(face superiority effect)——排成面孔构型的部件比随机排列被更快更准地识别(Gorea & Julesz, 1990)——恰恰需要一个神经层面的解释,这是本文的缺口所在。
研究思路
作者的核心设计是"控制部件、只变构型"。他们准备了 120 个面部特征样部件(40 个眼样、40 个鼻样、40 个嘴样),由此构造 64,000(即 40 的三次方)个类面孔物体(face-like object,FO)及对应的非类面孔物体(non-face-like object,NFO)——NFO 由同一组部件随机排列而成。如此庞大且在记录前几乎从未重复见过的刺激库,使得单个 IT 神经元难以被调谐到某个特定的 FO(Kobatake et al., 1998; Baker et al., 2002),从而在刺激设计层面把"构型"与"长期熟悉度"分离开:任何 FO 与其配对 NFO 的差别只剩空间排列。
第二个关键决策是为互相关分析保证信噪比。互相关需要足够的尖峰数,于是作者用 minimax 算法为每个细胞对挑选部件组合,使两个神经元都尽可能高反应,得到每对的最优 FO(pFO)与最优 NFO(pNFO);为了避免选择偏倚,互相关本身在记录过程中完全不做,刺激筛选只依据放电率。在此基础上,先用单细胞对做示例,再做群体统计与 ROC 分析检验构型区分的可靠性,最后用滑动窗分析回答"多快出现"。
方法
两只日本猕猴(Macaca fuscata)。先用延迟匹配样本任务(delayed matching-to-sample,DMS,延迟 2 s)对 120 个部件做大量训练(每部件至少 600 次曝光),目的正是让 IT 神经元对这些部件产生学习依赖的反应特性;再训练 FO/NFO 判断任务:猴子注视窗 1.0–1.4° 内,FO 或 NFO 呈现 1 s(暗示期,cue period),经 500 ms 延迟后出现 go 信号,需在 1 s 内按左或右键报告刺激类别,记录期间正确率 99.7±0.4%。另有被动注视任务(5 个部件依次呈现 350 ms,间隔 600 ms)用于筛选部件。整个物体由 4 个部件(每个 2.3°×2.3°)在不重叠的前提下排进半径 3° 的区域,外围有一圈轮廓(高 7.8°、宽 6.1°)。
记录与分析:用 tetrode 在两猴三个半球的 IT 皮层做双重单元胞外同步记录,信号带通 500 Hz–5 kHz,在线窗判别粗分、离线 25 kHz 波形分析精分;自相关图确认不应期,ISI 短于 2 ms 的尖峰超过总数 1% 的单元被弃用。部件选择用 minimax 算法:先在被动注视任务中找出使"两神经元中较小反应"最大的眼样/鼻样/嘴样部件各前 3 名,组成 27 种组合在 FO/NFO 任务中测试,选使两细胞对两种排列中最小反应最大的组合为该对的 pFO 与 pNFO;第 4、5 名及最不有效的部件则用于构造非最优物体。互相关分析(仅正确试次):以刺激开始后 80 ms 起 1 s 内的尖峰构造 lag ±100 ms 的 raw cross-correlogram(1 ms 分辨率,每个刺激至少 55 试次、>1600 尖峰),减去用单试次错位计算的 shift predictor(消除刺激锁定的成分)得 SSCC,峰高以 shift predictor 的 SD 归一为 z 分;z>2.81(P<0.05,单尾,±10 ms 窗内,多重比较校正)计为显著峰;±2 ms 内不计(spike sorting 无法分离 1.28 ms 内同时到达的尖峰)。另以神经相关系数(neural correlation coefficient,NCC)作为第二种指标;群体层面用受试者工作特征分析(receiver operating characteristic,ROC,5000 次置换检验评估曲线下面积),并做互信息分析评估单试次信息量。
主要结果
-
单细胞对示例(图 2):某细胞对的两个神经元对 pFO 与 pNFO 都有显著反应,但 raw cross-correlogram 只在 pFO 下出现突出峰。其 SSCC 峰高对 pFO 显著(P≤0.001)而对 pNFO 不显著(P≥0.3);峰的半高全宽 4 ms,峰延迟 4 ms。
-
群体层面的 FO 优势(图 3A):134 个对 pFO/pNFO 均有显著反应的细胞(来自 48 个记录 session)中,30 对(50 个细胞)的 SSCC 存在显著峰;其中 23/30(77%)对 pFO 的峰高高于 pNFO(P≤0.004,χ² 检验),群体整体上 pFO 的 z 分峰高显著更高(P≤0.003,配对 t 检验,n=30),且两猴结果一致。以"SSCC 峰下尖峰占两神经元尖峰总数一半的比例"度量相关强度:pFO 为 1.6±0.2%,pNFO 为 1.1±0.2%(P≤0.02);NCC 指标同样显著(0.017±0.002 vs 0.013±0.002,P≤0.01)。
-
放电率无一致偏倚(图 3B、图 4):同一细胞对的 pFO 与 pNFO 平均放电率无构型依赖(P≥0.8,n=30);在 23 个 FO 优势对中,12 对(52%)反而对 pNFO 放电率更高;相关与放电率的归一化差值之间 Spearman r=0.16(P≥0.4,不显著)。故 FO 优势不能由放电率差异解释,这些神经元也不属于"面孔神经元"(face neurons)群体。
-
相关信号在群体中可靠可辨(图 5):SSCC 峰高 z 分的 ROC 曲线下面积为 0.72,显著高于机遇水平 0.5(P≤0.001,置换检验,n=30);放电率的面积仅 0.55(P≥0.2,不显著)。互信息分析显示,即使单个试次,相关尖峰携带的构型信息也显著大于错位对照(0.020±0.003 vs 0.006±0.001 bits,P≤0.005);不过放电率携带的信息总量更大(0.27±0.05 bits,P≤0.001),17% 的细胞对(5/30)相关信息超过放电率信息的 80%。
-
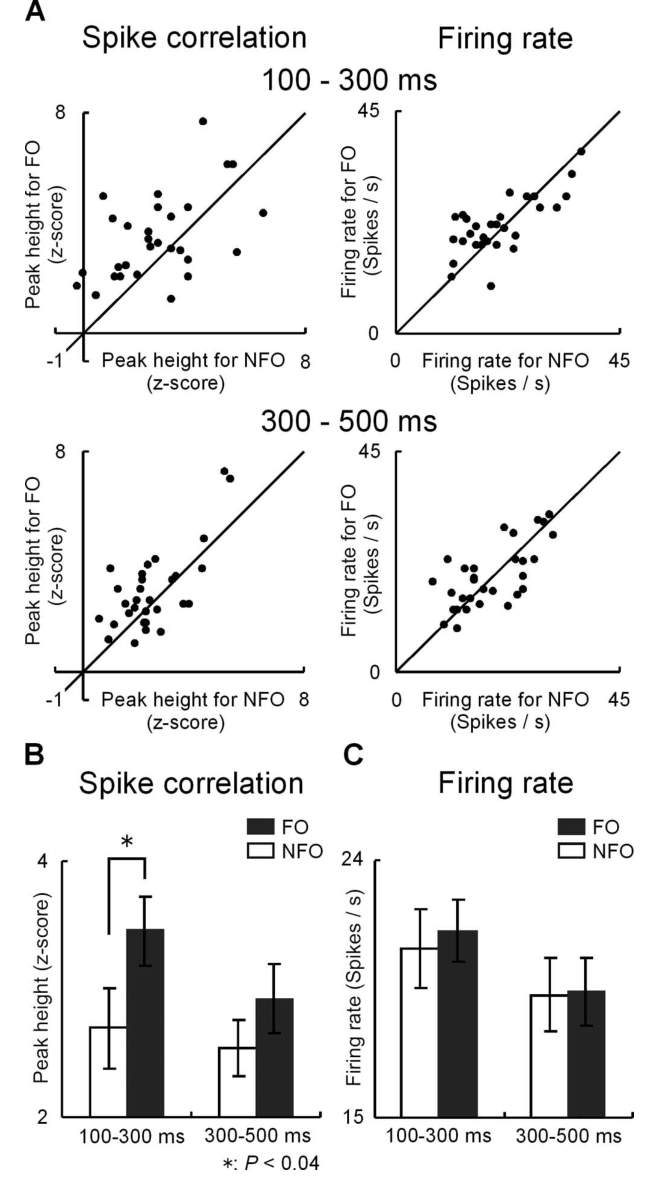
构型相关的快速出现(图 6、图 7):以 500 ms 滑动窗(步长 100 ms)计算,群体上 pFO 相关在时间点 500 与 600 ms 显著强于 pNFO(P≤0.02 与 P≤0.01,经 Bonferroni 与重叠采样校正);进一步把 0–500 ms 对半分,发现 100–300 ms 内 pFO 优势已显著(P≤0.04,n=29),而这一时期恰是多数神经元放电最强的时段,放电率却无构型依赖(P≥0.3);300–500 ms 相关差减弱至 P=0.12(仍有弱优势),放电率 P=0.9。300 ms 的时标足以介导对呈现刺激的识别。
-
非最优 FO/NFO 对之间无 FO 优势(文中引用补充表 1):结合 pNFO 无显著峰的结果,说明这种优势并非"任何类面孔构型都引发的全局同步",而只出现在细胞对的最优刺激上。
图注解读
图 1 · 类面孔物体与非类面孔物体的构造
原文图注:Figure1. Wholeobjectsandtheirconstituentpartsusedinabehavioraltask.A,Examplesof whole objects: FOs (left) and NFOs (right) composed of the same set of parts. The background wasdarkblue,andtheobjectswereyellow.B,Constituentpartsofthewholeobjectsshownin A. We prepared 120 facial-feature-like parts (40 eye-like parts, 40 nose-like parts, and 40 mouth-like parts) to construct 64,000 (equal to 40 3) FOs and NFOs.
这张图交代刺激逻辑:A 行左右两个物体由同一组部件组成,左边是眼—鼻—嘴按面孔位置排列的 FO,右边是同一套部件随机摆放的 NFO(背景深蓝、物体黄色)。B 行展示 120 个部件中的样例。读懂它就明白了实验的控制思想:部件 identical、构型是唯一变量;64,000 的规模保证任一 FO 对猴子来说几乎是"初见",从而避免单个神经元被调谐到某个特定整体。此图支撑研究思路部分。
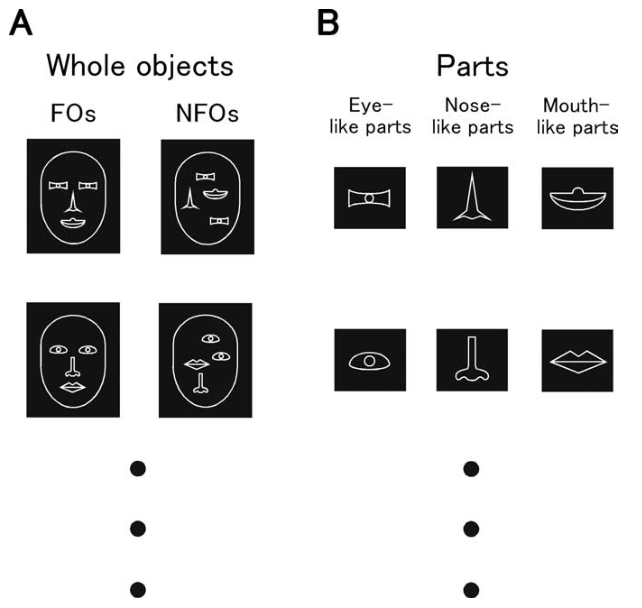
图 2 · 单个细胞对:只有 pFO 出现相关峰
原文图注:Figure2. Feature-configuration-dependentspikecorrelationofapairofITneurons.A,Waveforms,auto-correlograms,andperistimulustimehistogramsofapairofITneuronstotheiroptimal FO and optimal NFO. Fifty traces of action potentials were superimposed. Horizontal bars below each peristimulus time histogram indicate 1 s duration of stimulus presentation (cue period). B, Correlatedactivityofthecellpair.Top,Rawcross-correlogramsofthecellpairobtainedwiththeoptimalFO(left,red)andoptimalNFO(right,blue).Abscissa,Spiketimeofcell1relativetothatof cell 2. Bin width, 1 ms. Gray traces, Shift predictors. Bottom, SSCCs of the cell pair obtained with the optimal FO (left, red) and optimal NFO (right, blue). The cross-correlograms for the bins within ±2 ms were drawn with thin lines and were not included in the analyses (see Materials and Methods). Horizontal gray lines, Confidence limit ( p ≤ 0.05, corrected for multiple comparisons).
A 栏先证明两细胞对 pFO 和 pNFO 都"看得见"(波形、自相关图与刺激期直方图),排除"一个细胞根本不反应"的解释;B 栏上排是原始互相关图(横轴为细胞 1 相对细胞 2 的放电时刻,1 ms bin,灰线为 shift predictor),下排是减去 shift predictor 后的 SSCC:红色(pFO)在滞后约 4 ms 处抬升出超过置信限(灰色横线)的峰,蓝色(pNFO)则平平。这张图是结果 1 的证据:反应率相似的前提下,相关峰只在类面孔构型下出现。
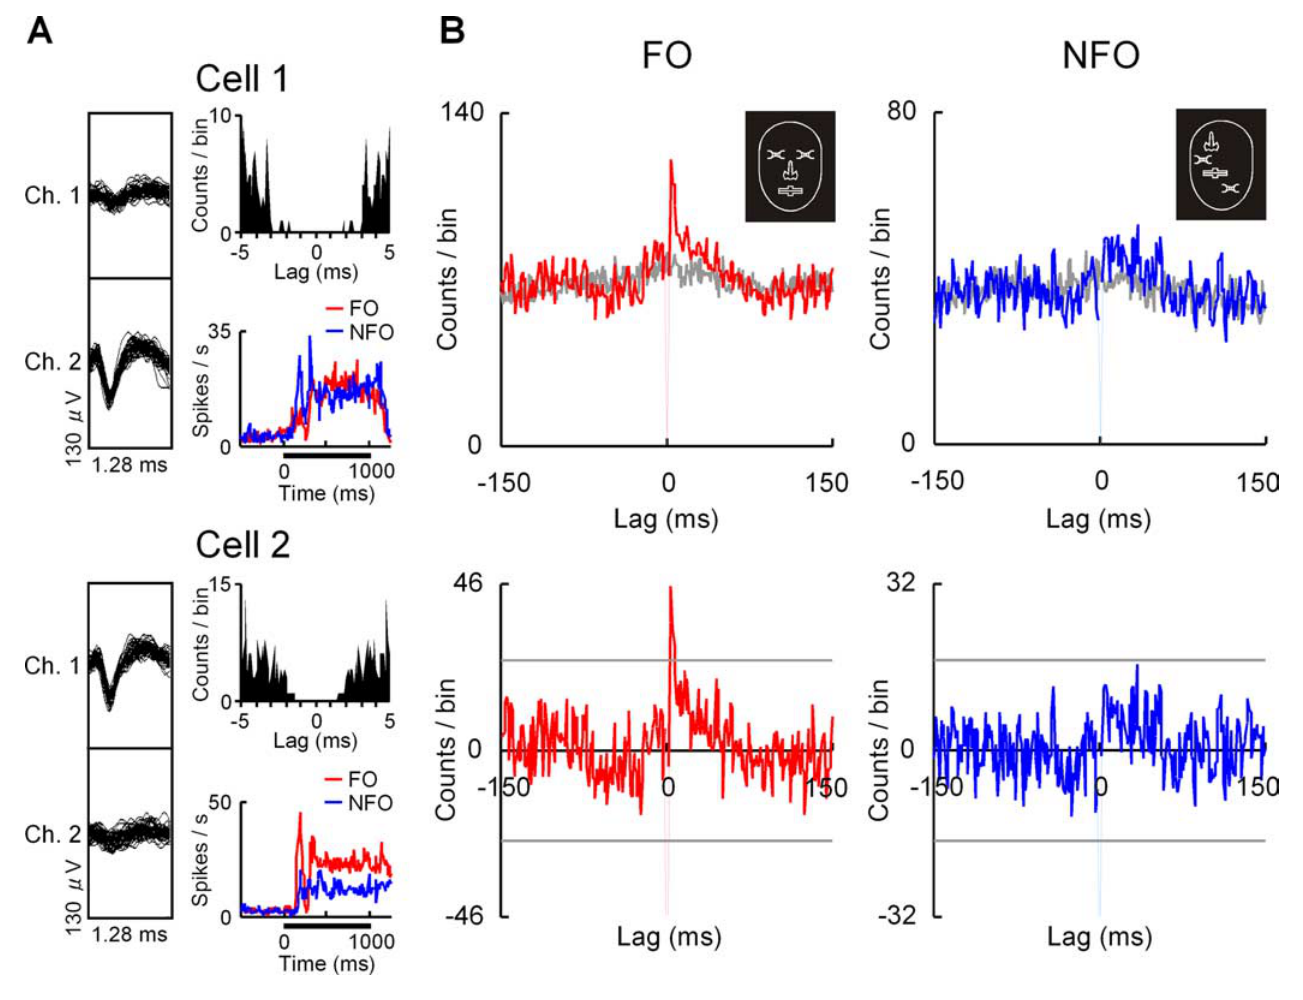
图 3 · 群体统计:相关有偏倚,放电率没有
原文图注:Figure 3. Population data for spike correlation and firing rate. A, Peak heights of SSCCs in z-scoresforallthecellpairs,obtainedforoptimalFOs(ordinate)andNFOs(abscissa)(n=30). Horizontal and vertical lines, Confidence limit ( p = 0.05). p value depicted in the figure was derivedfrompairedttest.Trianglesrepresentoutliersandwererescaledpreservingtheratioof the peak heights for the two conditions. B, Mean firing rates for all the cell pairs in the same periodasthatfortheabovecorrelationanalyses,obtainedforoptimalFOs(ordinate)andNFOs (abscissa) (n = 30).
两张散点图纵轴均为 pFO、横轴均为 pNFO。A 图中大多数点落在对角线上方(FO 相关更高,23/30),配对 t 检验 P≤0.003;横竖线标出显著性置信限,三角形是保留比值后重新标定的离群点。B 图中点大致均匀分布在对角线两侧(P≥0.8)。两图对照构成结果 2 与 3 的核心:构型只调制"相关性"而不调制"放电率"。
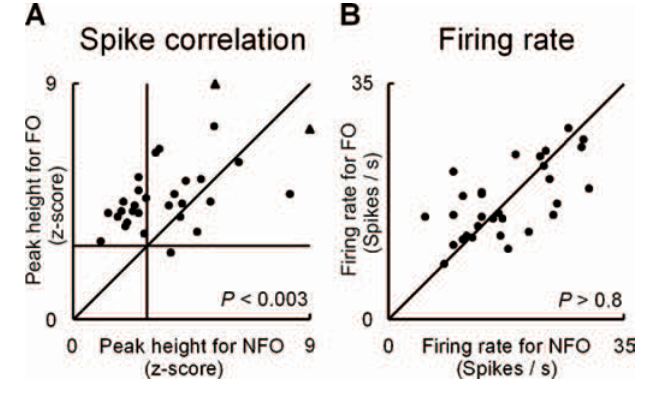
图 4 · 相关优势与放电率优势互不绑定
原文图注:Figure4. Relationshipbetweenspikecorrelationandfiringrateforeachcellpair.Difference in the SSCC peak height between the optimal FO and NFO for each cell pair was normalized by thesum(ordinate)andplottedagainstthenormalizeddifferenceinthefiringrateforthesame cellpair(abscissa).PositivevalueindicatesthattheoptimalFOevokedhigherspikecorrelation (ordinate) or firing rate (abscissa) than the corresponding optimal NFO.
横轴是每对细胞放电率的归一化差值(正值=FO 引起更高放电率),纵轴是相关峰高的归一化差值(正值=FO 相关更强)。若相关优势只是放电率优势的副产品,点应聚在右上方;实际散点几乎无关联(Spearman r=0.16,P≥0.4),且有 12/23 对落在第二象限(放电率对 NFO 更高、相关却对 FO 更高)。此图支撑结果 3 的"不能由放电率解释"结论。
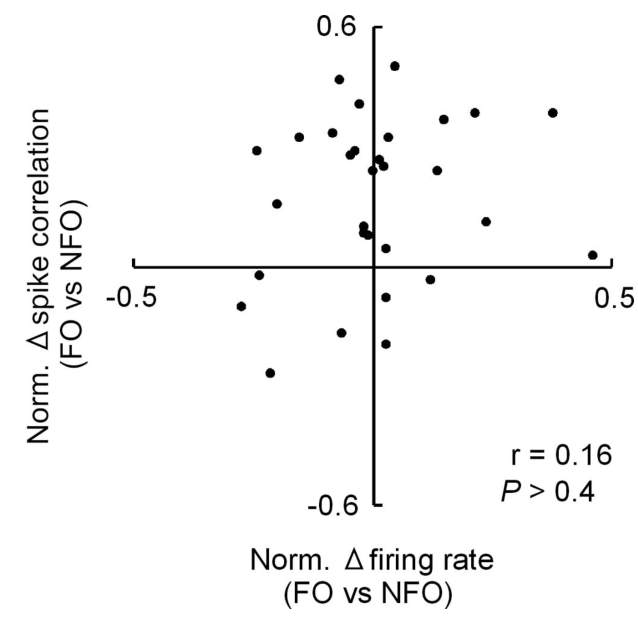
图 5 · ROC 分析:相关信号在群体层面可靠
原文图注:Figure 5. ROC analysis for assessing the reliability of spike correlation to discriminate be- tweendifferentfeatureconfigurations.A,ROCcurvesforspikecorrelation(black)andforfiring rate (gray). Ordinate and abscissa represent the hit and false alarm rate for detecting pFOs, respectively (see Materials and Methods). B, Area under the ROC curve for spike correlation (black)andforfiringrate(gray).Dottedlineindicatesthechancelevel.Statisticalsignificanceof theareaundertheROCcurveswereassessedbyconstructing5000surrogatecurvesbypermu- tatingtheoriginaldistributionsofSSCCpeakheightoroffiringrateamongthedifferentfeature configurations (pFOs and pNFOs).
A 图中黑线(相关)整体位于灰线(放电率)左上方,即同样误报率下命中率更高;B 图给曲线下面积:相关 0.72 对放电率 0.55,虚线为 0.5 的机遇水平,显著性由 5000 条置换 surrogate 曲线评估。读者需注意此分析的"群体"含义:把 30 对细胞的峰高分布当作两个"信号+噪声"分布来做信号检测论比较。此图支撑结果 4——相关差异虽然幅度不大,却足以在群体水平可靠区分两种构型。
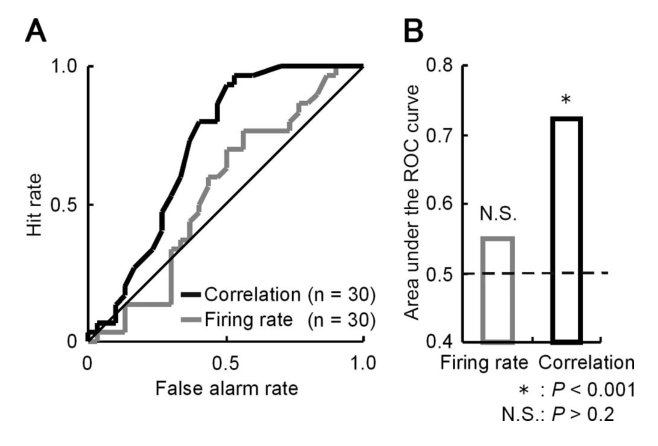
图 6 · 相关差异的时间进程:放电率全程无差
原文图注:Figure6. Temporal dynamics of spike correlation. A, Time course of spike correlation (z- score)ofapairofneuronsinresponsetotheoptimalFO(left)andNFO(right).Thesurfaceplots wereconstructedfromSSCCscalculatedusingspikesina500mswindowthatwassuccessively shiftedinstepsof100ms.SSCCatthetime0wascalculatedusingspikesina500msperiodjust beforecueonset.B,C,Auto-correlogramsofthepairofneurons(B)andtimecourseofnormal- ized firing rates of the cell pair in response to the optimal FO (red) and NFO (blue) (C). D, E, Averagetimecourses(thicklines)ofspikecorrelation(D)andfiringrate(E)foroptimalFOs(red) and NFOs (blue) across all of the cell pairs (n = 30). Thin lines, Average ± SEM. Seven and six cell pairs were excluded from the analyses for the time points of 0 and 100 ms, respectively, attributable to low
A 图是示例细胞对的曲面图:横轴为滑动窗中心时刻(0 ms 为暗示出现前 500 ms),纵轴为滞后时间,颜色为 z 分;pFO(左)在滞后 4 ms 处形成随时间延续的"山脊",而 pNFO(右)没有。D、E 为群体平均:D 中红色曲线(pFO 相关)在 500 与 600 ms 两个时间点显著高于蓝色(星号标注),E 中两条放电率曲线全程重叠。此图支撑结果 5 的前半段:构型调制出现在刺激呈现后约半秒的窗口内,且与放电率脱钩。
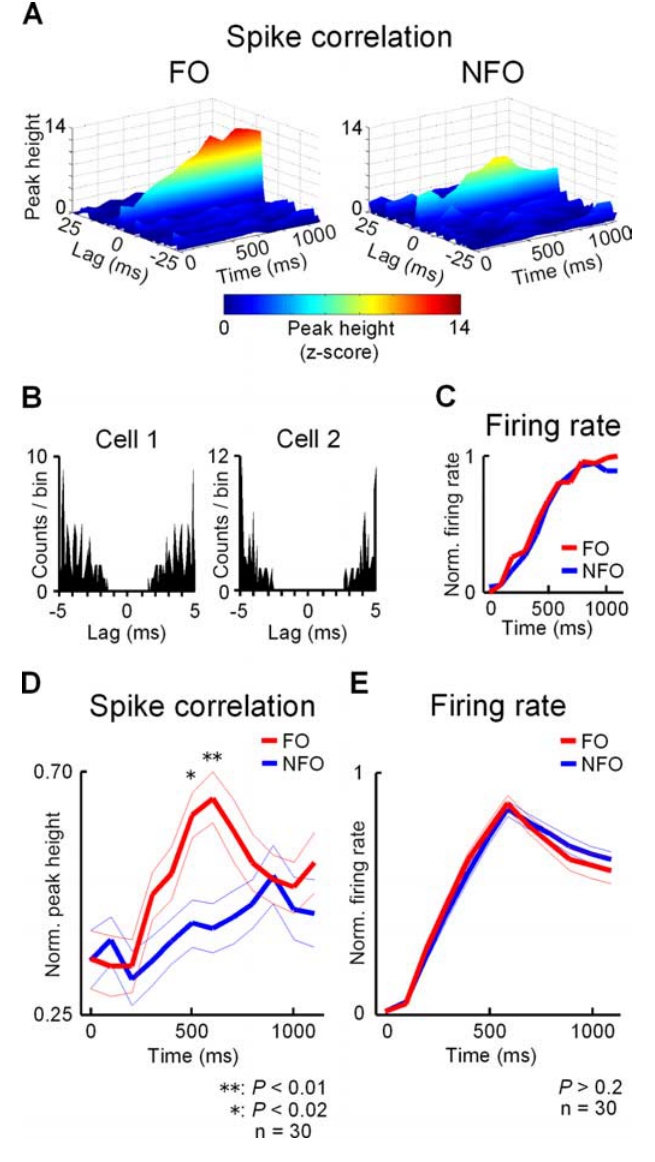
图 7 · 100–300 ms 内相关优势已显著
原文图注:Figure7. Rapidemergenceoffeatureconfiguration-dependentspikecorrelation.A,Scatter gramsshowingpeakheightsofSSCCsinz-score(left)andmeanfiringrates(right)forallofthe cell pairs, elicited by optimal FOs (ordinate) and NFOs (abscissa) in the periods of 100–300 ms (top; n = 29, one pair with small number of spikes was excluded) and 300–500 ms (bottom; n = 30) after cue onset. B, C, Average peak heights of SSCCs in z-scores (B) and average firing rates (C) across all of the cell pairs elicited by optimal FOs (gray) and NFOs (white) during the periodsof100–300ms(left;n=29)and300–500ms(right;n=30)aftercueonset.Asterisk, Significant difference assessed by paired t test corrected for multiple comparisons for the di- vided time window. Error bars represent SEM.
把刺激后 0–500 ms 切成两个 200 ms 窗分别画散点与均值:上排(100–300 ms)左图点整体偏向对角线上方,B 中灰柱(FO)显著高于白柱(NFO,星号),而右图放电率无差别;下排(300–500 ms)相关差异减弱至不显著(P=0.12,仍有弱优势),放电率亦无差异。此图支撑结果 5 的关键时间点:构型相关信息在刺激呈现后 300 ms 内即已可读出,速度足以参与识别。
讨论
作者的解释是:独特整体内局部特征的空间构型,能够以群体神经元尖峰相关性的快速调制形式反映在 IT 皮层。虽然 pFO 的相关优势只体现在总尖峰的一小部分(峰下尖峰占 1.6% 对 1.1%),但相关放电对突触后神经元的放电概率有额外影响(coincidence detection;Alonso et al., 1996; Usrey et al., 2000; Roy & Alloway, 2001),因此这种较小差异也可能在 IT 网络中有效区分构型;ROC 显示该差异相对群体间的总方差是稳健的。方法层面,作者同时使用 SSCC 与 NCC 两种量化指标并得到一致结果——SSCC 对 shift predictor 的二项计数方差敏感,NCC 则不受其直接影响——从而排除了方法学假象。
作者随后逐一排查 pFO 优势的三个可能来源:(1) 来自对特定 pFO 选择性神经元的共同输入——不太可能,因为 64,000 个 FO 近乎每试次唯一地呈现过,且记录细胞对对 pFO/pNFO 的反应几乎相等,说明其选择性更可能与构件本身相关;(2) 来自对许多面孔反应的 face neuron 的共同输入——也不太可能,因为这类神经元对非最优 FO 同样应有反应,而数据显示非最优 FO/NFO 之间没有 FO 优势;(3) 对 FO 更强的注意——注意确实增强同步(Steinmetz et al., 2000; Fries et al., 2001),但同样的非最优 FO 反例也削弱这一解释。作者由此转向"神经元环路内局部突触传递的更复杂调制"的假说。与文献的对话集中在面孔优越效应:pFO 优势可能是其神经机制之一;人类 EEG 中正立 Mooney 面孔引起比倒立更强的 gamma 相干(Rodriguez et al., 1999),完整线描物引起比打乱图形更强的 gamma 振荡(Herrmann et al., 2004),但本研究未记录到 pFO 诱导的 gamma 振荡——作者解释单细胞互相关对振荡同步的检出敏感性低于多单元或局部场电位。局限性方面,作者承认分析仅覆盖被 minimax 挑选、对最优刺激反应较强的 IT 神经元亚群,其他亚群如何参与独特整体的表征是开放问题;SSCC 中央 ±2 ms bin 不可观测,故无法断定峰是跨越零滞后还是单侧(只能统计"单侧样"峰,29 个 pFO 显著对中 20 个为单侧样,且可推测的突触前/后神经元的刺激选择性无差异);pFO 优势是否由任务训练习得、以及这种相关是否也参与一般物体的表征,都有待后续研究。
一句话总结
在我的理解里,这正是"捆绑问题"在 IT 皮层的一次精细检验:同一组零件,换成面孔式的排法,神经元之间就多了那么 0.5 个百分点的同步尖峰——幅度不起眼,却让"读出相关"变成群体水平上可靠的构型信号,而放电率纹丝不动。作者对三个备选来源自己动手拆掉的做法,比正面结论更见功力;但训练可能塑造构型敏感性这一点,也让"一般物体表征是否同样如此"仍是一个开放问题。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B] - Fig2: 提取质量
good,对齐度full,识别面板[A, B] - Fig3: 提取质量
good,对齐度full,识别面板[A, B] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[A, B] - Fig6: 提取质量
good,对齐度full,识别面板[A, B, C, D, E] - Fig7: 提取质量
good,对齐度full,识别面板[A, B, C]