这项研究在包含自主眼动的视觉搜索任务中,逐试次检验了猕猴下颞叶皮层(inferior temporal cortex,IT)神经放电能否预测目标物体识别的二元选择行为与识别时间。作者设计了在眼跳期间触发的目标替换试验(swap trials):在猴向目标发起定向扫视的瞬间改变目标身份,且替换前后两目标关联相反的按键动作,以此推断动物何时识别出目标。结果显示,对初始目标具有调谐偏好的 IT 神经元,其扫视前放电水平显著预测动物的行为选择(群体选择概率约为 0.62),且在常规试验中放电率与注视后按键反应时间呈负相关。
研究背景
下颞叶皮层在视觉物体识别中的作用主要源于两类证据:一是单细胞记录发现大量对复杂形状具有高度调谐的神经元;二是下颞叶损毁导致显著的物体辨别与再认缺损。然而,这两类证据尚未直接解答在自然行为状态下单次识别成功与具体神经元放电波动的逐试次关联。在常规的简单辨别任务中,动物的行为正确率通常接近天花板,缺乏足够的行为变异性来建立神经放电涨落与知觉判断之间的统计联系。此外,在自然观看中,物体多先出现于近周边视野,随后通过扫视落入中央凹;物体识别可能在注视发生前便已启动,仅分析注视后的静态平均反应容易忽略这一前馈动态过程。
以往研究通过双眼竞争等范式发现下颞叶神经活动与知觉交替存在关联,但双眼竞争涉及特殊的双稳态抑制机制,与常规搜索中的快速识别存在差异。自由搜索实验曾报告早期下颞叶放电幅度与较快的行为反应相伴随,但不同试次间的刺激阵列构型、眼跳幅度与目标相对偏心率往往同时变动,导致神经响应与识别行为的因果联系难以完全归因于目标辨识本身。研究需要一种实验设计:在保持自主眼动和确定性物理刺激的前提下,为“是否识别”及“何时识别”提供客观的行为学读数,并严格控制眼动参数及刺激空间布局的干扰。
本研究利用定向扫视期间的目标替换范式应对上述挑战:由于换靶前后的两个物体分别关联相反的按键动作,动物最终的选择结果可直接用于推断其在扫视前是否已提取出外周目标的身份信息。通过记录目标选择性神经元的单单位放电,将换靶试验中的选择概率(choice probability)与常规试验中的反应时间相结合,从两个行为学维度检验同一神经识别过程。实验通过标准化刺激阵列、注视前目标偏心率与注视时长分析,以及无效目标对照组,控制刺激布局与眼动动力学变量的潜在混淆。
研究思路
研究设计了在伪随机彩色噪声背景下的视觉搜索任务:阵列包含两个干扰物和一个目标,猴识别出预先训练的目标后按下左或右对应按键获取奖励。通过周边 75%、中心 100% 的对比度空间排布,诱导猴形成较为固定的两步扫视路径:先注视邻近的干扰物,再向目标发起“定向扫视”(targeting saccade)。换靶机制在定向扫视启动的瞬间触发(利用眼跳抑制效应降低突变觉察),将初始目标无缝替换为手部按键关联相反的新目标。由此,猴最终按左还是按右直接反映了其是否在扫视前便已从近周边视野(约 6° 偏心率)识别出原目标。
对于每个记录神经元,预先通过被动注视任务筛选出测试刺激组合:一个有效目标(该细胞偏好的特征)、一个反向关联的对比目标以及两个非关联干扰物。数据分析涵盖两个核心维度:在换靶试验中,利用受试者工作特征曲线下面积(ROC 分析,即选择概率 Choice Probability)检验扫视前放电能否预测行为选择;在常规未换靶试验中,利用双权中间相关(biweight midcorrelation)检验扫视前放电与后续按键反应时间的关系。随后结合多元回归分析和极值剔除,评估目标偏心率与注视时长等眼动参数对神经预测效应的影响。
方法
实验动物为两只雄性恒河猴(6 岁与 10 岁),记录电极植入于左侧前部腹侧下颞叶皮层(前内侧颞沟外侧)。共采集 44 个孤立良好的单单位(猴 S 25 个、猴 M 19 个),其中 2 个因行为对照错误率过高被剔除,最终 42 个神经元纳入分析。刺激库由 100 幅日常物体的彩色图像组成(1.5°×1.5°),其中 50 幅为目标(左手与右手按键各 25 幅),50 幅为无任务关联的干扰物。行为试次要求被试执行典型的扫视序列:注视邻近干扰物后发起奔向目标的定向扫视。换靶由眼位进入目标周围 5.25° 阈值区时由硬件系统触发,显示器在触发后平均 6 ms 内(1–11 ms)完成帧更新,经光电二极管验证物理误差 <100 µs;未能在眼跳中段完成刷新的试次(约 6.5%)被剔除。
每天的记录包含定制的四刺激阵列与从刺激库随机抽取的对照阵列,常规试验与换靶试验随机交替。神经信号分析窗口设定为以定向扫视启动时刻为中心的 200 ms 时间窗(扫视前 100 ms 至扫视后 100 ms),该时段为换靶前目标驱动该神经元的最后物理时间。统计分析:在换靶试验中针对单个神经元计算基于行为选择分类的 ROC 曲线下面积,并采用置换检验(≥1000 次,双尾 α=0.05);在常规试验中计算放电率与反应时间之间的双权中间相关系数;群体水平将各神经元放电率进行 z-score 标准化后合并统计。采用多元线性回归分析(自变量包括标准化放电率、注视前目标偏心率、注视时长)及数据截尾法排除眼动生理参数的干扰。
主要结果
- 行为数据可靠性验证(图 3):在换靶试验中,若动物按键选择匹配换靶前目标,其自目标注视起始至按键的反应时间显著短于匹配换靶后目标的反应(平均 197 ms 对比 395 ms);这一反应时间差异在全部 42 个记录会话中均达统计显著(平均 ROC 面积为 0.92,单会话 p<0.001)。常规试验的按键错误率 ≤6%;换靶至同方向按键的对照试次错误率 ≤2%,干扰物换为目标的试次错误率 ≤10%,表明猴在换靶试次中并非随机反应。
- 换靶试验中扫视前放电显著预测动物的选择行为(图 5、图 6A、B):对换靶前目标敏感的神经元在定向扫视启动前放电逐渐上升,且在动物最终做出匹配换靶前目标选择的试次中,放电上升幅度更为显著。单个神经元选择概率(ROC 面积):first-saccade 条件为 0.81,second-saccade 条件为 0.78(均 p<0.01)。单细胞水平:first-saccade 条件下 13/32(41%)的神经元表现出统计显著的选择概率,且其中 92% 的数值大于 0.50;second-saccade 条件下 12/29(41%)显著,除 1 个细胞外全部大于 0.50。标准化群体合并分析表明,两类条件的整体 ROC 面积分别为 0.62 与 0.61,显著高于随机水平(p<0.0005)。
- 神经预测效应独立于眼动几何参数变异(图 7):动物在两类选择间的注视前目标偏心率差异仅约 0.1°,注视时长差异仅约 2 ms。多元回归分析表明,标准化放电率是行为选择的最主要预测变量(标准化回归系数 β 分别为 0.203 与 0.186,p<0.001),而偏心率与注视时长的贡献较小;通过截尾剔除极值、使两类选择间的偏心率与注视时长差异降至无统计学意义后,放电率的 ROC 面积仍保持在 0.58 与 0.59。控制目标绝对空间位置的子集分析同样显示平均 ROC 面积达到 0.58/0.59(p=0.0008/0.004)。
- 常规试验中扫视前放电预测物体识别时间(图 8):在未换靶的常规试验中,扫视前 200 ms 窗口的神经放电率与随后的按键反应时间呈负相关。代表性神经元的双权相关系数分别为 −0.41(first-saccade)与 −0.55(second-saccade);在群体中,分别有 15/41(37%)与 9/41(22%)的神经元表现出显著负相关,且无一细胞呈显著正相关;群体合并相关系数均为 −0.15(两类条件均 p<0.0002),表明扫视前 IT 放电越强,后续识别完成及按键动作越快。
- 效应的内部一致性与刺激特异性:在 42 个神经元中,有 24 个在至少一种分析中表现出显著性(8 个神经元同时在 ROC 选择预测与常规反应时间相关分析中达显著);逐细胞分析表明,换靶试验的 ROC 面积与常规试验的相关系数呈显著负相关(first-saccade 条件下 Pearson r=−0.55,p=0.0001;second-saccade 条件下 r=−0.51,p=0.0006)。当换靶前目标为该细胞非偏好的无效刺激时,神经放电与行为选择无显著关联(群体 ROC 分别为 0.51,p=0.55;0.48,p=0.16),排除了整体警觉度或弥散性注意状态变化的混淆解释。
图注解读
图 1 · 搜索阵列与两种试验的眼动模式
原文图注:Figure 1. Example visual search displays from first-saccade (A) and second-saccade (B) trials. For both trial types, search arrays could appear in one of four directions: left (A), right, up (B), or down. In both panels, the target is the wheelchair and the weight and the cards are distractors. For trials included in the analyses, the target was always placed at one of the more eccentric positions. The black trace denotes eye position. The saccade pattern shows an initial saccade to or fixation of the closest distractor followed by a targeting saccade. This pattern was typical of all trials included in our analyses. The * indicates the targeting saccade, during which the target identity was changed on swap trials (not drawn to scale for clarity; for details, see Materials and Methods).
图中黑色轨迹代表眼位记录,星号标注了定向扫视路径。图 A(first-saccade 条件)阵列中心位于初始注视点附近,动物经首次跳视即可导向目标;图 B(second-saccade 条件)阵列相对偏移 4°,使动物首次扫视必先落入邻近的干扰物,随后再发起针对偏心目标的定向扫视。该实验图谱界定了后续神经分析所锁定的扫视前 200 ms 时间窗。
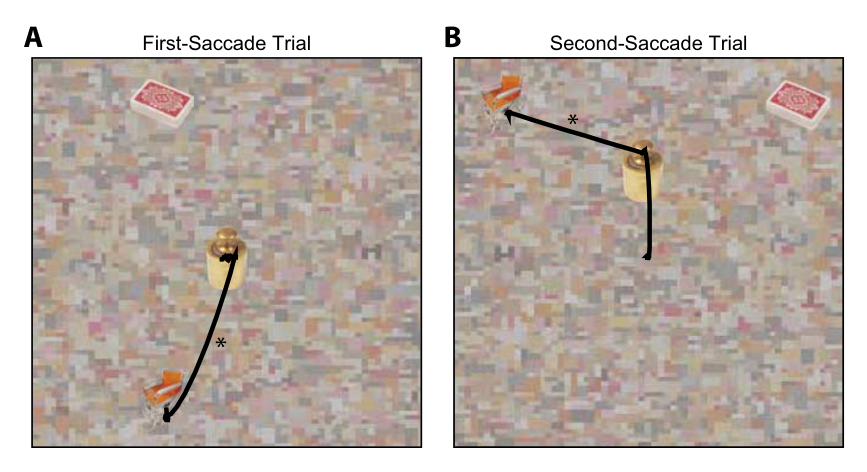
图 2 · 常规试验与换靶试验的流程对比
原文图注:Figure 2. Diagram depicting the difference between normal trials and swap trials. Eye position is denoted by the gray circle. A, On normal trials, the monkey fixated a distractor image (D) with the target (T; subscript denotes button association) in the periphery. A saccade was initiated toward the target at a time referred to as the targeting saccade onset. After target acquisition, the monkey made a manual response by pressing one of two buttons (left or right). Comparisons were made across trials with different response times (RT) measured from target acquisition to button press. B, On swap trials, the identity of the target was changed during the targeting saccade (*). Specifically, the identity was changed such that the preswap and postswap targets had opposite hand associations (here, right target swapped to left target). ……(截断)
示意图对比了常规试验(A)与换靶试验(B)的时间流程,灰色圆代表瞬时眼位。关键干预在 B 中呈现:目标身份在眼跳飞行期(星号处)发生切换,且替换前后两目标的按键方向相反。该机制使按键动作直接指示动物是基于外周前注视阶段的识别信息作答,还是基于扫视着陆后的中央凹信息作答,构成主要结果第 2 条的逻辑基础。
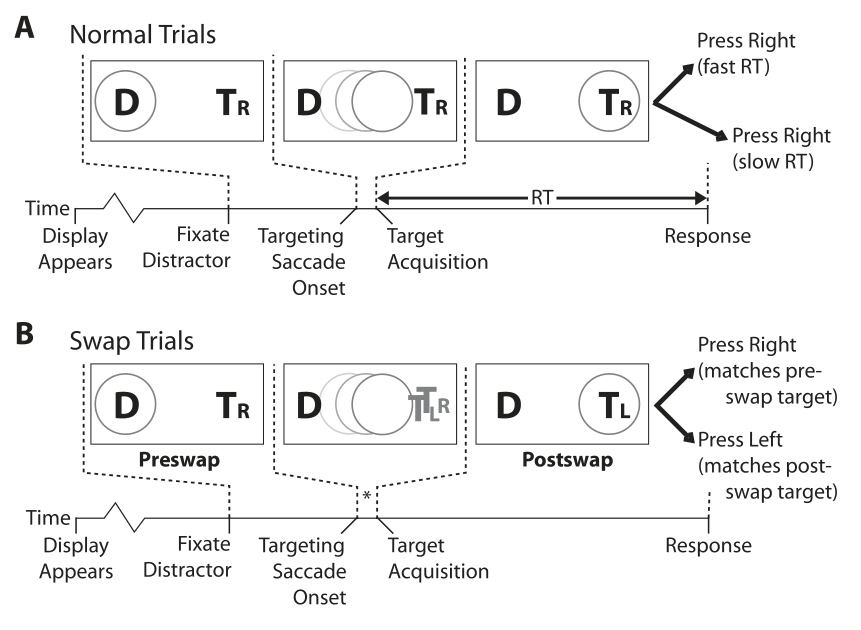
图 3 · 换靶试验反应时间分布按猴子选择分开
原文图注:Figure 3. Response time distributions for swap trials as a function of the monkey's response collapsed across all recording sessions. For each recording session, response times were significantly faster when the monkey's response matched the preswap target (p < 0.001). Trials with a response time >500 ms relative to target fixation are shown in the farthest right bin (<10% of the trials).
直方图以按键选择分类展示换靶试验的反应时间分布:匹配换靶前目标的试次其反应时间显著更短(均值 197 ms),而匹配换靶后目标的试次反应时间明显延长(均值 395 ms),反映了扫视着陆后重新识别所需的时间开销。全部 42 次记录会话中两类选择的反应时间分布均呈现显著分离(单会话 p<0.001,平均 ROC 面积 0.92),证实选择行为反映了真实的知觉时序差异,对应主要结果第 1 条。
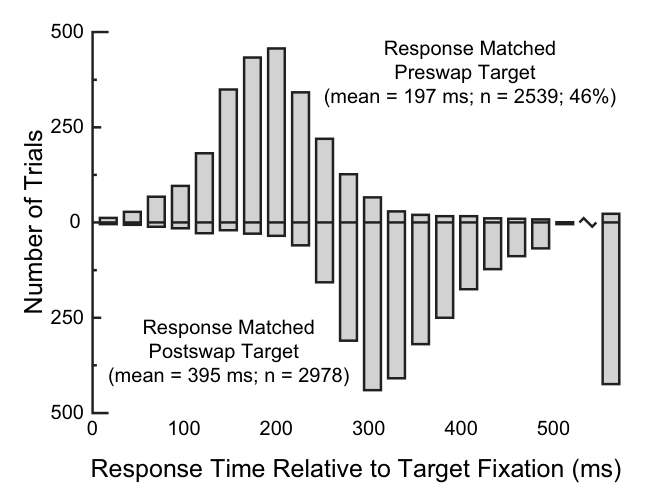
图 4 · 被动观看任务中的刺激选择性
原文图注:Figure 4. Neural response during a passive viewing task to assess stimulus selectivity for presented objects. A, Rasters and spike density functions for an example cell (same cell as in Figs. 6A–D and 8A–D). Activity is aligned to stimulus onset. On each day, one target (wheelchair here) was selected as an effective stimulus. A target with the opposite hand association (beaker here) and two distractors were chosen as ineffective stimuli. B, Population spike density functions showing average normalized response to effective target and ineffective target and distractors. The population of neurons was highly selective for the effective target.
图 A 展示代表性神经元在被动注视任务中对测试刺激的光栅图与放电密度函数(对齐刺激呈现时刻),包含有效偏好目标、反向关联目标以及两个干扰物;图 B 展示全群体神经元标准化后的平均放电密度。记录群体对选定的有效目标表现出高度特异的调谐偏好(平均选择深度为 0.83),确立了搜索任务中用于驱动特定神经元的目标刺激基准,对应主要结果第 5 条。
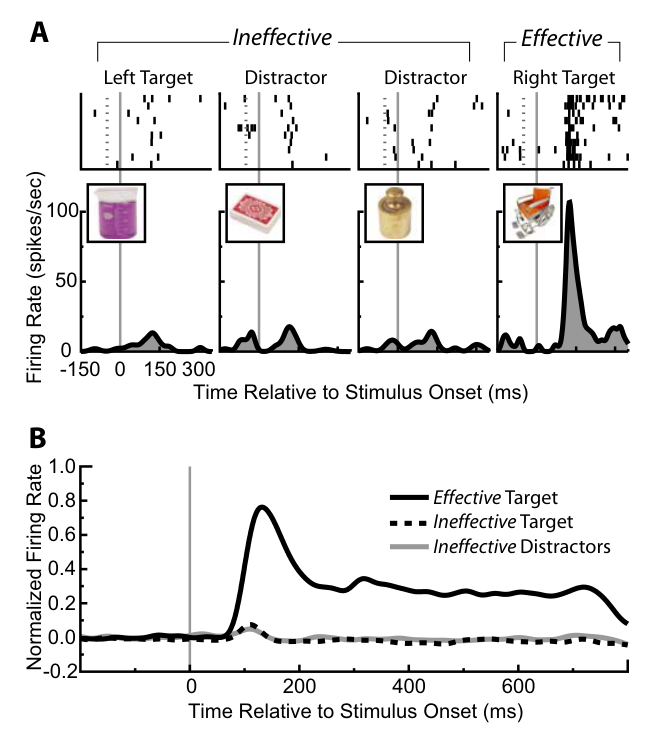
图 5 · 一个会话内的示例数据
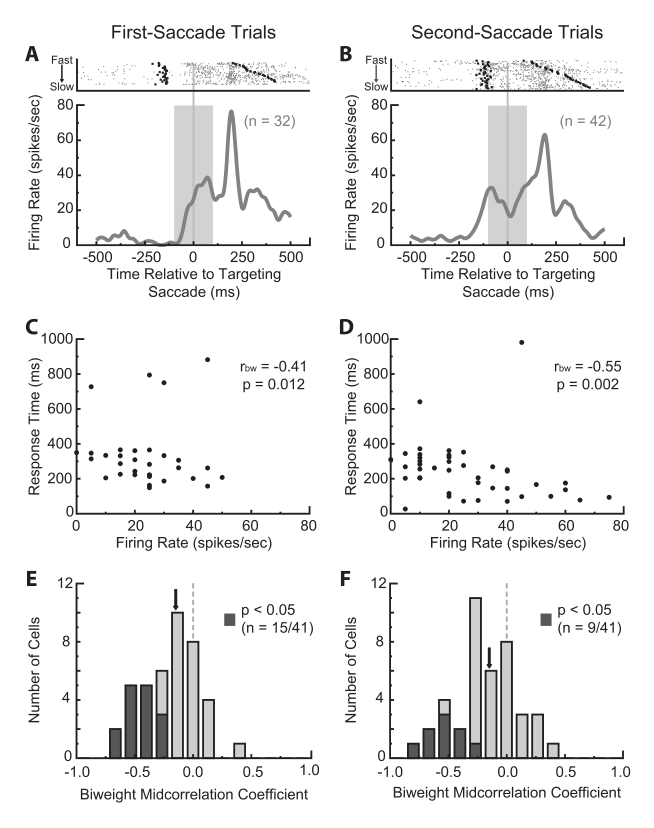
原文图注:Figure 5. Example data from one experimental session. Note that, for simplification, only one of eight possible target positions is shown for both first-saccade (A) and second-saccade (B) trials. Left panels denote the monkey's eye trace during swap trials from the onset of the search array until the button press. Circled letters denote the position of distractors (D) and the target (T). Spike density functions depicting the response of a neuron selective for the preswap target (same cell in Fig. 4A) are shown in the bottom right panels. Top right panels show the fixation duration of the fixation preceding the targeting saccade (black circle; see Fig. 2B, left). Data in all panels are sorted by the monkey's response during swap trials.
图示单个实验会话中的原始数据记录:左侧为扫视眼位轨迹,右上方展示定向扫视前的注视持续时间,右下方展示对应神经元的放电密度函数。数据均按最终行为选择分类排布,直观显示匹配换靶前目标的试次中具有更高的前扫视神经放电强度和更短的反应时间,对应主要结果第 2、3 条。
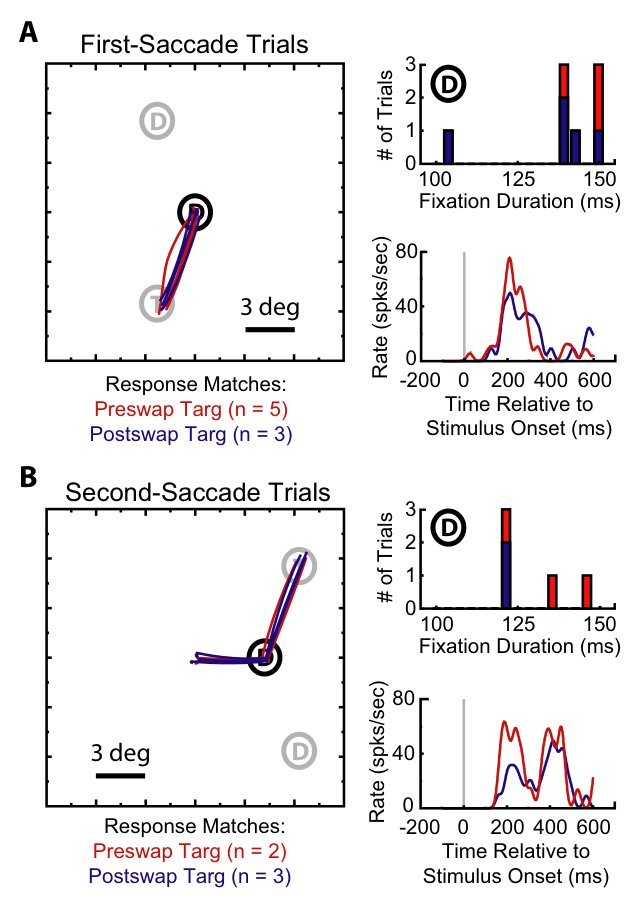
图 6 · 换靶试验的单细胞与群体 ROC 分析
原文图注:Figure 6. Swap trial analysis for first-saccade trials (A, C, E) and second-saccade trials (B, D, F) for an example neuron (A–D) and population (E, F). A, B, Rasters and spike density functions during swap trials in which the effective stimulus was the preswap target for an example neuron (same cell in Fig. 4A). Blue and red ticks denote spikes, and black ticks denote the beginning of the presaccadic fixation (left of 0) and time of manual response (right of 0). Activity is aligned to the onset of the targeting saccade. Note the presaccadic increase in activity, which was larger for trials in which the monkey's response matched the preswap target. ……(截断)
图 A、B 中神经活动对齐定向扫视启动时刻(0 点):扫视前放电逐渐爬升,且最终选择匹配换靶前目标的试次中放电水平显著更高。C、D 显示扫视前后 200 ms 分析时间窗内的放电率分布,代表性神经元的 ROC 面积分别为 0.81 与 0.78。E、F 为群体 ROC 面积直方图,合并后的总体 ROC 面积为 0.62 与 0.61(p<0.0005),构成了扫视前神经放电预测行为选择的核心证据,对应主要结果第 2 条。
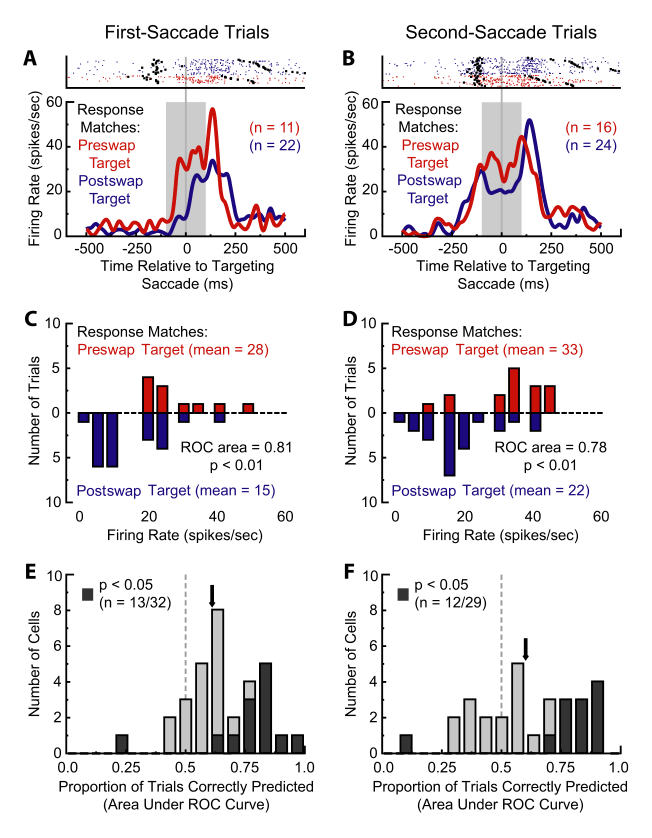
图 7 · 眼动变量在两种选择间的分布
原文图注:Figure 7. Distributions of presaccadic target eccentricity (A, B) and presaccadic fixation duration (C, D) across behavioral choice during swap trials. Upward and downward bars represent trials in which the monkey's response matched the preswap and postswap targets, respectively. Dark bars represent the subset of trials for which there was no significant difference across behavioral choice. For details, see Results.
直方图分别展示在两类行为选择下,定向扫视前的目标偏心率(A、B)与注视持续时间(C、D)的统计分布。虽然两类选择间偏心率与注视时长存在统计学差异,但绝对数值差异较小(偏心率差约 0.1°,时长差约 2 ms);深色柱指示通过筛选剔除离群值后参数差异不显著的数据子集,神经放电率在该子集上依然保留显著的预测力,对应主要结果第 3 条。
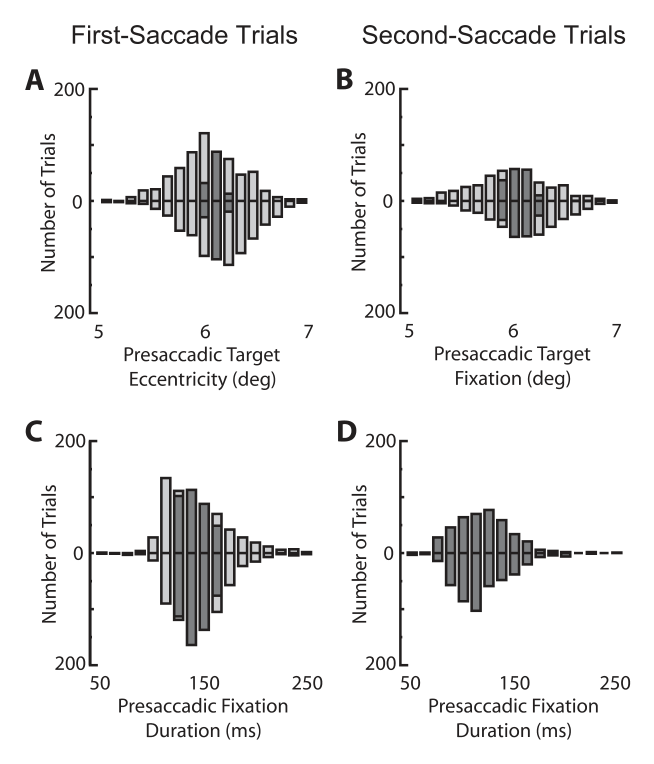
图 8 · 常规试验的放电率—反应时间关系
原文图注:Figure 8. Normal trial analysis for first-saccade trials (A, C, E) and second-saccade trials (B, D, F) for an example neuron (A–D) and population (E, F). A, B, Rasters and spike density functions during normal trials in which the effective stimulus was the target for an example neuron (same cell in Fig. 4A). Gray ticks denote spikes, and black ticks denote the beginning of the presaccadic fixation (left of 0) and response time (right of 0). Activity is aligned to the onset of the targeting saccade. There is a presaccadic increase in activity, followed by a transient peak after the saccade because the monkey fixated an effective stimulus (target) at this time. ……(截断)
图 A、B 为常规未换靶试验中按反应时间排序的光栅图与平均放电密度,显示较快反应试次伴随更强的前扫视神经活动。C、D 散点图显示代表性神经元在 200 ms 分析窗内的放电率与按键反应时间呈负相关(双权相关系数分别为 −0.41 与 −0.55);E、F 呈现群体神经元相关系数分布,合并相关系数为 −0.15(p<0.0002),证实了前扫视放电率对物体识别与执行时序的预测价值,对应主要结果第 4 条。
讨论
作者将研究发现置于两个理论背景中讨论:第一,在感觉决策的选择概率(choice probability)研究脉络中,背侧视觉通路(如 MT 区在运动方向判别任务中)已有较多定量数据,而腹侧物体识别通路的相关证据较为有限。本研究获得的群体选择概率在 0.60–0.62 区间,符合高阶联合皮层输出表征决策信息的理论预测。第二,相较于双稳态双眼竞争实验中感知交替的赢者通吃放大机制,本实验在刺激物理特征明确的自然搜索情境下获得了稳定的神经—行为预测;相较于既往自由眼动研究中可能存在的空间配置混淆,本研究通过严格的扫视轨迹约束与多元回归控制,分离了物体身份识别与低阶眼动几何参数。
在局限性方面,作者指出单个神经元记录获得的换靶试次数量相对有限,部分神经元单体未达统计显著与下颞叶采用大尺度神经群体编码客体身份的计算特性相符;此外,空间注意与定向扫视在任务执行过程中紧密伴随,虽然无效目标对照排除了弥散性唤醒的影响,但空间选择性注意与客体身份辨识在扫视前时段共享紧密的神经协调网络;最后,当前数据为相关性电生理证据,放电波动对知觉决策的直接因果性仍需结合局部皮层电刺激等干预方法进一步检验。
一句话总结
研究通过眼跳期间的目标替换范式与行为学分析,证实猕猴在自然视觉搜索中前部下颞叶神经元的放电涨落能够显著预测目标物体识别的选择决策与按键反应时间。