本篇综述探讨空间记忆如何表征自身运动轨迹而非仅编码静态环境地图这一核心问题。作者系统整合了三组实证证据:正电子发射断层扫描(PET)记录的记忆引导扫视序列、局灶性脑损伤患者在前庭记忆扫视任务中的表现,以及受试者在真实城市路线中的心理导航成像数据。据此,作者提出“拓扑运动记忆”(topokinetic memory)概念,用以区分以静态外部坐标为核心的传统“地形记忆”(topographic memory)。该理论将前庭通路输入、头方向细胞系统与海马—顶叶皮层回路整合进动态运动模拟框架,为后续人类复杂导航记忆研究奠定了概念基础。
研究背景
位置细胞和认知地图理论使空间记忆常被理解为静态地图:环境中的点、地标和空间关系被储存起来,需要时再读取。但日常导航不仅要知道“哪里是哪里”,还要记住自己曾经怎样转动眼睛、身体和脚步。扫视序列、被动旋转和步行路线都包含时间与运动过程,若研究只让被试回忆静态图片,就无法检验大脑是否也保存这些自身运动的信息。视觉空间记忆与运动记忆的区分,正是这篇文章要补足的地方。
这一问题还需要把不同感觉来源分开。记忆性扫视可以检验顶叶活动究竟来自扫视动作还是记忆要求;黑暗中的被动旋转则让旋转信息主要来自前庭而非视觉,可考察旋转幅度能否被保存并用扫视表达。真实城市路线又把问题推进到复杂行为:心理沿路行走与单纯回忆地标若激活不同结构,就能说明路线记忆不等于地标清单。顶叶、海马、前额叶和辅助眼区可能分别参与这些过程,不能用一张“空间记忆中心”概括。
Berthoz 的综述把三组研究串联起来,提出 topokinetic memory,即与自身运动相关的记忆,以区别于静态 topographic memory。记忆性扫视显示顶叶在复述序列时参与,而自发扫视不激活;前庭记忆任务显示旋转幅度可保留数分钟,并揭示前额叶、辅助眼区和前庭皮层的不同作用;真实路线研究则把海马与沿路运动联系起来。它为动态空间表征提供了框架,但各组样本和影像分辨率有限,海马内部具体亚区、左右侧差异及与地形记忆的关系仍需谨慎解释。
研究思路
作者论述的整体逻辑在于:空间记忆不仅包含静态异中心表征,还依赖对自身既往运动轨迹的神经模拟,因此实验范式须明确考察受试者对运动序列的提取。三组实验设计构成从基本眼动到复杂生态导航的递进链条:第一组以眼跳为运动模型,对比无记忆负荷的自定步调扫视与预习眼跳序列的黑暗复述,以此检验顶叶激活是否受运动工作记忆驱动;第二组引入前庭感觉输入,使受试者在完全黑暗中接受被动全身旋转,仅依靠半规管输入推算角位移并执行目标导向扫视,进而通过局灶性皮层损伤患者的行为损害定位必需回路;第三组在生态化陌生城市环境中让受试者步行学习长约 800 米的实际路线,随后在 PET 扫描中通过心理路线行进与静态地标表象任务的对比,分离与连续空间运动绑定的神经活动。
这条设计链背后还有两个支撑性论证。其一是解剖学:前庭信号除经顶岛前庭皮层(parietoinsular vestibular cortex, PIVC)上传外,还有第二条通路——前庭核经丘脑前部、乳头体、下托抵达海马,且途中接收来自顶叶的视觉环境信息,构成头方向细胞(head-direction cells)系统;这预言了前庭刺激应当能激活海马。其二是行为学:前庭缺损病人走直线无误差、走三角形或矩形路径却累积方向误差而距离估计完好,提示"路径整合"(path integration)中方向由前庭系统编码、距离可由运动与本体感觉系统编码——"integration"一词其实混用了三种可能过程(对整段轨迹的空间累加、对速度/加速度信号的时间积分、包括时程在内的多感觉整合),需要分别检验。
方法
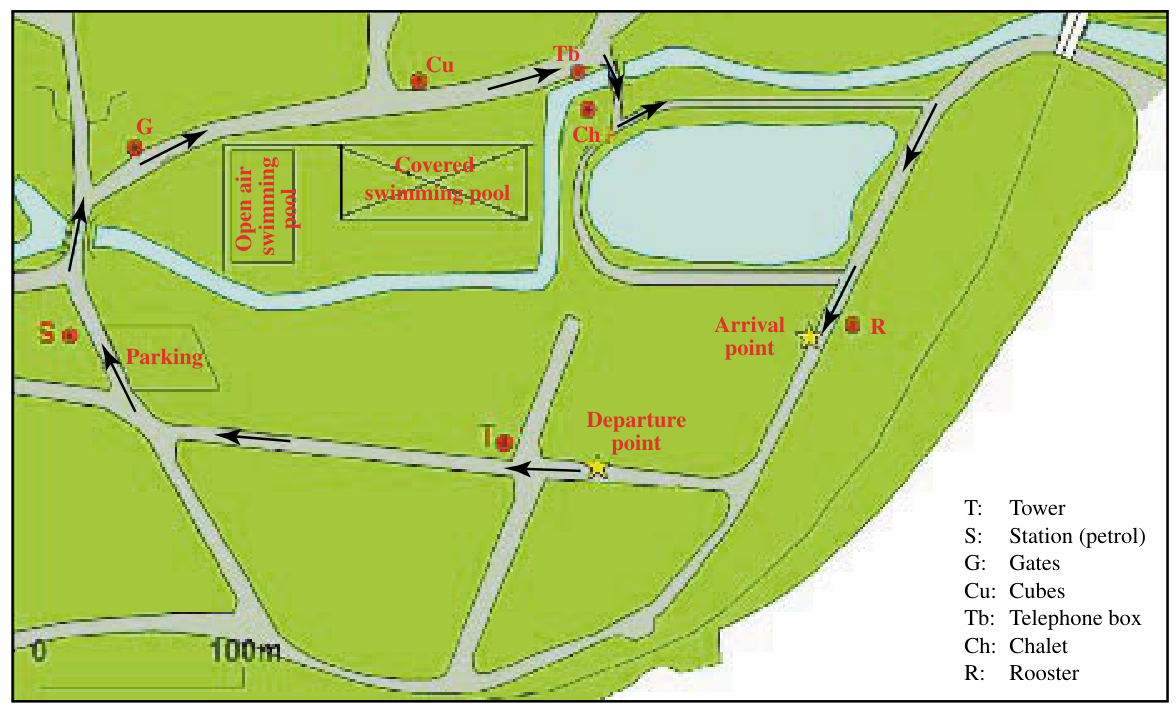
三组方法各有侧重。第一组 PET 实验中,被试在完全黑暗中执行三种条件:静息(REST)、自定步调的水平自发扫视(SAC)、以及复述数分钟前学过的五点亮光二极管序列(SEQ,目标位于原位点左右 0、5、10、15 度,序列展示五遍以供学习;因需回到中心,每个序列实际含六次扫视)。用水平眼电记录确认被试确实在做任务,标准 SPM 与 HMSD 方法分析局部脑血流(rCBF)。第二组的"前庭记忆 contingent 扫视"(vestibular memory contingent saccade, VMCS)任务步骤为:被试坐于转台上先注视一个地面固定(earth-fixed)目标,随后只注视一个头固定(head-fixed)目标以抑制前庭-眼反射(VOR),在黑暗中被被动旋转——此刻关于旋转的唯一信息来自水平半规管——停转约 2 秒后,要求被试在完全黑暗中向"记住的"地面固定目标做一次扫视(图 2 逐步展示了流程)。以 anticipate 率、潜伏期、方向错误、首次扫视准确度、黑暗中眼位稳定性与最终眼位为指标,应用于 24 名各种皮层局灶损伤的病人(分组:左/右额叶眼区 FEF、左/右前额叶皮层 PFC 即 Brodmann 46 区、左辅助眼区 SEF、左/右后顶叶 PPC、右顶颞皮层 PTC 即前庭皮层)与 18 名年龄匹配对照。第三组实验(Ghaem 等 1997):被试被带往完全陌生的城市环境(法国奥赛市),沿预设路线(分七段,每段以显眼地标标记:塔、加油站、电话亭、门、立方体、小屋、公鸡)睁眼行走三遍(前两遍由实验者引领,第三遍在监督下自行走),要求记住路线与七个地标;次日、PET 采集前 4–6 小时执行两个任务——MSR 任务(实验者报出两个地标名,被试在心理上沿路从一走到另一个,到达即按键,如此反复)与 VIL 任务(通过耳机听到地标名后在心理上保持对该地标的视觉表象)。心理行走时间与真实步行时间的对照用来验证被试确实在做任务。
此外还有两条辅助证据线:用冷灌注(左耳)与双耳双极 1 Hz、2–3.5 mA 正弦流(30 秒,诱导额状面钟摆样旋转错觉,为首次成功将电流刺激用于 fMRI)分别刺激前庭系统并做全脑 fMRI;以及术前对接受前庭手术的病人电刺激前庭神经记录诱发场电位,用以圈定短潜伏期上前庭加工涉及的皮层。
主要结果
- 记忆序列激活顶叶而自发扫视不激活:SAC 与想象扫视只激活额叶眼区(FEF)、辅助眼区(SEF)与扣带回中部,顶叶无激活;SEQ 减 SAC 后,出现双侧顶内沟深部激活并向外侧与内侧上顶叶皮层(上顶叶小回与楔前叶 precuneus)延伸,同时上额沟激活(与 6、8 区重叠但明确区别于 FEF)。这是人类顶内沟参与"从记忆内部产生的扫视"的首例证据——图 1。
- 前庭旋转信息可被储存并长期保留:VMCS 表明人能把被动头旋转的幅度与一次等幅反相的自主眼动扫视准确匹配;延迟实验(4 秒、1 分钟、5 分钟)显示旋转幅度信息可准确储存达 5 分钟,不过在长延迟下小于 20 度的小角度被高估(表现欠冲)——图 3。前庭刺激的 fMRI 则首次发现海马激活:冷灌注激活左侧颞顶交界(可能即 PIVC)、岛叶、前扣带回与海马回等,右侧较少;右耳冷灌注在 8 名被试中诱导同侧海马结构(含下托)激活。
- 损伤定位给出两个分离的网络:VMCS 任务中,双侧 PFC 组在所有指标上均有显著(多为双侧)异常;左 SEF 组首次扫视准确度与最终眼位受损;右顶颞皮层(前庭皮层)组明显受损——首次扫视准确度下降、方向错误增多、黑暗中眼位保持准确的时间缩短——而后顶叶(PPC)组仅右 PPC 有轻微的预期反应增多。结论是:PFC 负责储存扫视目标(可能以空间坐标编码,因其在视觉与前庭两种引导任务中都受损);SEF(而非 FEF)控制前庭来源扫视的准确度(视觉任务中模式相反);顶颞皮层(而非 PPC)参与前庭记忆引导的扫视(视觉任务中角色互换,由 PPC 承担)——图 4。两条网络仅 PFC 共用;海马本身未在 VMCS 病人中检验,但颞叶癫痫伴单侧海马萎缩者在黑暗中返回原位的任务上向病灶同侧表现出欠冲(Wiest 等 1996)。
- 真实路线的心理导航激活海马并留下"运动"特异成分:MSR(沿路心理行走)与真实步行时间强相关(训练期 r = 0.99, p = 0.0003;PET 期 r = 0.92, p = 0.024),确认任务有效性。对静息:MSR 双侧激活背外侧皮层、后部海马区、后扣带回、辅助运动区、右侧中部海马、左侧楔前叶、中枕回、梭状回与外侧前运动区;VIL(地标视觉回忆)激活双侧中部海马区、左下颞回、左后部海马区、中央前回与右后扣带回。MSR 减 VIL 只剩左侧海马、楔前叶与岛叶——图 5。这是海马首次被证明在"导航"类空间任务中激活(Aguirre、Maguire、Ghaem 三篇同时报道),且与"右侧海马在空间缺损中占优"的损伤文献一致。
图注解读
图 1 · 记忆性扫视序列的 PET 激活
原文图注:Figure 1. Brain areas activated during the reproduction of a previously learned sequence of saccades. PET scan recordings of the brain areas activated during the execution of saccades in total darkness (see text). Three conditions are compared: the execution of self-paced saccades without any memory task (SAC), the execution of previously learned sequences of saccades to remembered visual targets (SEQ), and rest (REST). Statistical parametric maps are shown for three comparisons: (a) SEQ versus REST; (b) SAC versus REST; (c) SEQ versus SAC. Voxels significant at the given threshold of p<0.001 (Z score>3.09), uncorrected for multiple comparisons, are displaced on single sagittal, coronal, and axial projections of the brain. The spatial location of each activated area can be established by comparing its position in the three views. AC–PC, anterior commissure–posterior commissure; R, right. (From Petit et al. 1996a.)
这张图把三个统计参数图按(a)SEQ 减静息、(b)SAC 减静息、(c)SEQ 减 SAC 并排在矢状、冠状、轴位三个投影上,阈值 p<0.001(Z>3.09,未做多重比较校正)。读图的关键在(b)与(c)的对比:(b)中只有额叶眼区、辅助眼区与扣带回亮起,顶叶是暗的;(c)中顶内沟深部与楔前叶、上额沟才出现激活簇——单看(a)会被"SEQ 激活了顶叶"的表象误导,减去 SAC 才能看出这部分激活专属于记忆成分。它支撑主要结果第 1 条:顶叶参与的是记忆性扫视序列,而非扫视运动本身。
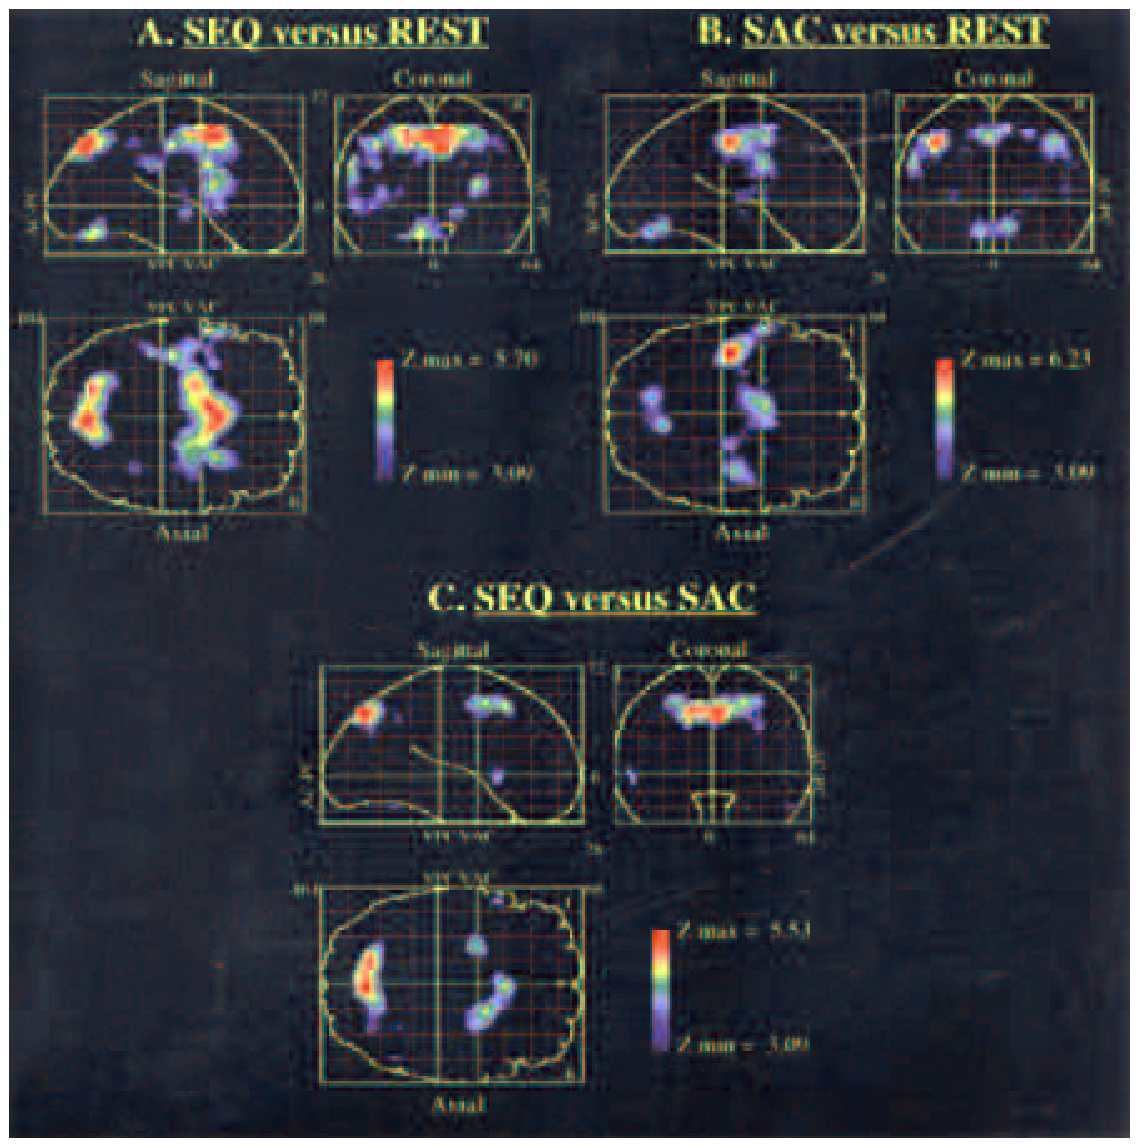
图 2 · 前庭记忆 contingent 扫视任务流程
原文图注:Figure 2. The memory contingent saccade task. (a) The subject, seated on a turntable, views two targets: a head-fixed and an earth-fixed target. (b) The subject is passively rotated in darkness, only viewing the head-fixed target, and is asked to remember the location of the earth-fixed target. The only information available to the subject about the rotation is derived from the horizontal semicircular canal. (c) The subject is still and views the head-fixed target for a few seconds to let the vestibular effects decrease. (d) The head-fixed target is turned off and the subject has to remember the location of the previously seen earth-fixed target in total darkness. (e) The subject makes a saccade to the remembered target in total darkness. Then the light is turned on and the subject makes a corrective saccade if the saccade in darkness was not of the appropriate amplitude. (f) The turntable is returned to the initial position for control.
六个小格按时序展示任务全貌:(a) 两个目标同现;(b) 黑暗中被动旋转,唯一信息源是水平半规管;(c) 停转数秒让前庭后效衰减;(d) 关掉头固定目标、全黑中保持记忆;(e) 向记忆目标扫视、开灯后如有偏差做矫正扫视(矫正扫视的大小即为误差的直接读数);(f) 转台回零作对照。这张图是理解整个第二组证据的钥匙——它把"旋转"与"反应"在时间上分开、又用头固定目标抑制 VOR,从而保证被测到的扫视幅度确实来自被储存的前庭信息而非在线感觉输入。
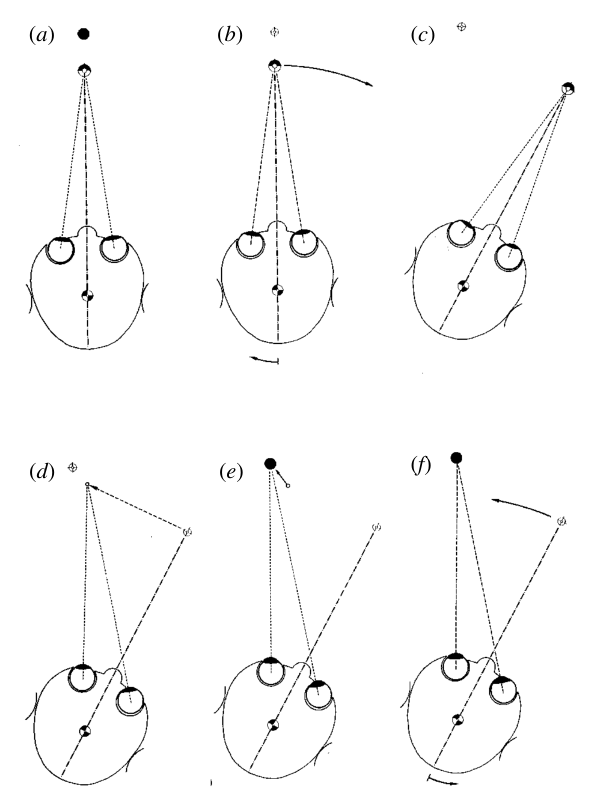
图 3 · 延迟下的前庭记忆保持
原文图注:Figure 3. The memory contingent saccade can be executed with a delay. Three regression lines between the amplitude of the vestibular memory contingent eye saccade (E) and head rotation (H) when the subject was asked to wait with a delay of 4 s, 1 min and 5 min, respectively. In this form the task becomes a form of delay task well suited to test spatial memory of a passive whole-body rotation. (From Israel et al. 1991.)
横轴是被动头旋转幅度 H(度),纵轴是相应扫视幅度 E(度),三条回归线对应延迟 4 秒(r² = 0.85)、1 分钟(r² = 0.69)与 5 分钟(r² = 0.68),n = 40。理想情况是斜率 1 的对角线:线越贴近对角线、相关越高,说明储存的旋转信息越准。三条线都高度线性且斜率接近 1,只是长延迟下相关略降、小角度出现欠冲。它支撑主要结果第 2 条:前庭旋转信息不是转瞬即逝的感觉残留,而是可保持数分钟的延迟任务式记忆。
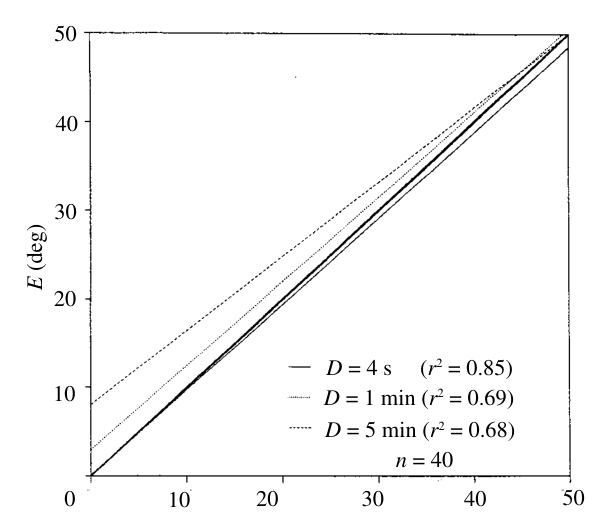
图 4 · 病变位置与任务缺损的对应
原文图注:Figure 4. Location of the lesions of patients who were tested with the vestibular memory contingent saccade task. PPC, posterior parietal cortex; FEF, frontal eye field; SEF, supplementary eye field; PFC, prefrontal cortex; VC, vestibular cortex. Deficits in the task were mainly found in patients with lesions of the PFC, VC, or SEF. cs, ips, sfs, pcs, ls, sts indicate respectively the central, intraparietal, syfrian, precentral, lateral and superior temporal sulci. (From Israel et al. 1995.)
图在脑表面示意图上标注了各组病人的病变覆盖范围:后顶叶(PPC)、额叶眼区(FEF)、辅助眼区(SEF)、前额叶(PFC)与前庭皮层(VC,即顶颞皮层),并标出中央沟、顶内沟、外侧裂等脑沟作参照。图注直接给出结论:缺损主要见于 PFC、VC 或 SEF 病变者。这正是主要结果第 3 条的空间注脚——PPC 病人基本不受影响,而前庭皮层、辅助眼区与前额叶才是这条"非视网膜坐标"扫视网络的必需节点。
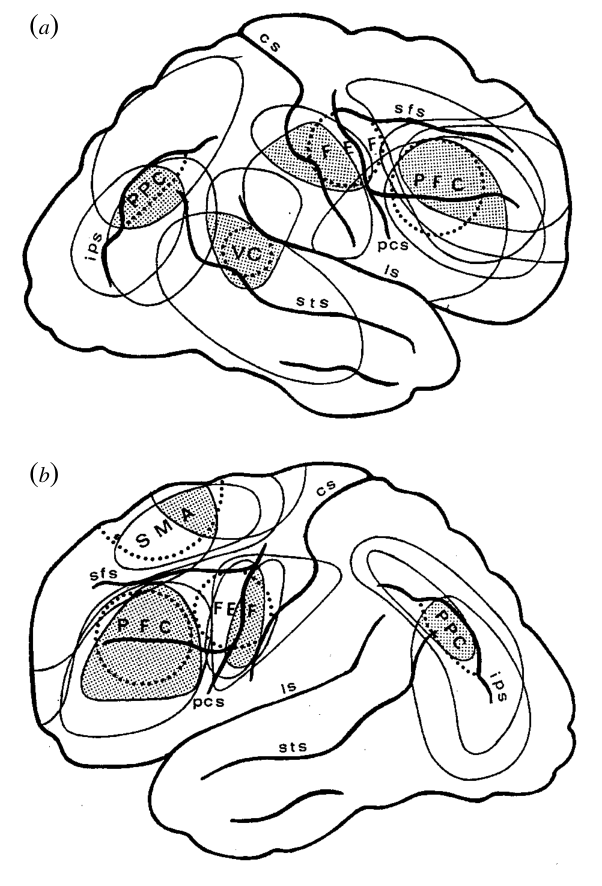
图 5 · 奥赛市步行路线图
原文图注:Figure 5. The map of the trajectory of the subjects in the city of Orsay (see text for further details). Subjects were conducted to the departure point and walked with eyes open along the path, which was divided into seven segments. Each of the segments was marked by a prominent landmark, which the subjects were asked to remember. When laying in the PET scan they had to remember their walk. This procedure was aimed at giving them a 'route' type of memory of the path.
图上是奥赛市真实街区里被试的实际轨迹:从出发点(Parking)到抵达点,路线分七段,各段由显眼地标标记——塔(T)、加油站(S)、门(G)、立方体(Cu)、电话亭(Tb)、小屋(Ch)、公鸡(R)。读图时注意这段路包含多个转弯与直线段,这正是 MSR 任务中心理行走时间的来源;七个地标则是 VIL 任务与 MSR 任务共用的记忆锚点。它支撑主要结果第 4 条的方法学前提:被试先在真实环境中习得"路线式"(route type)记忆,PET 中再被提取——真实步行时间与心理行走时间的高相关即由此设计保证。
讨论
作者的收束方式不是逐图总结,而是把三组证据提炼成一个概念提案:顶叶与顶岛皮层、岛叶、扣带回、海马结构、背外侧额叶共同构成加工"自身产生的眼动或行走运动"的回路,这类记忆被他命名为"topokinetic memory"(拓扑运动记忆)。它可能与"topographic memory"(地形记忆)的地图式、静态成分部分重叠、部分分离——损伤文献中"认得出地标却仍在熟悉环境迷路""能描述路线却丧失地标的方向信息"这类双重分离,正暗示两种记忆可以解绑。作者也对定位格外谨慎:PET 分辨率不足以界定海马结构内被激活的具体亚区;左海马在减法后独存与"左海马主管言语材料"的通行看法相悖,但他提出一种解释——两个任务的指导语都是言语性的、可能在减法中抵消,剩下的左海马激活或对应"视空间信息与身体位置信息的结合";岛叶激活则可能与记住身体的转弯有关(Bonda 等 1995 的身体心理重定位任务也激活岛叶)。结论部分他还留下一个批评:空间记忆研究应要求被试回忆先前产生过的运动,而不是建立在"脑本质上是处理视觉信息而非首先处理涉及自身运动的行动"这一错误观念上的人工任务。
一句话总结
该综述将空间记忆的理论范式由静态认知地图拓展至动态可执行的轨迹模拟。通过结合眼动序列复述、前庭角位移记忆与生态化心理导航,文章提出海马—顶叶网络不仅支持外部空间坐标的静态表征,更参与了自身运动轨迹的时间性内部重构。