这篇经典的 Logothetis–Pauls–Poggio 论文让猕猴学会辨认一批对动物毫无先验意义的计算机生成三维物体,然后在 IT 单细胞上找到了只对特定视角有响应的神经元——为"以观察者为中心的视角样板"式识别表征提供了最早的直接神经证据。它值得读,因为把心理物理学的视角依赖识别、插值网络理论和 IT 电生理三条线拧成了一股:复杂构型选择性不是"生物刺激专用"的,而是可以被训练出来、分配到视角上的。
研究背景
物体识别可以看成把物体的视网膜图像与记忆中的表征做匹配的过程。难点在于不同观察角度、光照和情境会产生完全不同的视网膜图像,而熟悉物体却总能被认出来——这种知觉恒常性(perceptual object constancy)如何实现?当时的理论分两大阵营:物体中心(object-centered)理论假定识别基于视角不变的三维体积基元或结构描述(Marr、Biederman 的识别按成分理论、Ullman 的对齐理论),坐标系统定义在被观察物体上;观察者中心(viewer-centered)理论则把三维物体建模为一组熟悉的二维视角或"面相"(aspects),识别就是把图像特征与这组存储视角做匹配。物体中心理论能正确预测熟悉物体的视角无关识别,却解释不了对某些新颖物体的识别表现;观察者中心模型能解释所有识别任务的人类表现,却因"要存下每个物体的所有可辨别视角"而被认为不现实——直到计算机仿真显示,一个简单的人工网络原则上可以通过在少量存储视角之间插值来识别三维物体(Poggio & Edelman, 1990):每个隐层单元存储一个熟悉视角,对输入计算与模板视角的欧氏距离并套上高斯函数,活动随旋转角增大而渐降,整个网络的输出为各单元加权和。心理物理证据也站在这一边:人类对某些物体类的识别表现可以用"在熟悉视角间插值"来预测(Büthoff & Edelman, 1992),猴子心理物理实验同样显示——只训一个视角时对新视角的表现随偏离角增大而单调变差;两个熟悉视角相距约 90° 可插值、相距 160° 则形成两个独立的泛化区;训 3–5 个视角通常足以让识别绕单轴视角无关。
另一条线索来自 IT 神经元:它们对复杂二维模式(面孔、手、身体部位)有构型选择性,对面孔的详细研究(上颞沟)甚至发现每类细胞宽调谐于头的某一个视角(全脸或侧脸)。问题是:这种复杂构型选择性是否只属于"生物有意义"的物体?临床上确实存在对生物类刺激的选择性识别障碍(Farah et al., 1991),这让人怀疑面孔/身体选择性是特化的神经群体。或者反过来——对任何"无法靠部件分解来识别"的物体,只要经过大量暴露,IT 都会长出这种构型选择性?当时没有人用对猴子毫无先验意义的新颖三维物体系统检验过这一点,这就是本研究的位置。
研究思路
作者的策略是"先行为、后电生理,以行为为神经解释的锚"。先用足够长的训练让两只猴子在匹配任务中学会辨认两类全新物体:Gouraud 着色的线状(wire-like)物体和变形虫状(amoeboid,又称球形体 spheroidal)物体,且类内目标-干扰相似度从"随机参数生成"逐步提高到"在目标参数上加噪声";训练泛化到平移、缩放和朝向变化,最终要求猴子对目标的任意视角命中率达 95% 以上、对所有干扰物虚警率低于 5%。然后在前 IT 上胞外记录单细胞,系统呈现目标物体的多视角(沿 Y、X 或两条斜轴旋转 ±10°–180°)和大量同类或异类干扰物。逻辑上有三重对照:一是同一类内的 60–120 个干扰物——它们共享很多简单特征(朝向、转角、端点),如果细胞只是对某个简单特征放电,干扰物必然同时激活它;二是几何图形等简单刺激;三是"动物行为上认不出的视角是否也没有神经响应"这条正相关检验。在此基础上用高斯函数拟合视角调谐曲线,以两个标准差内的目标视角响应是否显著高于一切干扰物作为"视角选择性"的判据。最后再问:这些视角调谐细胞对图像的仿射变换(缩放、平移、像平面内旋转)是否保持不变——即"模糊样板"上的恒常性有多宽。
方法
被试为两只幼年恒河猴(7–9 kg),做过无菌手术埋置头部固定柱和巩膜搜索线圈(scleral search coil,眼动以 200 Hz 采样);记录在训完另一批准备好的记录室后进行。刺激呈现在距动物 97 cm 的显示器上。线状物体在三维空间中选定顶点(约束线段不相交、相邻段间转角不过锐、不同线间转动惯量差异限在 10% 以内),由覆盖假想圆管表面的矩形面片生成;球形体物体由递归细分的三角网格逼近球体,随机选点向外拉伸生成突起(负号对应凹坑),以突起的数量、符号、大小、密度和标准差刻画并据此调节相似度。训练流程:先在大量干扰物中识别目标的零视角(zero view,训练视角),再绕单轴做逐渐增大的旋转训练,学会在零视角 ±90° 内任意视角识别后换新物体;训练期每次反应都有反馈,心理物理数据采集期则不给任何反馈;强化从每次正确给果汁过渡到变比率、最后每连续 10 次正确才给。平均 4 个月学会泛化到一类内的不同物体,约 6 个月才能对任意新物体做识别任务。
电生理记录位于前中颞沟(AMTS)上岸,估计在 Horsley–Clark 零点前 15–21 mm(因两只猴还要继续用于实验,未做组织学重建,位点由立体定位坐标、灰白质转变、X 光片和同体型猴的 MRI 综合估计);电极用 2–3 MΩ 铂铱丝,经引导管在约 10×10 mm 皮层区域内取位。行为任务有两种(图 1):简单注视任务(注视蓝点 10–15 s,按杆报告蓝变红或蓝变绿),用于在屏幕任意位置呈现刺激测细胞反应;识别任务(图 1b)则以黄色注视点开始,学习相呈现目标某视角 2–4 s 并以 0.67 Hz、±15° 振荡以给出三维结构信息,随后测试相最多 10 个连续试次,每试次呈现目标或干扰物的静态视角 500–800 ms,猴子有 1500 ms 时间反应——右杆报告目标、左杆报告干扰,典型反应时低于 1000 ms;每时段测 30 个间隔 10° 的目标视角和 60–120 个干扰物,共 60 个约 25 s 的观察期。统计上用非参数 Walsh 检验(两个相关样本,单尾,α=0.011,n=10 次呈现),其检验效能约为 α=0.05 的参数 t 检验的 98%;对 3 个视角不变细胞的判据是"最差视角的响应仍显著高于最佳干扰物(α=0.05)"。
主要结果
-
视角选择性普遍可训出。共记录 970 个 IT 细胞:82%(796/970)对所用刺激有视觉反应,18% 不能被驱动;1.6%(13/796)对刺激呈抑制反应(3 个对包括注视点在内的一切视觉刺激完全停止放电);21.2%(169/796)对线状物体类优先响应,7.3%(58/796)只对变形虫类响应,0.37%(3/796)对特定物体任意视角都响应。在反应性细胞中,11.6%(93/796)对某个已知目标物体的视角子集选择性放电、对干扰物放电很少或不放;按"最佳视角 ±2 个标准差内的目标视角响应显著高于任何干扰物"的判据,61 个(7.66%)细胞被确认为绕一个或两个视角调谐。示例细胞(图 2)对目标一个视角放电最强,偏离该视角响应渐降,泛化场约 ±36°;对 60 个干扰物中的 20 个(图 2b)几乎没有响应——尽管干扰物 18、25、44、49、50 也含有目标零视角上那个显眼的倒 "V" 特征(图中圈出),排除了"简单特征检测器"解释。球形体上结果同样成立(图 3):示例细胞最佳视角在零视角旁 72° 处,响应视角共享一个"脸样"区域(两个凹坑加一个突起),但干扰物 12、14 含有类似区域却完全不激活该细胞。
-
调谐宽度约 ±29°,且不受学习相振荡的影响。拟合高斯的标准差(即调谐宽度)平均为线状 28.87°、变形虫 29.12°。三条证据表明学习相的 ±15°、0.67 Hz 振荡运动没有造成调谐加宽:学习相只给静态视角时调谐不变;绕垂直轴或其他任何轴的调谐宽度相同(尽管振荡只发生在垂直轴);绕任意视角的调谐与绕训练视角的调谐几乎一样(图 5a、b 对比)。
-
同一物体的不同视角由不同细胞覆盖,少数细胞绕两个视角调谐,极少数视角无关。5/61(8.1%)的视角选择性细胞对相隔 180° 的两个"拟镜像对称"视角放电最强(图 4b)——这类线状物体恰因偶然的最小自遮挡而使零视角与 180° 视角呈镜像对称,猴子的行为表现也呈同样的双峰模式。对训练中大量使用的 5 个(行为已达视角无关的)物体,找到多个分别调谐于同一物体不同视角的细胞(图 5a–d,四个单元 459、461、520、550 均来自动物 S5396);另有个别细胞对已知物体的所有目标视角响应相当、对全部 120 个干扰物显著更弱(图 5e)——视角无关响应。仿射变换方面:61 个视角选择性细胞中 9 个被系统测试,反应对缩放不变(图 6,张角 1°–6° 反应量相同)、对小于 2° 的平移不变、随偏心距增大迅速衰减(图 7,同一细胞在 7.5° 偏心处除短暂的起始爆发外几乎回到基线);图 8 的细胞则对 1.9°–5.6° 的大小变化和 3.15° 偏心内的位置变化都不变(对最佳视角响应是最佳干扰物的 3.5 倍,偏心呈现的目标响应仍至少是中央凹干扰物的 2 倍);9 个细胞中 6 个只对缩放不变、3 个对缩放和位置都不变。整体上位置不变性的谱很宽:从被小于 2° 的平移就明显削弱,到 7.5° 偏心仍基本不变。
-
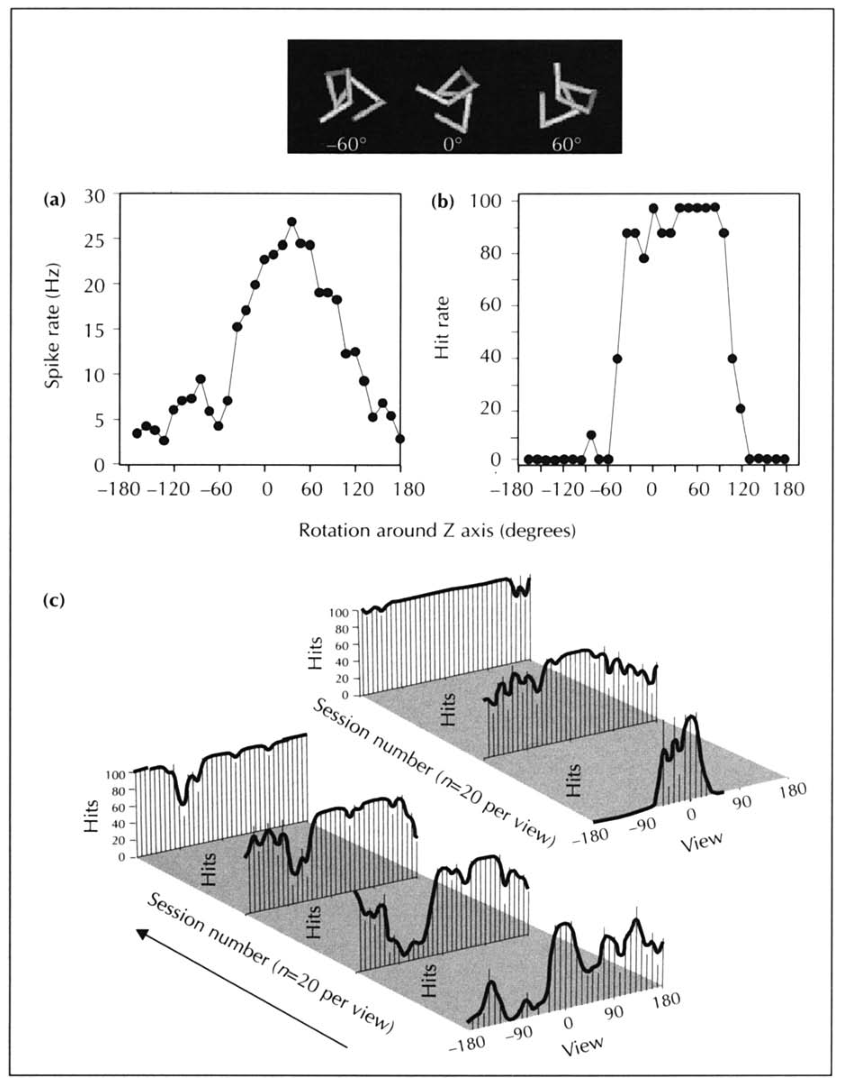
像平面旋转:神经与行为同步地朝向依赖,但行为会自发改善。11 个细胞做了像平面旋转测试,73%(8/11)的响应随朝向变化(图 9a),只有 1 个对像平面旋转视角无关;测试初期猴子的行为同样朝向依赖(图 9b),且无论神经还是行为的泛化场都比绕深度旋转时更宽。有趣的是,在完全不给正确性反馈的情况下,猴子对像平面旋转的识别在几个测试时段内就迅速改善到视角无关(图 9c);与此形成鲜明对比,绕深度旋转的视角依赖表现历经 15 个时段几乎不变。
-
主要结果第5条标题类别响应构成与训练侧重呈描述性联系,一般熟悉感或唤醒解释受到限制。正文动物间结果与相对训练侧重呈描述性一致;即使行为已达到视角无关,多数相关单元仍只对部分视角选择性响应,这使一般熟悉感或整体唤醒成为较不可能的解释,但研究没有通过专门操纵将其排除。两只猴的训练侧重不同:S5396 以线状物体为主(682,000/756,600 次试验,125 个不同线状物体,能从任意视角识别 34 个线状和 2 个变形虫物体),B63A 两者兼训(715,200/1,154,400 次为线状,能识别 35 个线状和 8 个变形虫物体);结果线状优先响应细胞的比例 S5396 为 78.6%(133/169)、B63A 为 21.4%,变形虫优先响应细胞的比例分别为 32.7%(19/58)和 67.3%(39/58)——两只猴的类别响应单元构成与各自相对训练侧重呈描述性一致;由于只有两只动物,该关系缺乏动物水平的统计支持,也不能排除个体差异。保留原文数字时注明:133/169、19/58等表示某只猴贡献的单元占两只猴合并后该类别响应单元总数的比例,并非该猴全部记录单元中的比例。同时,大多数细胞在动物识别本已视角无关的物体上仍只对视角子集响应,说明响应反映的是习得的视角表征而非泛化的熟悉感。
图注解读
图 1 · 两种行为任务
原文图注:Fig. 1. (a) Fixation task. The monkey fixated on a small blue spot for a period of 10-15 seconds, and responded to color changes by pressing the right lever for a blue-to-red and the left lever for a blue-to-green change. Cell responses to different patterns could be examined by presenting the stimuli anywhere on the screen. (b) Recognition task (see text).
(a) 为简单注视任务:注视蓝点 10–15 s,蓝变红按右杆、蓝变绿按左杆,刺激可以投在屏幕任意位置——这是测感受野、缩放和平移不变性的工作台;(b) 为识别任务的时间线:学习相给振荡的目标视角,测试相连续呈现目标或干扰视角、按杆二选一。读图要点:两种任务把"测细胞"和"测行为"分开又衔接——识别任务保证记录时动物真的在按物体身份行事,注视任务提供刺激参数的精细控制,是全文实验设计的骨架。
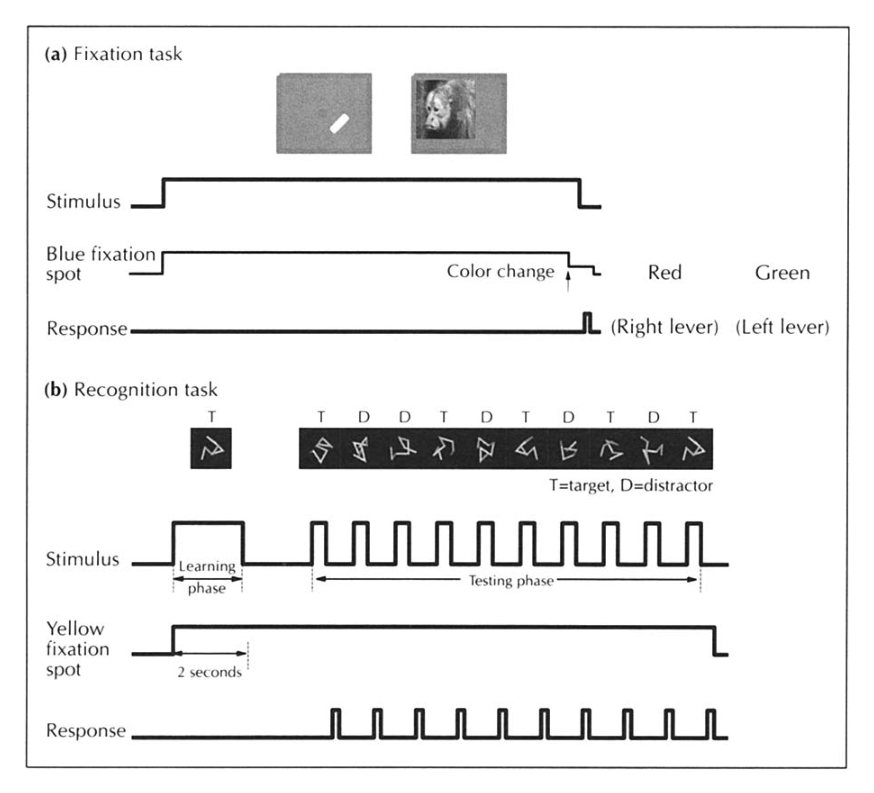
图 2 · 线状物体的视角调谐细胞
原文图注:Fig. 2. View-selective response of an IT neuron to a wire-like object. Peristimulus histograms (PSTHs) show the activity of a view-selec-tive neuron when (a) the target or (b) distractors were presented. The ordinate and abscissa, labeled in (a), are the same for both sets of histograms. The insets show the target views and the distractors. Each distractor view was of a different object. Both targets and distrac-tors were of the same size - apparent size differences are merely the result of scaling the drawings. The boxed plot is the zero view, presented in the learning phase. Note that the activity of the neuron for a given target view is well above that for distractors up to ± 360 from the preferred view, defining the generalization field of the neuron. The dashed circles in (a) (00 view) and in (b) (distractors 18, 25, 44, 49, 50) serve to highlight one of the features, an inverted 'V', which all of these images have in common (see text).
(a) 是该细胞对目标物体各视角(每 10° 一个,框出的是学习相呈现的零视角)的 PSTH,(b) 是对 60 个干扰物中 20 个的 PSTH;两栏共用坐标(纵轴为放电率、横轴为时间),小图给出对应视角的图像。读图要点有二:一是响应在最佳视角处达到峰值、随偏离角渐降,泛化到约 ±36°——这就是"模糊样板"的直观形状;二是干扰物 18、25、44、49、50 与零视角共享那个倒 "V" 特征(虚线圆圈标出)却几乎不引起放电,加上响应视角高于一切干扰物,共同支撑结果第 1 条"构型而非简单特征"的结论。
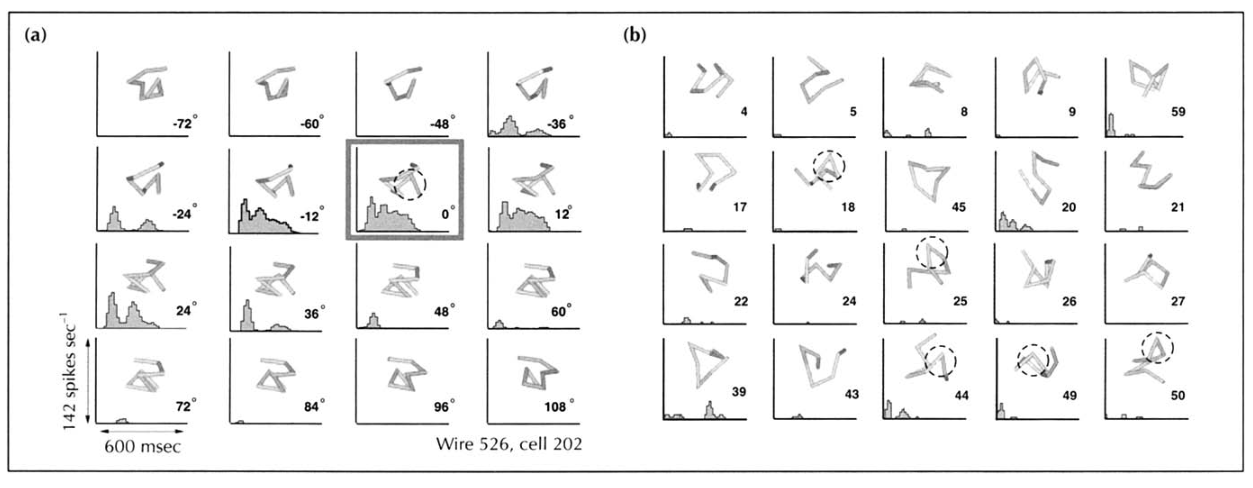
图 3 · 球形体物体的视角调谐细胞
原文图注:Fig. 3. View-selective response of a neuron for a spheroidal object. (Conventions as in Fig. 2.)
坐标约定与图 2 相同,只是物体换成带突起和凹坑的球形体。该细胞最佳视角是零视角旁 72° 的那一个,响应随偏离双向衰减;引发显著响应的各视角共享一个含两个凹坑加一个突起的"脸样"区域(72° 视角处圈出),但含类似区域的干扰物 12 和 14 完全不激活细胞。读图要点:这张图把结果第 1 条从线状物体推广到第二类物体——视角选择性不是线状材料的偶然属性,且"共享局部区域不足以解释响应"再次排除了简单特征解释。
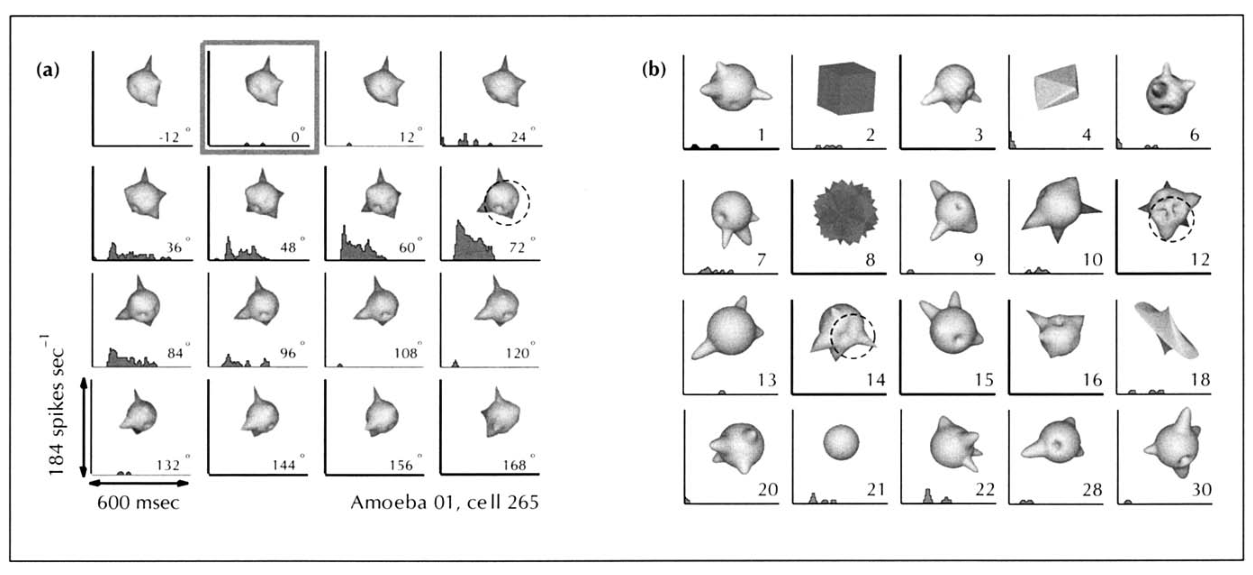
图 4 · 全深度旋转的三维响应面与拟镜像双峰调谐
原文图注:Fig. 4. (a) Response of a view-selective neuron to rotations around the preferred view along four axes. The z dimension of the plot is the spike rate, and the x and y dimensions show the degrees of rotation of the target object around either or both of the X or Y axes, respectively. The volume was generated by testing the cell's response for rotations out to ± 60 around the X and Y axes as well as along the two diagonals. The magnitude of response declined by approximately the same extent for rotations away from 0° along all of the axes tested. The activity of the neuron for the 60 distractors is shown in the inset box. Each distractor was a view of a different wire object. (b) Response of a neuron selective for pseudo-mirror-symmetric views, 180° apart, of a wire-like object. The filled circles are the mean spike rates for target views around one axis of rotation. The black line is the view-tuning curve obtained by 'distance-weighted least squares' (DWLS) smoothing. The two inset images depict the -120 and 60 views, around both of which the neuron showed view-selective tuning. The activity of the neuron for the 60 different distractor objects used during testing is shown in the inset box.
(a) 是三维响应面:z 为放电率,x、y 为绕 X、Y 轴(及两条对角轴)的旋转角,测试到 ±60°;响应面呈以 0° 视角为峰的近似圆丘——沿所有测试轴的衰减幅度几乎相同,说明泛化场在视角空间里大致各向同性;(b) 是另一种调谐:实心圆为绕单轴各视角的平均放电率,黑线为距离加权最小二乘(DWLS)平滑的调谐曲线,峰出现在相隔 180° 的 -120° 和 60° 两个视角上(小图)。读图要点:(a) 支撑"调谐宽度不受振荡运动影响"和各轴等宽的论断;(b) 支撑结果第 3 条中的拟镜像双峰——这种双峰与行为的反射不变性表现一一对应。
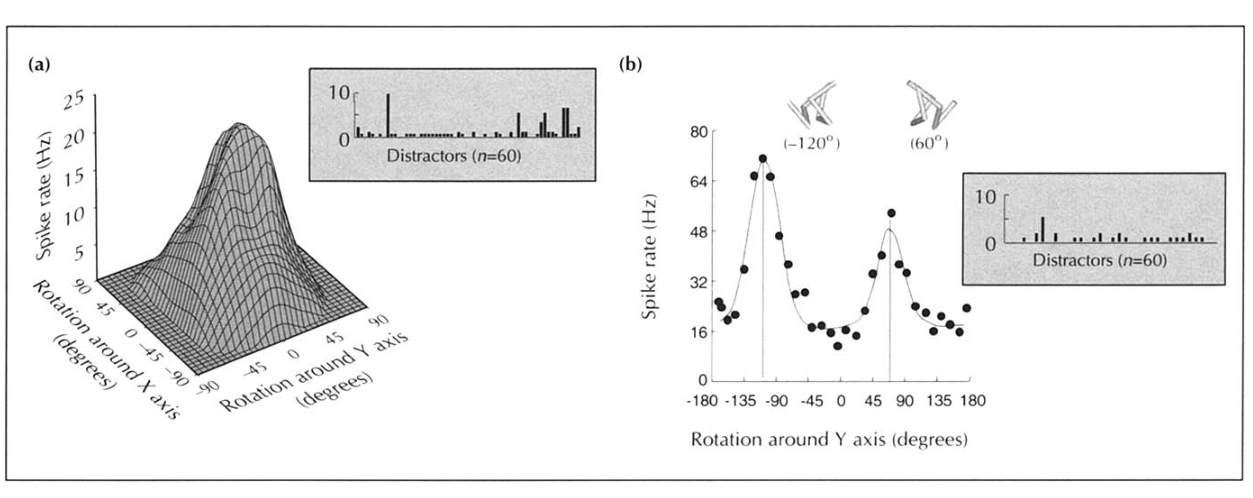
图 5 · 同一物体的多视角细胞群与视角无关细胞
原文图注:Fig. 5. (a-d). View-selective responses of four different neurons (459, 461, 520 and 550) tuned to different views of the same wire object. All data come from the same animal (S5396). The filled circles are the mean spike rates (n=10), and the thin black lines DWLS-smoothed view-tuning curves. The thick gray lines are a non-linear approximation (using the Quasi-Newton proce-dure) of the data with the function R(O)=N= 1 ciexp(- 11 -e, 11 2/2r)+Ro; where ci is the scaling factor for the Gaussian curve, is the test view, is the template view, R is an offset that represents the background activity of the cell, ar is the standard deviation of the Gaussian curve and N=1 or 2. (e) An example of a neuron showing a view-invariant response to a known wire object. The behavioral perfor-mance of the monkey for this object was view-independent because it had been used as a training object (see text). The insets in (a) through (e) show the average activity of the neuron to each of the 60 or 120 different distractors used during testing.
(a)–(d) 是同一只猴(S5396)对同一个线状物体的四个细胞:实心圆为各视角平均放电率(n=10),细黑线为 DWLS 平滑的调谐曲线,粗灰线是用拟牛顿法拟合的(单或双)高斯函数 R(θ)=Σ cᵢ·exp(-‖θ-θᵢ‖²/2σ²)+R₀(cᵢ 为幅度、θᵢ 为模板视角、σ 为调谐宽度、R₀ 为背景活动)。四个细胞的峰分别落在同一物体的不同视角上——"多细胞分视角覆盖同一物体"的直接展示;(e) 则是对照极值:一个对所有目标视角响应几乎相同的视角无关细胞,对 120 个干扰物都显著更弱。读图要点:a–d 支撑结果第 3 条的核心主张——一个物体由一组各管一个视角邻域的细胞 ensemble 编码;e 说明极少数单元可能已汇聚出物体中心式的表征,对应结论部分的收敛猜想。
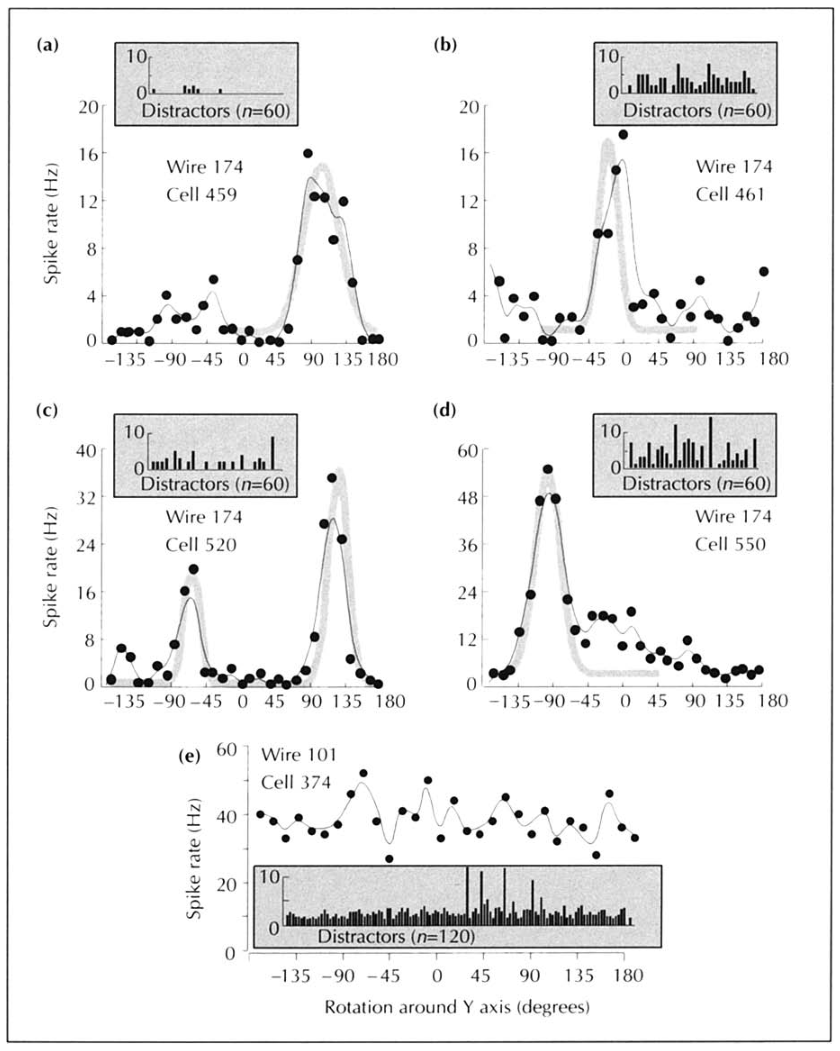
图 6 · 对物体大小变化的不变性
原文图注:Fig. 6. Response-invariance of a view-tuned neuron to changes in object size. The monkey was performing a simple fixation task in which each trial lasted 2 500 msec. PSTHs show the activity of the neuron over the course of a trial. The ordinate is the mean spike rate and the abscissa is time. The animal fixated without a stimulus for the first 500 msec, at which point a stimulus would appear (indicated by the dashed line), and the animal continued to fixate for 2 000 msec, responding to a change in fixation spot color at the end of the trial. Each stimulus is shown to the side of its respective histogram. The circled stimulus is the one used for testing view selectivity. The relative size of each stimulus with respect to the standard object is represented by x.
注视任务中每个试次 2500 ms:前 500 ms 只注视注视点(虚线为刺激出现时刻),之后持续注视 2000 ms,试次末按注视点颜色变化反应。每个 PSTH 旁标出对应尺寸的刺激(圆圈者是测视角选择性用的标准物体,x 为相对标准物体的尺寸倍数)。读图要点:从 1° 到 6° 张角,PSTH 峰值与形状几乎不变——而且前 500 ms 只有注视点时细胞无响应,排除了注视点本身驱动的可能。这张图支撑结果第 3 条的缩放不变性。
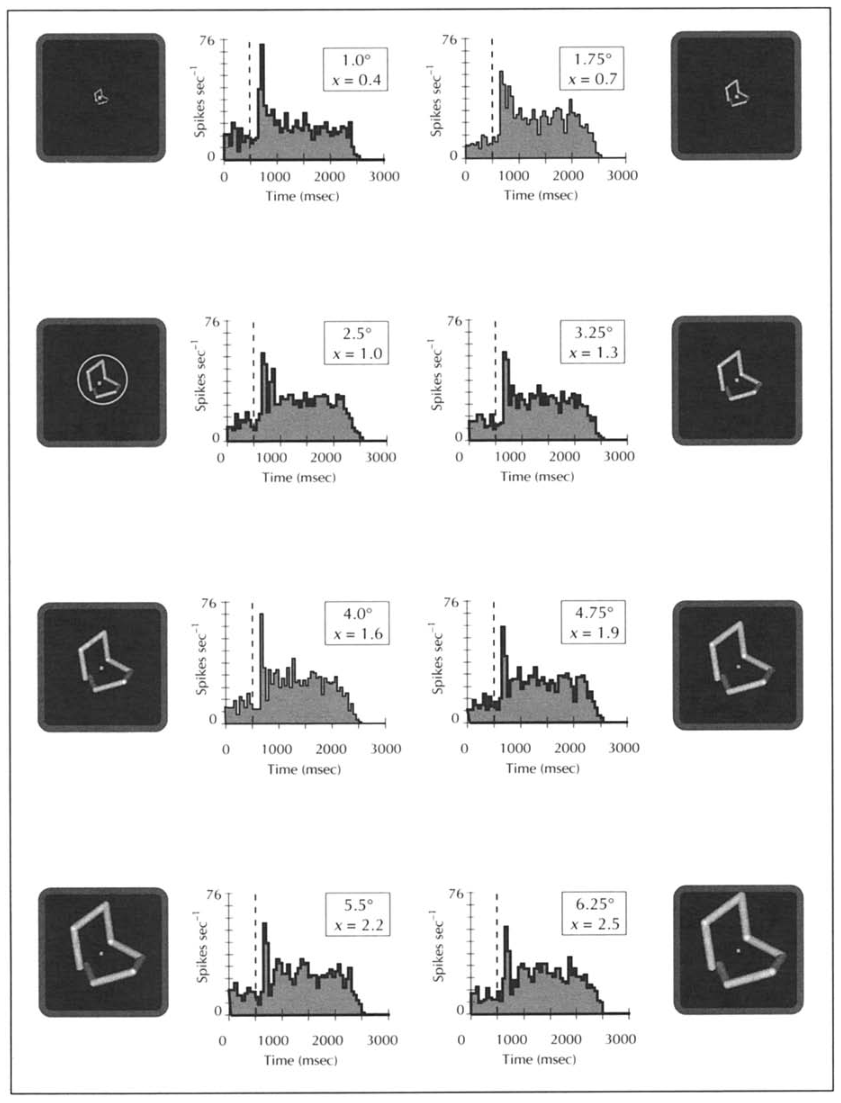
图 7 · 对像平面平移的不变性及其边界
原文图注:Fig. 7. Responses to translation of an object in the picture plane. The data are for the same cell as in Fig. 6. The activity of the neuron for the default wire object presented foveally (shown in Fig. 6) is represented here by the black histogram in the background of each plot. The gray PSTHs show the activity of the cell for the eight positions tested. In each case, the center of the wire was translated 7.5° from the central fixation spot. Other than a short transient burst of activity, cell activity is barely distinguishable from the baseline when the stimulus is presented at each of the eccentric positions. For smaller translations (less than 2), however, no such position dependency was observed.
还是图 6 那个细胞:黑色直方图(背景)是中央凹呈现标准物体的反应,灰色 PSTH 是把物体中心平移到 7.5° 偏心的八个位置上的反应。读图要点:每个偏心位置上,除一个短暂的起始爆发外,反应几乎与基线无异——位置不变性在 2° 以内成立,到 7.5° 就完全消失。这张图诚实地划出了"不变性"的边界:视角样板细胞的位置容忍是旁中央凹尺度的,并非全视野泛化,支撑结果第 3 条的限定表述。
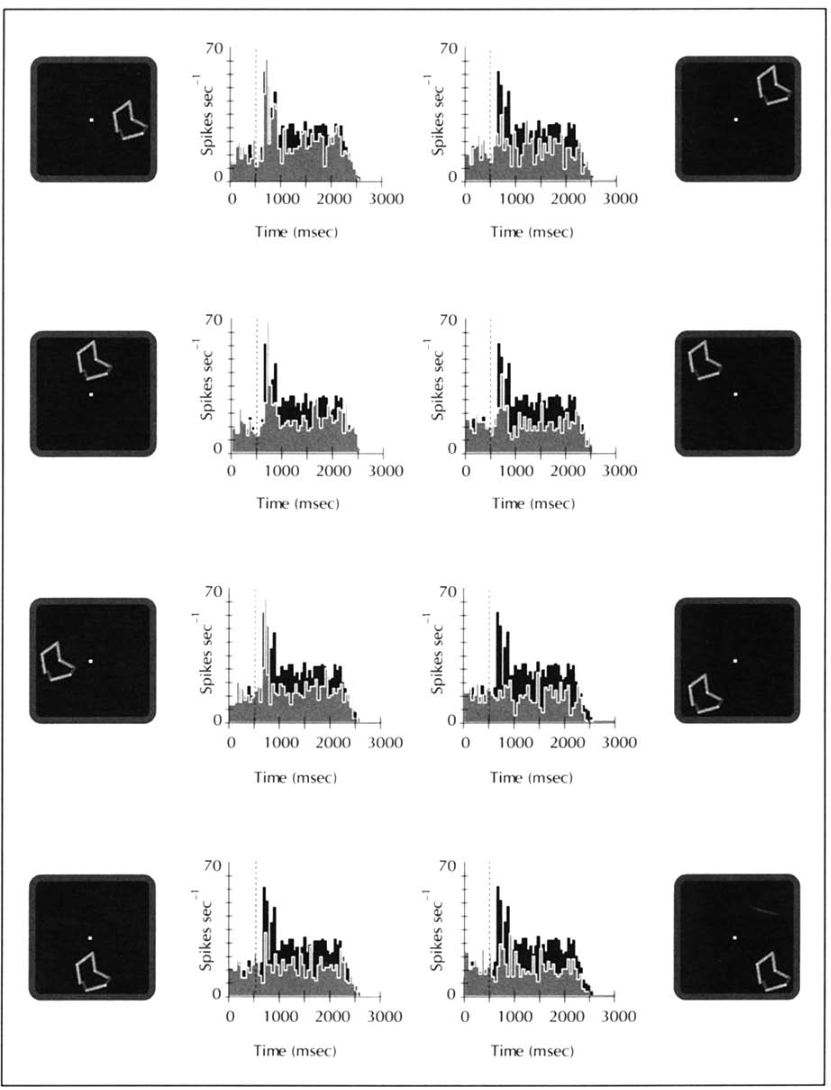
图 8 · 同时对大小与位置不变的视角选择性细胞
原文图注:Fig. 8. A view-selective neuron responding invariantly to changes in size and position. (a) Tuning curve showing activity of the neuron for a limited number of views of the object. The preferred view corresponds to a 120° rotation of the object around the Y axis. (b) The responses of the cell for the ten best distractors. Distractors were always presented foveally, and at the default size. The best target view was used to examine the cell's response to changes in size (c) and position (d). The response of the cell is plotted in both graphs as a ratio of the mean spike rate for a target view to the mean of the mean firing rates for the top ten distractors. The bar representing the response to the default size is indicated by the asterisk in (c). The smallest stimulus, subtending 1.90 of visual angle was used to test responses to changes in position. In (d), the abscissa of the graph indicates the position of each test image in terms of its azimuth and elevation.
数据取自识别任务。(a) 为调谐曲线,最佳视角对应绕 Y 轴 120° 的旋转;(b) 为对 10 个最强干扰物的响应(全部中央凹、默认尺寸呈现),最佳视角响应约为最佳干扰物的 3.5 倍;(c)、(d) 把响应用"目标视角平均放电率 ÷ 前 10 个干扰物平均放电率的均值"这一比值表示:c 为不同尺寸(星号标默认尺寸,最小为 1.9° 张角),d 为方位角×仰角平面上的不同位置(偏心 3.15°)。读图要点:c 中各尺寸的比值都远高于 1 且彼此接近,d 中各位置的比值也都在 2 以上——这个细胞同时具备大小与位置不变性(9 个系统测试者中只有 3 个如此),是"局部恒常性可以和视角选择性共存于同一细胞"的最佳个例,支撑结果第 3 条末句。
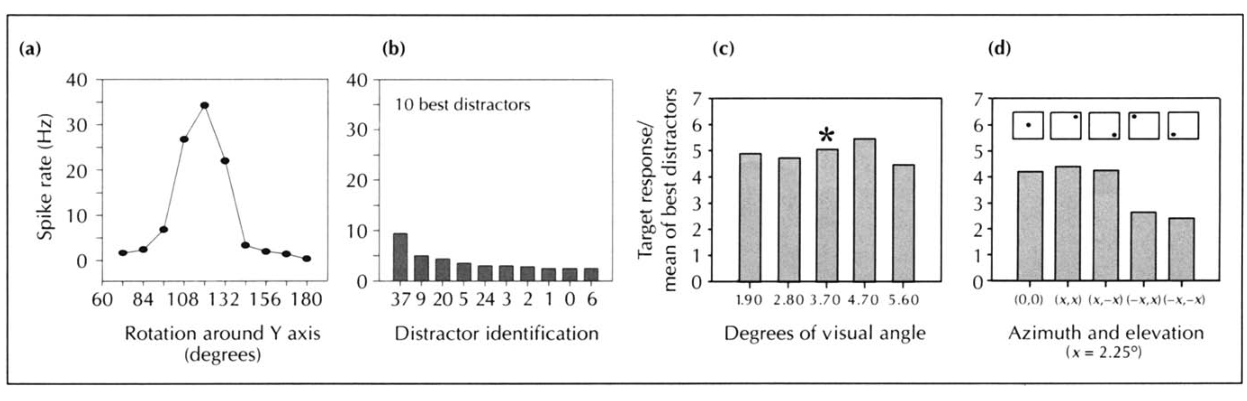
图 9 · 像平面旋转:神经调谐、行为依赖与自发改善
原文图注:Fig. 9. View-dependent behavioral per-formance and view-selective neuronal response for an image rotated in the picture plane. The animal was familiar-ized with the zero view of the object during one brief training session prior to testing. No feedback was given dur-ing the testing periods as to the correctness of the response. (a) The plot depicts the view-tuning curve of the neuron in terms of mean spike rate. (b) Performance of the animal in terms of hit rate (n=10 trials per view). (c) Improvement of performance for recog-nition of views resulting from view-plane rotations. The x axis is rotation angle, the y axis increasing session number, and the z axis hit rate. One test session included ten presentations of each target view, thirty-six in all, spaced at ten degree intervals. Each curve, starting in the front and proceeding to the back, illustrates the performance over two test sessions (a total of n=20 presentations of each target view).
动物在测试前只经一次简短训练熟悉零视角,测试期不给反馈。(a) 为神经元的视角调谐曲线(平均放电率),随像平面旋转角呈单峰、朝向依赖;(b) 为相应物体上猴子的命中率(每视角 10 试次),同样是朝向依赖的;(c) 是行为随时间的三维演进图:x 轴旋转角(36 个视角、间隔 10°)、y 轴时段序号、z 轴命中率,每条曲线对应两个测试时段(每视角累计 20 次呈现),曲线从前到后整体抬升。读图要点:a 与 b 的形状相似——神经调谐与行为表现"同构";c 展示了像平面旋转独有的快速自发泛化(对比深度旋转 15 个时段几乎不动),支撑结果第 4 条,也说明行为不变性可以在神经采样窗口之外成熟。
讨论
作者的结论集中在三点。其一,这些发现表明 IT 神经元具有经验依赖的可塑性:对猴子毫无先验意义、也不像环境中任何熟悉东西的物体,在大量辨别与识别训练之后同样能诱发复杂的构型选择性;而且当动物只能从特定视角识别某物体时,认不出的那些视角上从未找到选择性响应——作者报告,在所测试的、动物系统性识别失败的视角上未发现选择性反应,提示神经视角选择性与行为识别范围相联系;该对应关系未被正式量化。研究思路中的“是否也没有神经响应”和“正相关检验”同步是否观察到选择性反应的定性比较。其二,关于"细胞到底响应的是视角还是简化的特征集"这一 Tanaka 式质疑(复杂物体的响应可用较简单的形式模拟),作者给出两条反驳:这些细胞对各种简单物体包括不同朝向的几何图案都无响应;且 60–120 个共享大量简单特征的干扰物提供了强对照。但作者坦言两条论据都是定性观察,"视角选择性"仍可能归结为对不那么复杂的特征组合的选择性,系统性的数学分析是当时正在进行的工作。其三,作者把数据映射回理论:放电率是围绕最佳视角的钟形方向函数,多数单元是"模糊样板",对深度小旋转的容忍是一种有限的泛化;拟镜像双峰可能是更宽的泛化形式,与心理物理上的反射不变性相通——甚至儿童难以区分镜像字母也可以被重新解读为适应性的加工方式而非"混淆";响应不变性程度在仿射变换上参差不齐(位置不变性从一个极端到 7.5° 偏心不变),暗示一种多层、可能分级的架构,与背景中的插值网络相似。作者承认该方案明显过于简化、缺少已知的强自上而下机制,表征可能是局部外显的也可能是分布式内隐的,视任务与情境而定;对视觉复杂的物体(尤其生物意义的物体),整体表征可能是唯一可能的形式,而视角选择性、对图像变换有不同容忍度的神经元可能正是这类表征的一种元件。另外,作者用两只猴训练史的差异解释了响应类别构成的差异,并明确说两动物的数据量不足以做严格的统计分析。
一句话总结
我读这篇的总体感受是:它把"视角依赖识别"从心理物理现象变成了可指认的神经实现——一组各管一个视角邻域、带局部恒常性的模糊样板细胞,正好是插值网络隐层单元的生物学版本。最耐人寻味的反倒是图 9 那个细节:深度旋转的泛化死活练不出来,像平面旋转的泛化却不需要反馈就自己长出来——识别系统的"不变性"不是一种东西,而是一堆有不同学习时间表的机制。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[] - Fig7: 提取质量
good,对齐度full,识别面板[] - Fig8: 提取质量
good,对齐度full,识别面板[A] - Fig9: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '训练产生了视角选择性IT细胞', 'reason': '只有训练后观察,没有训练前、未训练或纵向神经对照。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '训练量与细胞类别构成一一对应', 'reason': '仅两只动物,作者明确表示无法进行严格统计分析。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '分别记录的视角调谐细胞直接证明了群体编码,并等同于插值网络隐层单元', 'reason': '没有同时群体记录、解码、模型比较或因果实验。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '深度旋转泛化无法训练形成', 'reason': '论文反而报告多视角训练可形成视角无关识别;15个时段结果只适用于特定无反馈测试。'} -> 评注:
- 审校纠偏: {'classification': 'INTERPRETATION', 'claim': '这些结果支持经验依赖、观察者中心的模糊模板表征', 'reason': '与数据相容且属于作者明确提出的解释,但不是排他的机制证明。'} -> 评注:
- 补充要点: : (第 页)
- 补充要点: : (第 页)
- 补充要点: : (第 页)
- 补充要点: : (第 页)
- 补充要点: : (第 页)