该综述系统梳理了猕猴下颞叶(IT)皮层在行为、电生理与解剖连接方面的发育证据,并提出了后续研究路线。文章指出,IT 神经元的基本视觉反应性质在出生后约 6 周即已高度成熟,但其反应幅度、放电潜伏期、突触连接修剪及对高级辨别行为的贡献则持续发育至 1 岁以上。“基本编码早熟”与“信号强度及网络连接长期成熟”并存的特征,构成了理解高级视觉皮层发育的核心框架。
研究背景
IT 在成人视觉识别和记忆中具有重要作用,损伤会在基本感觉相对保留的情况下损害熟悉物体识别和新物体学习,神经元也具有复杂选择性、双侧大感受野和经验依赖可塑性。然而,与纹状皮层和额叶相比,IT 的发育证据十分零散。婴儿猕猴很早就能表现颜色、简单形状辨别和新奇偏好,复杂的延迟非匹配任务却要到数月后才能完成,部分能力甚至到两岁才成熟;新生期 IT 损伤对后来识别的影响又远小于成年损伤。这些现象说明不同功能有不同时间表,却不能直接说明延迟来自神经元选择性不足。
要解释这种不一致,需要把行为、单细胞和解剖放在同一框架中。若形状选择性和双侧感受野在幼婴已接近成人,行为延迟就可能来自反应强度、潜伏期、连接精细化或注意与记忆系统;若这些基本性质也晚熟,则经验对编码本身的塑造更重要。新生期损伤后的保留还可能是其他结构长期代偿,而非 IT 在婴儿完全不起作用。麻醉对幼婴高级皮层的特殊抑制也要求把记录状态纳入解释,否则容易低估其视觉反应。
本文综述行为发育和早期损伤,并结合作者团队的清醒/麻醉电生理与示踪研究,比较婴儿和成人 IT。基本选择性在出生后很早便接近成人,但反应强度、潜伏期、自发放电和麻醉下表达明显未成熟;视觉输入图式较早稳定,若干额叶、对侧及皮层下连接则经历扩展和修剪。由此形成“基本布线早熟、信号与网络长期成熟”的解释。文章并未证明单一因素决定所有行为发育,性别、记录条件和不同任务的记忆需求也需区分;它提供的是一张多时间尺度研究地图,而不是简单的先天或经验结论。
研究思路
本文的总体策略是"三线合围"。第一条线是行为:梳理婴儿猕猴在偏好注视(preferential viewing)、操作性辨别和 DNMS 等任务上的发育时间表,以及新生期 IT 损伤的后果,用以划定"IT 到底何时开始被行为征用"这个宏观边界。第二条线是电生理:比较 5 周到 7 个月婴儿与成人 IT 细胞在清醒行为态和麻醉态下的反应性质——反应发生率、感受野、刺激选择性、反应强度与潜伏期——直接检验"标志性质是否天生"。第三条线是解剖:用逆向示踪剂(retrograde tracer,WGA-HRP 或霍乱毒素 B 亚基)注射到婴儿(2–18 周)与成人 IT,比较其皮层、皮层下与半球间连接的图式是否成熟。三条线各自得出的时间表可以互相校对:如果行为延迟、而生理性质早已成人化,那么"延迟"的源头就要到信号强度或连接模式里去找。
这个设计的巧思在于麻醉处理成了一道天然对照:作者发现麻醉在 4 个月前几乎完全压制 IT 的视觉驱动活动(而其他视觉区不受影响),清醒态记录因此成为婴儿 IT 反应性质的关键证据来源,两种记录状态并行的做法为"性质 vs 强度"的分离提供了杠杆。
方法
行为部分是文献综述(Zimmermann 1961、Harlow et al. 1960、Fantz 范式改造、Bachevalier 与 Mishkin 系列、早期损伤研究等),无新实验。生理部分来自作者实验室:对 5 周–7 个月大的婴儿猕猴做 IT 单细胞记录,方法由成人 IT 记录规程改造(Rodman, 1991),在两种状态下进行——清醒行为态(动物做注视任务时)和麻醉态;成人对照数据取自文献(Gross et al., 1979; Richmond et al., 1983)及自己的样本。刺激为投影到屏幕上的黑白(傅里叶描述子/Fourier descriptor, FD 刺激及线条)或彩色图像,在中央凹处张角 3–6°;分析上用重复测量方差分析(repeated-measures ANOVA)对每个反应性细胞的跨刺激反应量算 F 值,比较婴儿与成人样本的 F 分布以量化"整体选择程度"。解剖部分:向 8 只 2–18 周的婴儿和 3 只成人的前 IT 注射逆向示踪剂,比较标记细胞的分布(顺行标记用于看终止层);髓鞘化用髓鞘染色评估。文中还引了 2-脱氧葡萄糖代谢测定和毒蕈碱型胆碱受体结合的发育数据(Bachevalier 等)。
主要结果
-
行为:识别功能的发育出奇地漫长。偏好注视范式下,婴儿猕猴出生一个月内就对新奇图案有偏好,6 周以上者只需更短的熟悉时间即可表现出显著的新异偏好;操作性任务上 3–4 个月婴儿学习长串物体对辨别("视觉习惯")的速度几乎与成人一样快、甚至能容忍 24 小时的试验间延迟。但复杂识别任务 DNMS 4 个月前完全做不了,要到 2 岁才达成人水平——"习惯"早熟、"记忆"晚成,这条分界是全文的暗线。
-
新生期 IT 损伤几乎不留永久缺陷。出生第一个月内双侧 IT 损伤的猴子,10 个月时测 DNMS 正常,且数年后依然正常;偏好注视测得的识别能力也不受损;物体对辨别任务保留(仅雌性婴儿有一过性缺陷)。与额叶"长入式"缺陷(长到该用这块皮层时才显出障碍)不同,IT 的早期 spared 是持久的,提示其他结构能长期代偿。
-
电生理:基本性质惊人地早熟。清醒态下能被视觉驱动的 IT 细胞比例在婴儿与成人间无显著差异、在所测年龄窗内也无随年龄上升的趋势(图 2;婴儿样本为 4 只 4 个月以下动物的 93 个细胞加 1 只 6–7 个月动物的 18 个细胞)。麻醉下仔细测绘的感受野大而双侧:婴儿与成人的中位尺寸都约 20°见方,双侧野比例都约 65%(图 3)。刺激选择性同样成人化:婴儿 IT 中有一小部分细胞对面孔作为一类刺激有选择,个别细胞只对特定面孔朝向(如侧面像,图 4A)放电;对以边界曲率定义的形状(FD 刺激的频率调谐)的加工在婴儿与成人中比例相当(图 4B);也找到了对颜色、任意几何图案和特定三维物体有选择的细胞。整体选择程度的 F 值分布在婴儿与成人间无显著差异(图 5B),且两组中绝大多数细胞的 F 值本身高度显著——多数细胞都在为"物体身份"提供可分辨的反应模式。
-
电生理:信号强度是短板。尽管选择性成熟,婴儿 IT 细胞对各种刺激的反应一致地比成人弱(图 6A),且反应量与记录时的年龄无相关(作者样本多集中在 1.5–3.5 个月的窄窗内);视觉反应潜伏期更长、更不稳定。麻醉在约 4 个月前几乎完全抑制 IT 的视觉驱动活动——尽管其他视觉皮层区此时已有反应——4–7 个月间被驱动的情况也少于成人(图 6B);自发活动水平在麻醉态和清醒态下都低于成人(图 6C),提示这可能是婴儿皮层神经元普遍的膜性质而非 IT 特有。代谢数据与此吻合:视觉刺激下 IT 的代谢活动发育落后于更靠后的视觉区,约 4–6 个月才达成人水平;髓鞘化更晚——7 个月时纹状皮层和 MT 已明确可见成人式致密髓鞘,IT 的致密化才刚开始,这与长潜伏期直接对应。
-
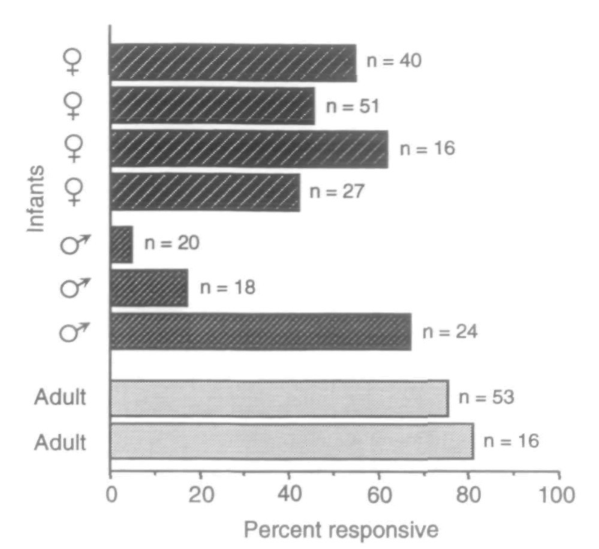
解剖:视觉输入早熟,"记忆-注意"连接晚熟。婴儿 IT 的枕颞视觉输入图式与成人基本一致(图 7、8),但出现一批成人没有的瞬时连接:来自脑岛、胼胝体上方的前扣带皮层、对侧额叶皮层的输入,以及 7 周以下来自对侧 IT 深层的比例更高的输入;同时 IT 对鼻周和海马旁皮层的输出比成人更广泛,TEO 在新生猴还有通往海马旁皮层的瞬时投射(图 9)。皮层下也有一批瞬时连接:TE 到上丘的广泛投射、到丘脑内侧背核和尾核尾部的投射增强、TEO 到杏仁核的扩展投射及来自外侧膝状体背层的增强输入。半球间纤维(胼胝体与前连合)在出生后 3–4 个月经历多余轴突的大规模回撤(LaMantia & Rakic, 1990),作者推测对侧额叶与对侧 IT 深层的瞬时连接正是在这一期被修剪掉的。此外,两性发育不同步:行为上雄性婴儿在物体对辨别上平均要晚几周,成绩与血浆睾酮水平紧密负相关、新生期性腺切除可把雄性提到雌性水平;麻醉态电生理上,4–7 个月的雌性婴儿反应率一致,雄性则波动大、三例中两例被大幅压制(图 10)。
图注解读
正文还引用了图 8(婴儿猴前颞叶与额叶冠状切面上逆向标记细胞的分布,三角形密度代表标记密度),但其图注未包含在元数据中,故本节仅解读元数据所列的 9 张图。
图 1 · 猕猴视觉区分布图
原文图注:Figure 1. Location of visual areas, including IT cortex {shaded area), shown on a lateral view of the macaque brain in which posterior sulci have been "opened up." FEF, frontal eye field; FST, fundus of the superior temporal sulcus visual area; LIP, lateral intraparietal area; MST, medial superior temporal area; MT, middle temporal area; PO, parieto-occipital area; STP, superior temporal polysensory area; VIP, ventral intraparietal area; VI, V2, V3, V3a, V4, V4t, visual areas 1, 2, 3, 3a, 4, and transitional 4, respectively, 46, cytoarchitectonic area 46.
该定位图将 IT 皮层(阴影区域)置于整个皮层视觉系统架构中:后部脑沟经展开以便呈现 V1 至 V4 的层级分布,IT 位于腹侧通路的终端部位,向前与额叶眼区(FEF)等额叶区域相邻。该图展示了 IT 皮层在解剖层级中的空间位置——既接收经过多级中转的枕颞视觉输入,又紧邻与记忆、注意相关的边缘与额叶系统,为理解“视觉输入早熟与额叶连接晚熟”提供了结构基础。
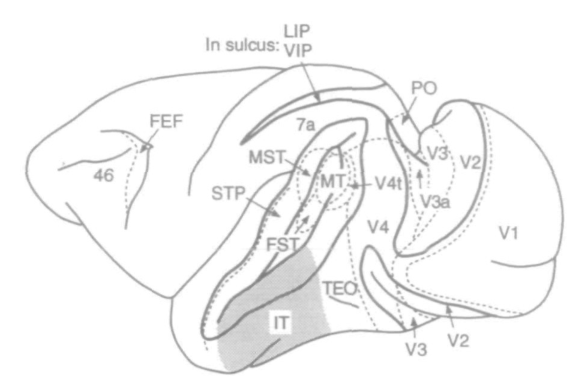
图 2 · 婴儿与成人 IT 视觉反应性细胞比例
原文图注:Figure 2. Incidence of visually responsive single neurons in IT cortex in awake infant and adult macaques performing a fixation task. Data are from, in a, Rodman et al. (1993b); b, Gross et al. (1979k and c, Richmond et al (1983). Infant sample was drawn from 93 IT neurons in four animals below 4 months of age and 18 neurons in one animal between 6 and 7 months at the time of recording.
三根柱状分别对应三组样本中执行注视任务的清醒动物内有视觉反应细胞的比例:a 为作者实验室的婴儿样本,b、c 为两组成人文献数据。数据显示三根柱高度相当,表明清醒状态下能被视觉驱动的细胞比例在婴儿与成体之间无显著差异,且在 4 个月以下与 6–7 个月幼婴之间亦未见随年龄上升的趋势。该图支撑主要结果第 3 条,证实 IT 皮层具有视觉响应性的神经元比例在出生早期即达到成体配置水平。
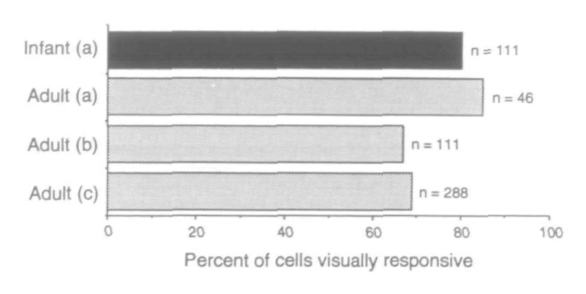
图 3 · 麻醉婴儿 IT 细胞的感受野测绘
原文图注:Figure 3. Receptive fields of IT cortex cells plotted in four electrode penetrations in anesthetized infant monkeys, c, contralateral visual field; ce, central sulcus; ci, cingulate sulcus; hm, horizontal meridian; /, ipsilateral visual field; la, lateral sulcus, ot occipitotemporal sulcus; rh, rhinal sulcus; Jt superior temporal sulcus; vm, vertical meridian. Adapted from Rodman et al. (1991).
该图展示在麻醉幼婴四个电极穿刺通道中记录到的 IT 细胞感受野边界,绘制于以中央沟、外侧沟、鼻侧沟等解剖标志为参照的视野坐标系中(c/i 分别为对侧与同侧视野,hm/vm 为水平与垂直经线)。各感受野均横跨垂直经线、覆盖中央注视点且空间跨度较大,呈现出典型的大而双侧感受野形态。麻醉幼婴与成体的感受野中位尺寸均约为 20°见方,双侧感受野比例均约为 65%,支撑主要结果第 3 条。
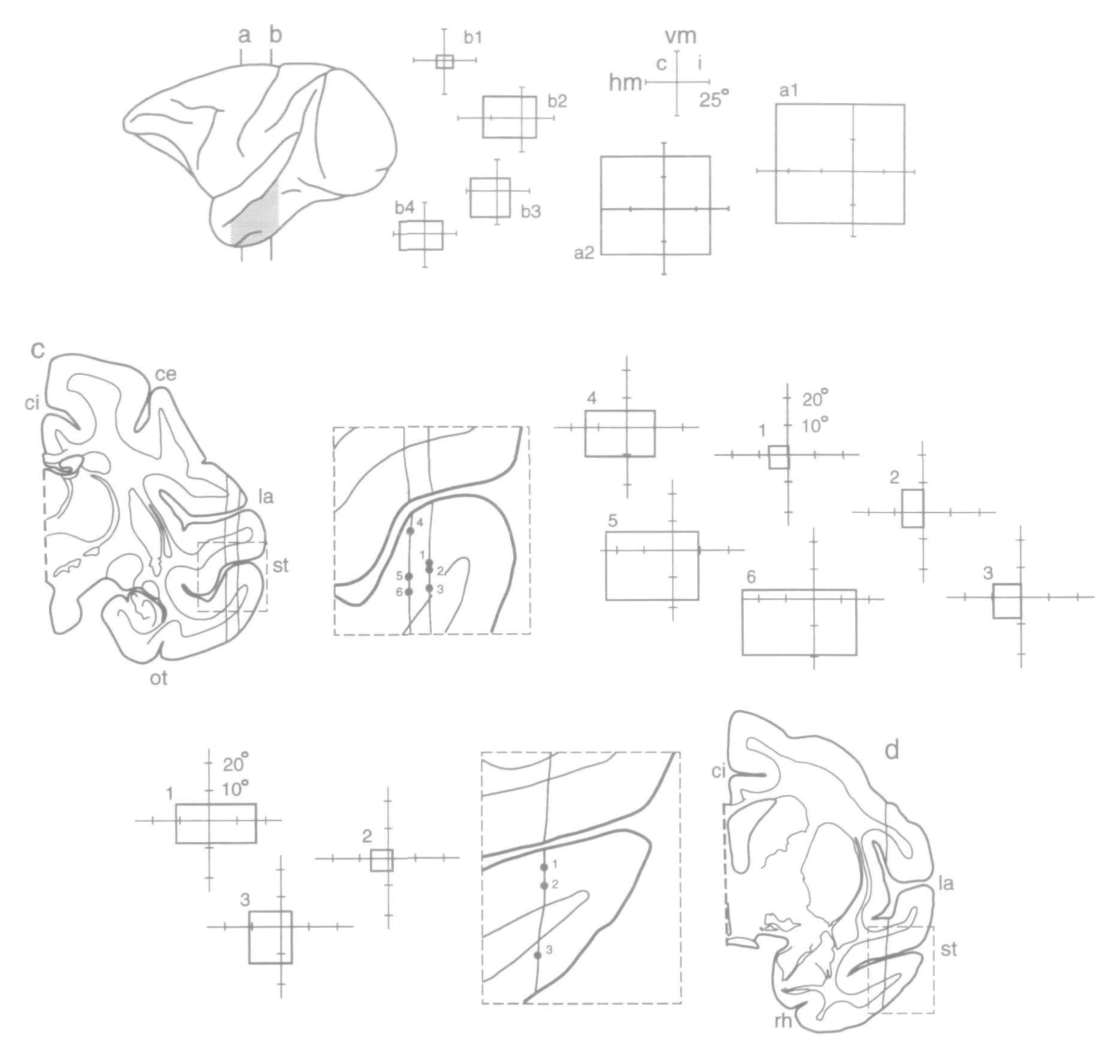
图 4 · 婴儿 IT 的形状选择性与曲率调谐
原文图注:figure 4. Responses of neurons in fT cortex. Stimuli were black and white (FDs, Gnes) or colored (all other stimuli) images projected onto a screen and subtended 3-6° at the fovea. A, Cell in IT cortex of a 3-month-old alert infant monkey that was selective for a particular profile view. For each stimulus, the arrow under the poststhnuius time histogram (PSTH) indicates die time at which the monkey fixated the central fixation spot, the horizontal line under the PSTH indicates the 500 msec period during which the stimulus was presented, and the vertical line in the raster diagram above each PSTH indicates the time of stimulus onset B, Examples of responses tuned to boundary curvature (FD frequency) in IT cortex of awake infant and adult macaques. Adapted from Rodman et al. (1993b).
A 栏展示 3 月龄清醒幼婴单个 IT 细胞对一组彩色图像(猴侧面像、威胁表情、打哈欠、打乱版对照等)的栅格图与刺激后时间直方图(PSTH):箭头标示注视点固视时刻,横线标出 500 ms 刺激呈现期,栅格竖线标出刺激起始。该细胞对特定侧面像呈现强烈放电,对打乱版或线段刺激几乎不响应,表明视角特异性的面孔调谐在 3 月龄已建立。B 栏对比清醒幼婴与成体细胞对边界曲率(FD 频率)的调谐曲线,两组调谐轮廓与响应比例相当,支撑主要结果第 3 条。
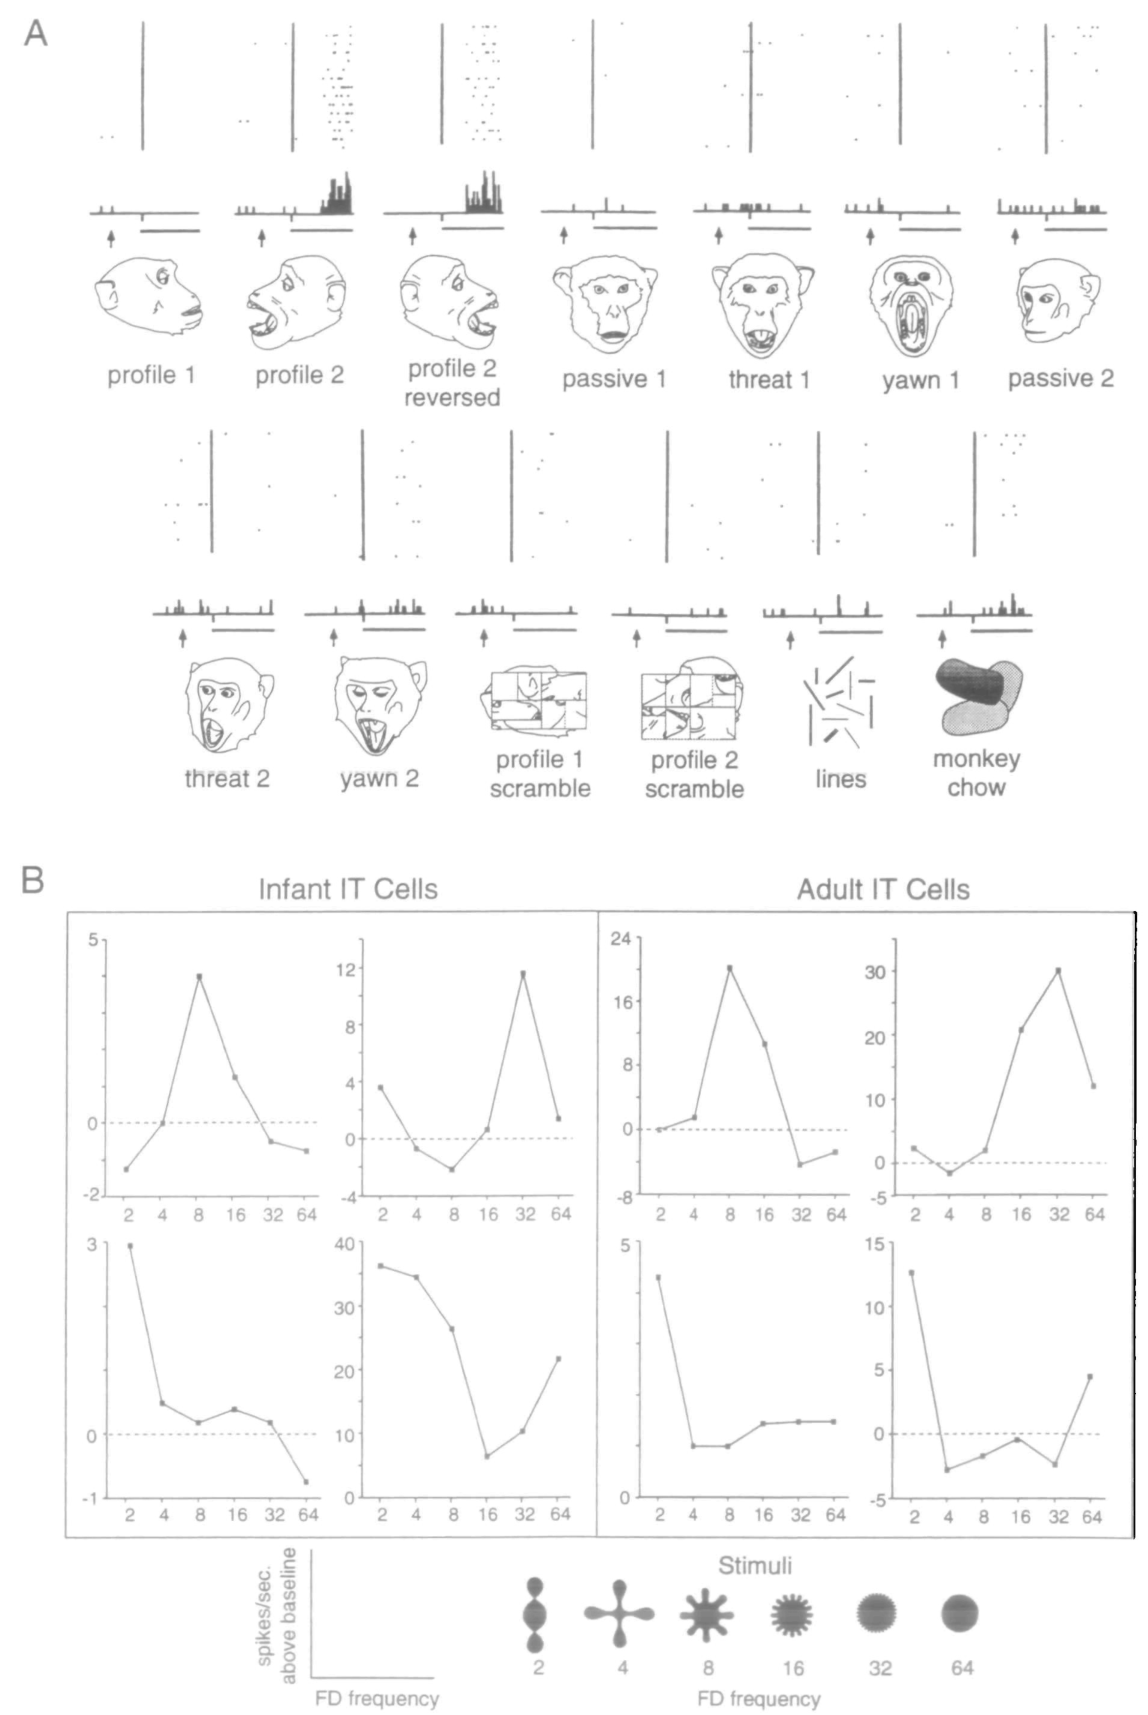
图 5 · 三个婴儿细胞的反应谱与整体选择度分布
原文图注:Figure 5. Patterns of selectivity of cells in FT cortex. A, Bar graphs illustrating responses to set of standard images (shown to the right) for three cells in infant IT cortex. Asterisks indicate statistically significant responses. Adapted from Rodman et al. (1991). B, Comparison of distributions of F ratios from repeated-measures AN OVA for each responsive IT cell in awake infant and adult monkeys. Adapted from Rodman et al. (1993b).
A 栏展示 3 个幼婴 IT 细胞对同一套标准图像的放电反应柱状图(星号表示统计显著),呈现出单刺激高度特异或多刺激子集响应的多样化调谐谱。B 栏对比清醒幼婴与成体反应性细胞跨刺激重复测量方差分析的 F 值分布,两组分布形状接近且无统计学显著差异。该结果为幼婴 IT 皮层整体刺激选择性程度已达成熟水平提供了定量统计支持,支撑主要结果第 3 条。
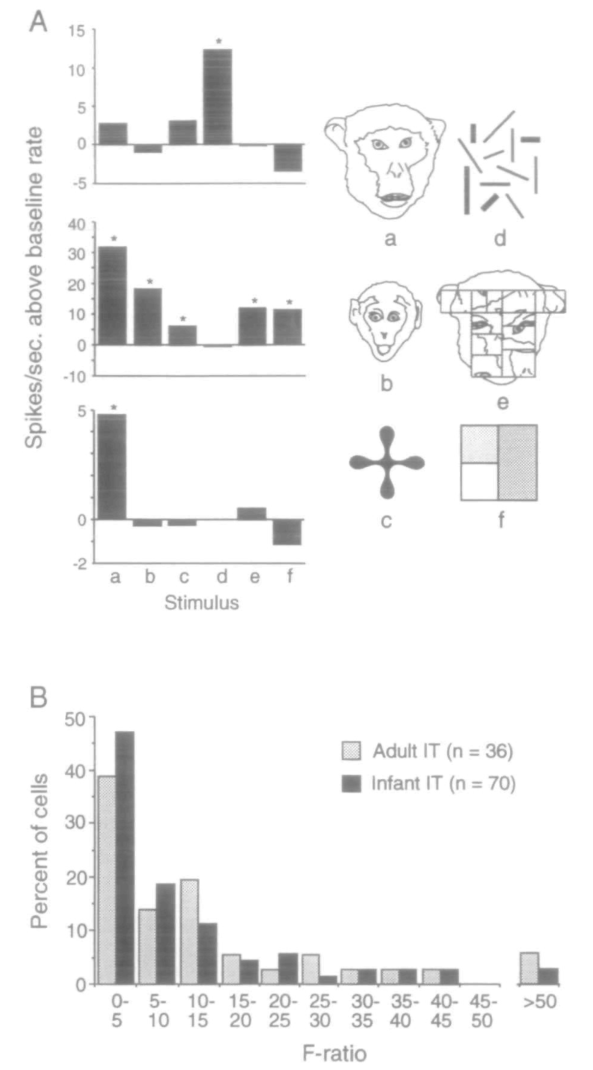
图 6 · 信号强度:反应量、麻醉敏感性、自发活动
原文图注:Figure 6. Signaling properties of IT cortex in infant monkeys. A Overall mean response magnitudes of samples of IT cells in awake infant and adult macaques to individual members of standard set of projected stimuli. B, Emergence of IT responses as a function of age under anesthesia. C, Mean spontaneous activity values of IT neurons in infant and adult macaques. A and B are adapted from Rodman et al. (1993b).
A 栏逐一对比清醒幼婴与成体 IT 细胞对各标准刺激的平均反应幅度,幼婴组在各刺激上的反应量均显著偏弱;B 栏展示麻醉状态下 IT 视觉反应检出率随月龄的变化,4 个月前几乎无法测得反应,4–7 个月仍显著低于成体;C 栏显示自发放电率在麻醉与清醒状态下均显著低于成体。该图集中展现了幼婴 IT 的生理信号短板:编码选择性虽已就位,但反应强度、自发背景放电与麻醉耐受性显著滞后,提示神经元基础膜电位性质尚处于成熟过程中,支撑主要结果第 4 条。
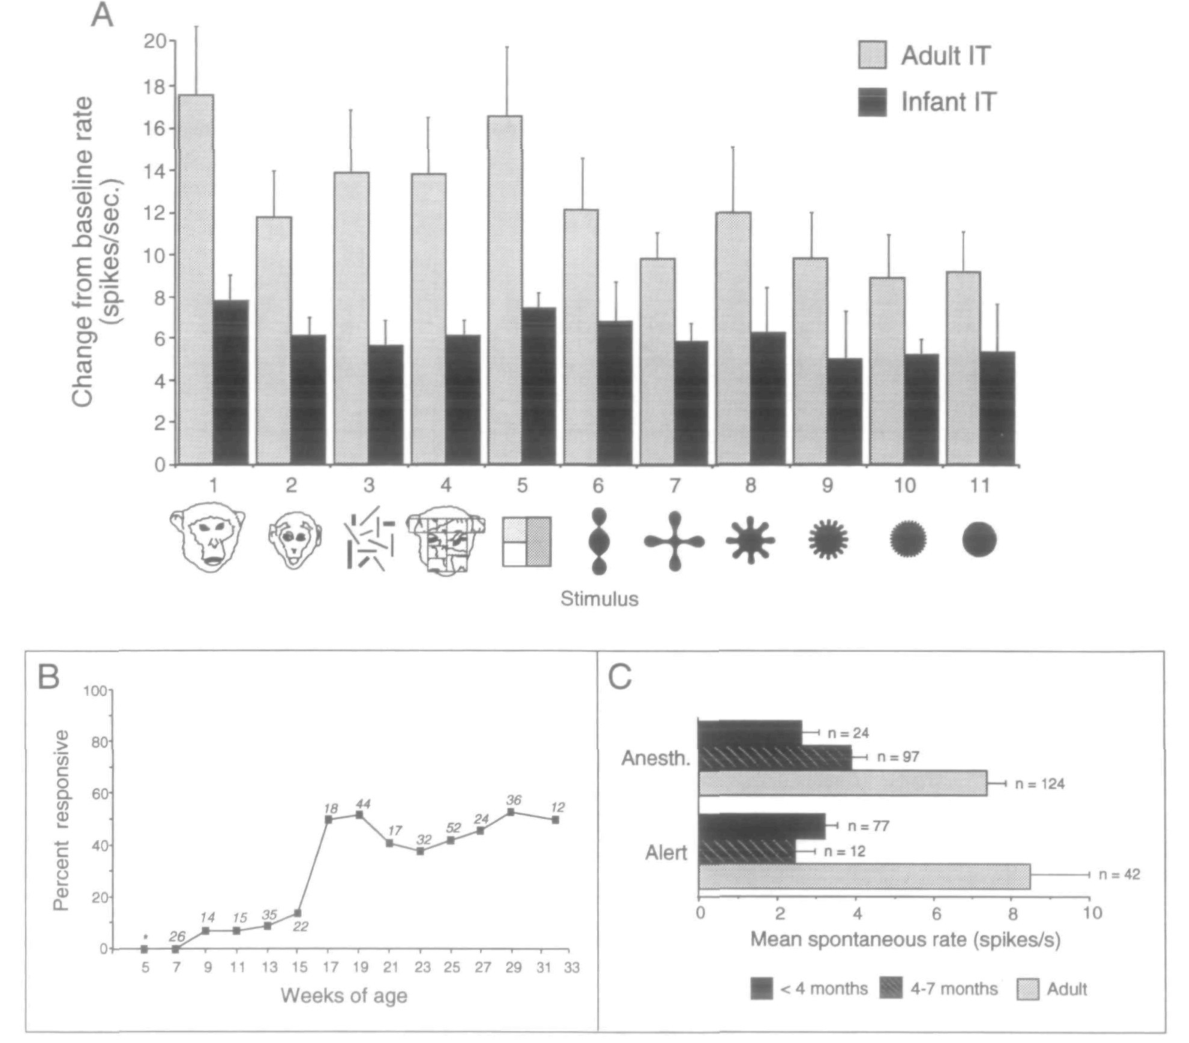
图 7 · 前 IT 逆行标记的整体模式:婴儿对成人
原文图注:Figure 7. Overall pattern of retrograde labeling following injection of anterior IT cortex in an infant monkey and an adult monkey, shown on lateral and ventral reconstructions of each hemisphere and on flattemngs of the superior temporal sulcus. Small, medium, and large dots represent sparse, moderate, and dense labeling, respectively, al, inferior arcuate sulcus (s.h ami anterior medial temporal s.; as, superior arcuate s.; ca, calcarine s, ce, central s.; io, inferior occipital s., ip, intraparietal s.; la, lateral s.; Io, lateral orbital s.; lu, lunate s.; mo, medial orbital >.; ot occipitotemporal s.; pmt, posterior medial temporal s.; or, principal s.; rfi, rhinal s; st superior temporal s.
该图对比幼婴与成体各一例向前部 IT 注射逆向示踪剂后的标记细胞分布,在半球侧面观、腹面观及上颞沟展开图上以点密度(小、中、大点分别代表稀疏、中等、密集)展示标记强度。两组在枕颞来源的同侧皮层前馈输入图式上基本一致;但对侧半球(特别是对侧额叶与对侧颞叶)在幼婴中呈现显著更丰富的标记细胞,构成了幼婴期瞬时连接特征的直接解剖学证据,支撑主要结果第 5 条。
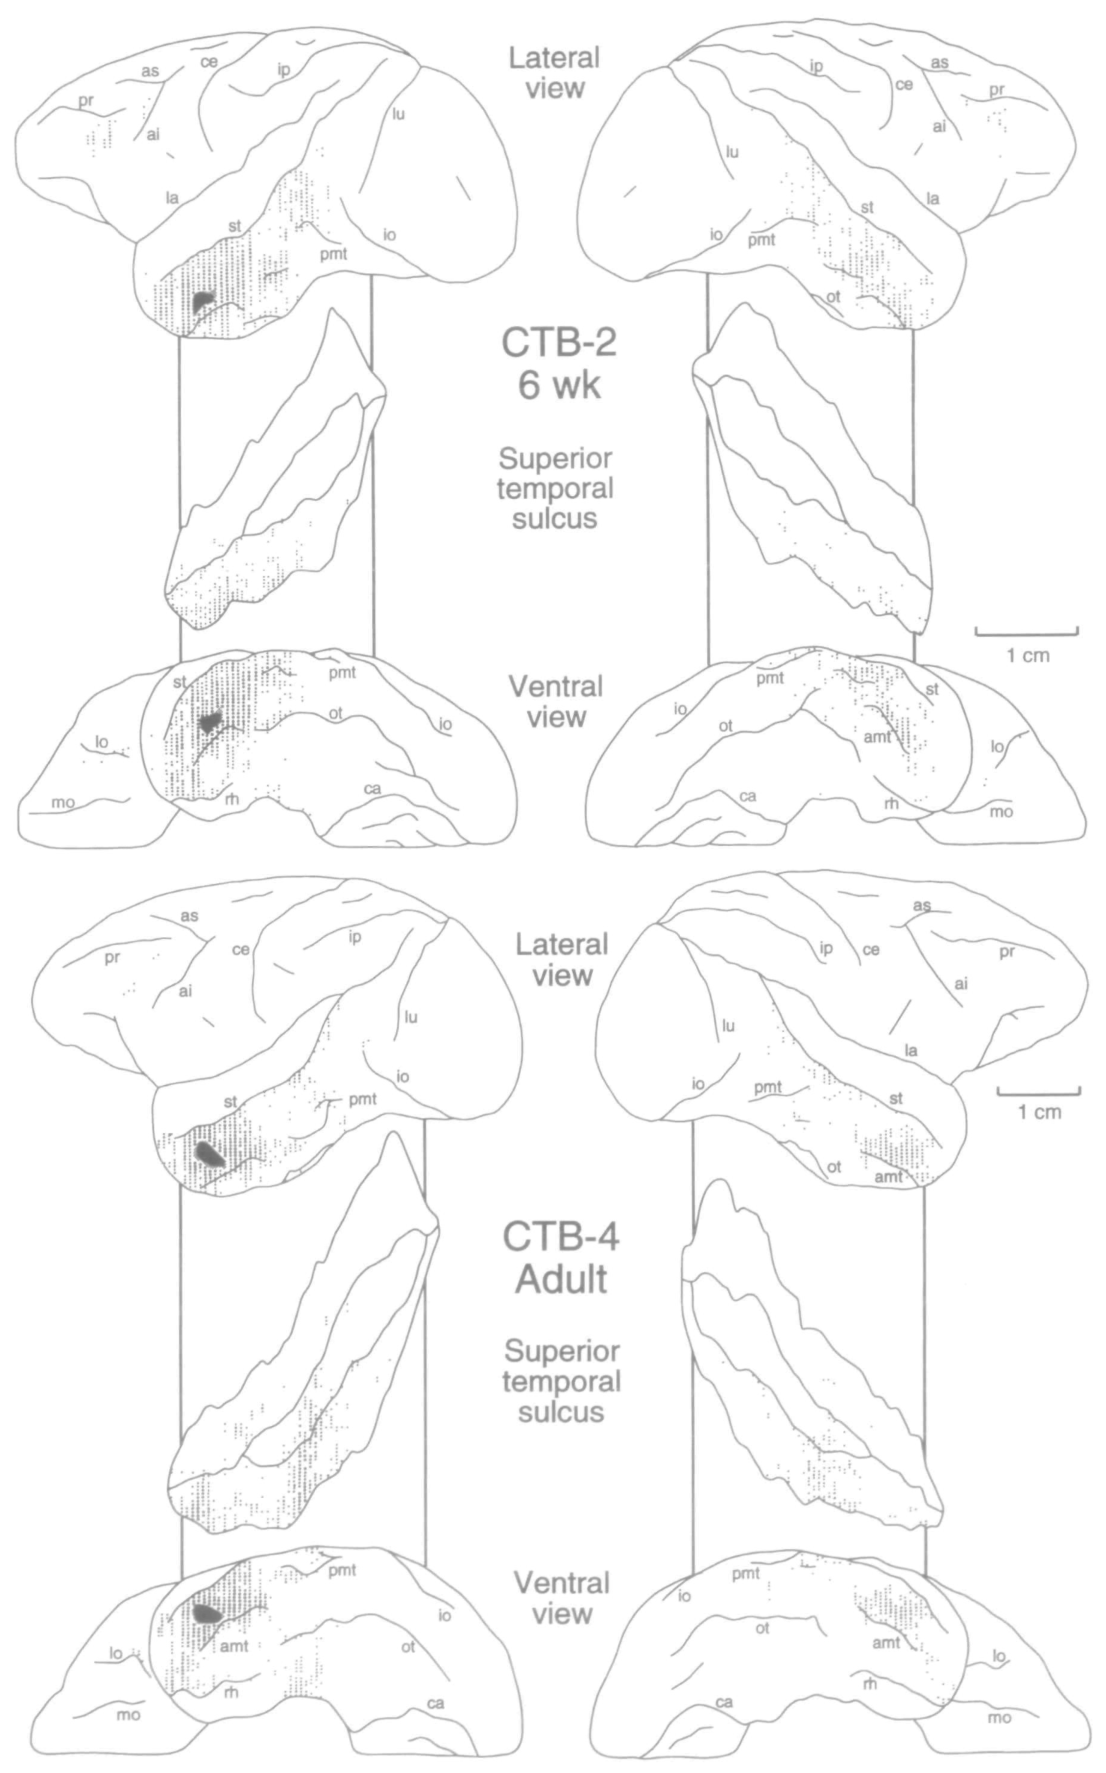
图 9 · 7 周婴儿 WGA-HRP 标记的显微照片
原文图注:Figure 9. Bright-field photomicrographs of WGA-HRP labeling in 7-week-old infant monkey. Neutral red counterstain. A, Cingulate cortex, cc, corpus callosum. B, Rhinal cortex. Note anterograde label in layers I and IV. 35, 36, cytoarchrtectonic areas of the rhinal cortex; rh, rhinal sulcus. Adapted from Rodman and Consuelos (1994). Scale bars: A, 200 M-m; 6, 500 urn.
A 为扣带皮层亮场显微照片(中性红复染,cc 为胼胝体),B 为鼻周皮层(rh 为鼻侧沟,35/36 为细胞构筑亚区),展示来自前部 IT 注射点的顺行纤维末梢标记。第 I 层与第 IV 层均可见清晰的顺行末梢分布,表明幼婴期 IT 与边缘皮层之间的瞬时连接已形成具有层构特异性的功能性突触投射,而非简单的非特异性扩散,支撑主要结果第 5 条。
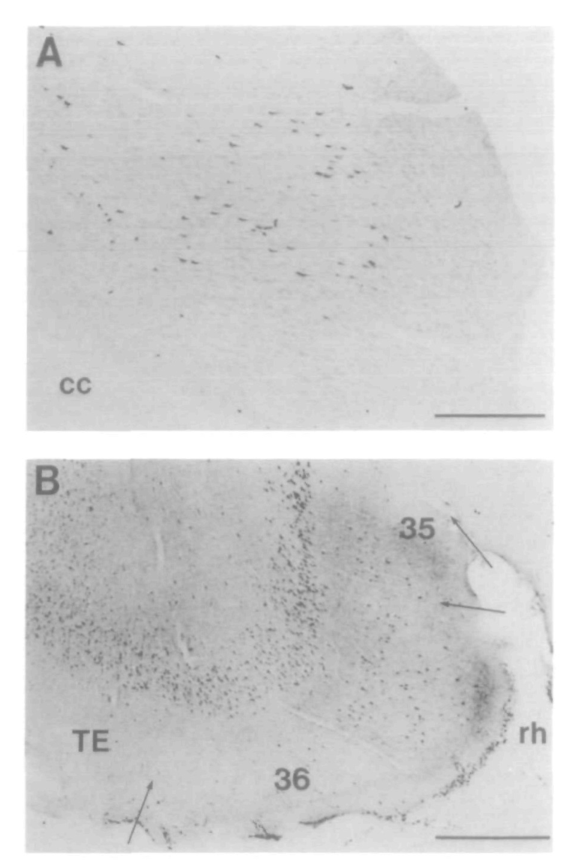
图 10 · 麻醉态视觉反应性的性别差异
原文图注:Figure 10. Visual responsiveness of isolated single neurons in anesthetized IT cortex as a function of gender in infant monkeys, and in male adults.
该图按性别对比麻醉状态下幼婴(雌性、雄性)与成年雄性 IT 神经元的视觉反应检出比例。幼婴雌性组内部反应比例较为稳定,而幼婴雄性组个体间变异较大,且部分个体反应受到更深程度的抑制,与成年雄性恢复至高反应水平形成对比。该现象与行为学上雄性发育相对滞后及睾酮水平调控的报道相契合,支撑主要结果第 5 条末尾关于发育节奏性别差异的讨论。
讨论
作者对"IT 行为贡献为何延迟"给出了排除式论证:这种延迟显然不是由于早期 IT 反应缺乏特异性(选择性模式明明已成人化),也不是由于提供视觉输入的皮层投射不成熟(枕颞连接图式基本成人化);最合理的解释是 IT 信号太弱——反应量低、潜伏期长、易被麻醉压制——至少在半岁以内如此。同时,解剖上的不成熟恰好集中在与视觉记忆和注意相关的区域:额叶、鼻周、扣带皮层和脑岛,而这些区域自身可能也还不成熟,使得 IT 参与视觉记忆所需的回路无法闭合;成人与 IT 相连的额叶区在匹配任务延迟期有刺激选择性的持续活动,Fuster 的冷却实验证明 IT 与额叶在任务中互相影响,Desimone 等据此提出额叶对 IT 有"自上而下"的预备(priming)作用——成熟的双向连接可能是 IT 充分参与视觉识别记忆的前提。作者把 IT 的发育放进全皮层背景:出生后头 2–4 个月各皮层区同步出现突触与受体的过量产生,随后回落;IT 的发育既包含其特异现象(麻醉压制的区域特异性、髓鞘化滞后),也叠加在全皮层共有的发育机制之上。最后,文章提出了一个颇具前瞻性的假说:除头半年的敏感期外,IT 这类"联合区"可能还有一个长得多、可延伸到成年期大部分时间的第二敏感期——成熟的标志不是固定的反应模式,而是随经验高效重组回路的能力,作者甚至预测婴儿个体神经元的反应模式受环境操纵的影响反而比成年后更小。
一句话总结
该综述表明,猕猴下颞叶皮层的刺激选择性与感受野构型等基本硬件特性在出生后数周即已就位,而放电强度、反应潜伏期、髓鞘化进程以及与额叶、海马旁皮层之间的突触连接修剪则呈现跨越数月乃至一岁以上的长期发育轨迹。这种“基本编码图式早熟”与“信号增益及网络整合晚熟”的时间表分离,为解释复杂视觉识别与记忆行为的渐进成熟机制提供了连贯的神经生物学框架。