这篇 Logothetis–Pauls–Poggio 的经典研究训练猕猴辨认一批对动物无先验意义的计算机生成三维物体,随后在 IT 单细胞水平记录到了仅对特定视角响应的神经元,为“以观察者为中心的视角样板”识别表征提供了早期直接的电生理证据。该工作整合了心理物理学中的视角依赖识别现象、插值网络理论以及 IT 电生理证据,表明复杂的构型选择性并非天然生物刺激所独有,而是能通过经验习得并分配到具体视角上。
研究背景
物体在空间中旋转后,视网膜投影图像会显著改变,但视觉系统仍能识别同一物体。物体中心理论常借由三维结构描述或体积基元解释这种恒常性;观察者中心理论则认为长时记忆储存了若干熟悉的二维视角,识别时在视角模板之间进行匹配或插值。观察者中心模型曾因可能需要存储海量视角而受到质疑,但人工神经网络研究表明,基于少量二维模板即可插值出未知视角;人和猕猴的心理物理学测试也显示,识别成绩随测试视角与训练视角的角距离增加而下降,且经历少量视角训练后即可泛化。这些发现引出了具体的神经机制预测:IT 皮层中是否存在以特定视角为中心的宽调谐细胞,并通过神经元集群共同表征同一个三维物体。
已知 IT 皮层对复杂几何构型、面孔和身体部位具有选择性,部分面孔细胞也表现出对特定头部朝向的偏好。然而面孔与生物刺激具有强烈的生态意义,尚不足以证明该选择性能否推广到任意物体经验。若灵长类仅对演化关键类别发展特化表征,新颖人造物体便不应诱发类似的神经调谐;若 IT 皮层能在经验驱动下塑造构型表征,无先验意义的三维形体同样应产生视角选择性。此外,实验必须引入大量高相似度干扰物,以排除细胞仅对局部线段、凹坑或简单轮廓响应的可能性,并检验视角调谐是否能与大小、位置容忍性在单细胞层面共存。
研究团队训练猕猴系统学习辨认计算机生成的线状物体与球形体物体,随后记录前下颞叶对目标多视角及同类、异类干扰物的放电反应。行为训练使神经信号可以直接与动物实际能辨别或无法辨别的视角建立对应;通过高斯函数拟合可估计视角调谐宽度,结合缩放、平移和像平面旋转测试,进一步界定了细胞在其他图像变换下的容忍度。研究揭示了大量视角特异性细胞与极少数视角不敏感细胞,为观察者中心表征提供了直接支持。该结果并非说明所有 IT 识别均依赖同一种模板匹配算法,训练量、电极记录位点估计及有限的变换测试范围也界定了其解释边界;但复杂构型选择性显然不局限于天然生物刺激。
研究思路
研究设计遵循“先行为训练、后电生理记录,以行为能力作为神经解释锚点”的路线。首先通过系统训练,使两只猕猴在匹配任务中掌握两类新颖物体的辨识:Gouraud 着色的线状(wire-like)物体与变形虫状球形体(amoeboid/spheroidal)物体。训练过程中,类内目标与干扰物的相似度从“随机参数生成”逐步提升至“在目标参数上添加微扰”,并泛化至平移、缩放与朝向变换,最终标准要求猕猴对目标任意视角的命中率达到 95% 以上、对所有干扰物的虚警率低于 5%。随后在前 IT 皮层进行单细胞胞外记录,系统呈递目标物体的多个旋转视角(沿 Y 轴、X 轴或斜轴旋转 ±10°–180°)以及同类与异类干扰物。
实验设置了三重对照逻辑:其一,呈现同类内的 60–120 个干扰物体,这些干扰物与目标共享朝向、转角或端点等简单低级特征,若神经元仅充当低级特征检测器,必然会被干扰物同步激活;其二,测试几何图形等简单刺激的响应;其三,检验神经反应与动物行为识别率的相关性,核实行为上无法辨认的视角是否同样缺乏显著的神经放电。数据分析采用高斯函数拟合视角调谐曲线,以“两个标准差内的目标视角响应显著高于全部干扰物”作为视角选择性的统计判据,并进一步测试这些细胞在图像缩放、像平面平移与像平面旋转下的响应稳定性。
方法
实验被试为两只幼年恒河猴(体重 7–9 kg),经无菌手术植入头部固定柱和巩膜搜索线圈(scleral search coil,眼动采样率为 200 Hz)。刺激呈现在距离眼部 97 cm 的显示器上。线状物体在三维空间中随机选定顶点生成(约束条件:线段不相交、相邻夹角避免过锐、各物体间转动惯量差异控制在 10% 以内),表面由圆管包裹的矩形网格渲染;球形体物体则由递归细分的三角网格逼近球体,随机向外拉伸生成突起(或向内生成凹坑),通过调节突起数量、正负号、大小、密度及方差调控物体相似度。行为训练首先在海量干扰物中识别目标的零视角(zero view,基准训练视角),随后围绕单轴逐步加大旋转角度进行泛化训练;待猕猴能在零视角 ±90° 范围内准确辨别后更换新物体。训练期每次正确反应均给予反馈,心理物理数据采集期则不提供正确性反馈;强化策略从每试次给果汁逐步过渡至可变比率强化,最终阶段调整为连续 10 次正确后给予奖励。猕猴平均需 4 个月实现类内新物体的泛化识别,约 6 个月方能稳定执行任意新物体的识别任务。
电生理记录电极定位于前中颞沟(AMTS)背侧壁,立体定位坐标估计位于 Horsley–Clark 零点前 15–21 mm(因实验动物需继续参与后续测试,未行组织学切片重建,记录位点由立体定位坐标、灰白质交界深度、X 射线显影以及同体型猕猴的 MRI 影像综合判定);记录采用 2–3 MΩ 铂铱丝电极,经导管在约 10×10 mm 的皮层区域内寻踪记录。实验包含两类行为任务(图 1):(1) 简单注视任务(注视蓝点 10–15 s,依据注视点颜色转变按压反应杆:蓝变红按右杆,蓝变绿按左杆),用于在屏幕任意空间坐标呈递刺激以测定细胞感受野与图像变换容忍度;(2) 物体识别任务(图 1b),以黄色注视点起始,学习相呈现目标物体某特定视角 2–4 s,伴随 0.67 Hz、±15° 的正弦往复旋转以提供三维深度线索;测试相包含最多 10 个连续试次,每试次静态呈递目标视角或干扰物 500–800 ms,猕猴在 1500 ms 反应窗内按杆判定(右杆代表目标,左杆代表干扰物),典型反应时间在 1000 ms 以内。记录阶段测试 30 个间隔 10° 的目标旋转视角与 60–120 个干扰物,共分为 60 个时长约 25 s 的观察段。统计采用非参数 Walsh 检验(两相关样本,单尾,α=0.011,n=10 次重复呈递),其检验效能约为参数 t 检验(α=0.05)的 98%;视角不敏感细胞的统计判定标准为“最差目标视角的放电率仍显著高于最佳干扰物(α=0.05)”。
主要结果
-
视角选择性可经由经验训练产生。共记录到 970 个 IT 皮层神经元:其中 82%(796/970)表现出视觉刺激驱动反应,18% 未被所测刺激激活;在有反应的细胞中,1.6%(13/796)表现为刺激诱发的放电抑制(其中 3 个单元对包括注视点在内的所有视觉刺激完全停止发放);21.2%(169/796)对线状物体表现出类别优先响应,7.3%(58/796)仅对球形体响应,0.37%(3/796)对特定物体的任意视角均有稳定响应。在反应性神经元中,11.6%(93/796)对某个已知目标物体的特定视角子集呈现选择性发放,且对干扰物基本无反应;按照“最佳视角 ±2 个标准差内的目标视角响应显著高于一切干扰物”的判据,61 个细胞(7.66%)被确认为针对单个或两个视角的调谐单元。示例细胞(图 2)对目标某特定视角放电最强,偏离该视角时响应平滑衰减,泛化调谐宽度约为 ±36°;面对 60 个干扰物中的 20 个对照样本(图 2b)几乎完全不放电,尽管干扰物 18、25、44、49、50 同样包含了目标零视角上显著的倒“V”形局部结构(图中标出),该现象排除了单纯“局部简单特征检测”的假设。球形体物体的测试中同样观察到这一规律(图 3):示例细胞的最佳响应视角位于基准视角旁 72° 处,引起显著放电的视角均包含一个由两个凹坑和一个突起构成的局部构型,但带有相似构型的干扰物 12 与 14 却完全无法激活该神经元。
-
视角调谐半宽约为 ±29°,且未受到学习相旋转振荡的展宽影响。高斯拟合所得的标准差(即调谐宽度)平均值在线状物体组为 28.87°,在球形体组为 29.12°。三项实验证据表明学习相中 ±15°、0.67 Hz 的旋转运动并未导致神经调谐被动展宽:在学习相仅呈现静态视角时,细胞调谐宽度保持不变;围绕垂直轴旋转与其他任意旋转轴所测得的调谐宽度相同(尽管往复运动仅在垂直轴进行);围绕任意测试视角测得的调谐宽度与围绕初始训练视角的调谐宽度高度一致(图 5a 与 5b 对比)。
-
同一物体的不同视角由异质性细胞群分别覆盖,少数细胞呈现双峰调谐,极少数表现为视角不敏感。在 61 个视角选择性细胞中,有 5 个(8.1%)对相隔 180° 的两个“拟镜像对称”视角呈现最大放电(图 4b)——由于自遮挡效应极小,这类特定线状物体的 0° 视角与 180° 视角呈几何镜像关系,猕猴的行为辨识准确率也呈现出平行的双峰模式。针对训练中反复辨识达到行为全视角恒常性的 5 个物体,记录到了多个分别对应同一物体不同视角的神经元(图 5a–d,单元 459、461、520、550 均记录自动物 S5396);同时观察到极个别细胞对已知物体的所有测试视角响应幅度相近,且均显著高于全部 120 个干扰物(图 5e),体现出视角不变性表征。在几何仿射变换测试方面:系统测试了 61 个视角选择性细胞中的 9 个,其放电特性在图像缩放变换下保持稳定(图 6,视角张角 1°–6° 范围内放电幅度基本恒定);对小于 2° 的平移具备不变性,但偏心距进一步增大时响应显著衰减(图 7,同一细胞在 7.5° 偏心位置时,除短暂的起始瞬态爆发外基本回落至基线水平);图 8 所示细胞则在 1.9°–5.6° 的尺寸范围及 3.15° 偏心范围内均保持稳定响应(对最佳视角的放电强度约为最佳干扰物的 3.5 倍,外周偏心呈递时的目标响应依然达到中央凹干扰物响应的 2 倍以上);在 9 个接受系统测试的细胞中,6 个仅具备缩放不变性,3 个同时兼具缩放与位置不变性。总体而言,IT 神经元的位置不变性分布较宽,从受到小于 2° 平移即显著衰减,到偏心 7.5° 仍维持稳定不等。
-
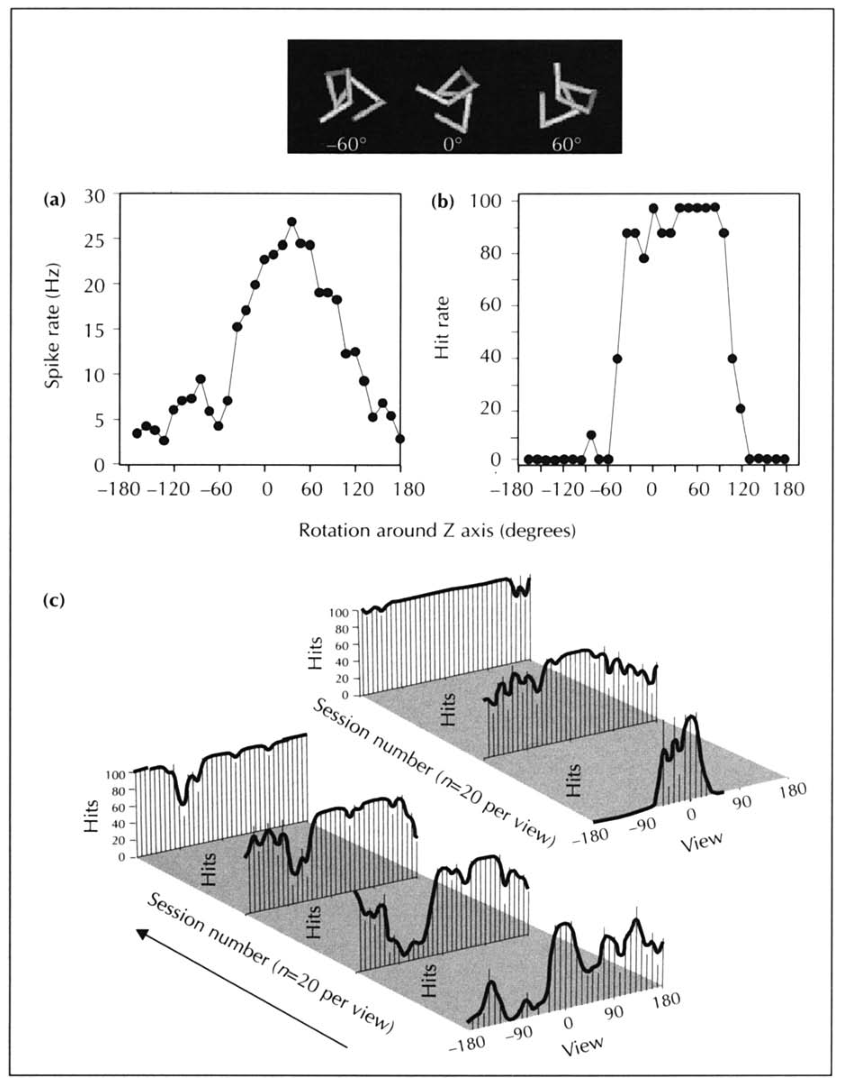
像平面旋转测试:神经发放与行为辨识均表现出朝向依赖,但行为表现可自发改善。对 11 个细胞进行了像平面旋转测试,其中 73%(8/11)的放电幅度随旋转朝向变化(图 9a),仅 1 个细胞呈现像平面旋转无关;在测试初期,猕猴的行为辨别率同样严格依赖朝向(图 9b),且神经与行为层面的泛化调谐宽度均宽于深度轴旋转。在完全不给予正确性反馈的条件下,猕猴对像平面旋转视角的辨识率在数个测试单元内迅速提升并达到视角无关(图 9c);与此形成对照的是,绕三维深度轴旋转的视角依赖性在历经 15 个测试单元后仍保持相对稳定。
-
神经响应分布与个体的训练历史密切相关,且非简单的整体熟悉度或唤醒效应。两只猕猴的训练背景不同:S5396 主要接受线状物体训练(756,600 次总试次中包含 682,000 次线状物体训练,掌握 125 个线状物体,能全视角辨认 34 个线状物体与 2 个球形体物体);B63A 则接受两类物体的混合训练(1,154,400 次总试次中 715,200 次为线状物体,能辨认 35 个线状物体与 8 个球形体物体)。电生理结果显示,偏好线状物体的神经元在 S5396 中占比 78.6%(133/169),在 B63A 中为 21.4%;偏好球形体的细胞占比在两只动物中分别为 32.7%(19/58)与 67.3%(39/58),神经元响应类别的分布差异与个体的训练经历严格对应。此外,对于动物行为上已实现全视角辨认的物体,绝大多数细胞依然仅对特定视角子集放电,说明记录到的神经活动反映的是特异性习得的视角表征,而非宽泛的非特异性熟悉感。
图注解读
图 1 · 两种行为任务
原文图注:Fig. 1. (a) Fixation task. The monkey fixated on a small blue spot for a period of 10-15 seconds, and responded to color changes by pressing the right lever for a blue-to-red and the left lever for a blue-to-green change. Cell responses to different patterns could be examined by presenting the stimuli anywhere on the screen. (b) Recognition task (see text).
(a) 为简单注视任务:猕猴需注视中心蓝点 10–15 s,当蓝点变红时按压右杆、变绿时按压左杆,视觉刺激可呈现在屏幕任意空间位置,用于系统测量神经元感受野边界、尺寸缩放与空间平移容忍度;(b) 为物体识别任务的时间流程:学习相呈现伴随轴向微幅振荡的目标视角,测试相连续呈递目标或干扰物视角,动物需在反应窗内通过按杆二选一作出判断。两项任务将神经感受野的精细参数调控与行为辨识状态有机结合,确保在电生理记录过程中动物确实处于物体识别的认知状态。
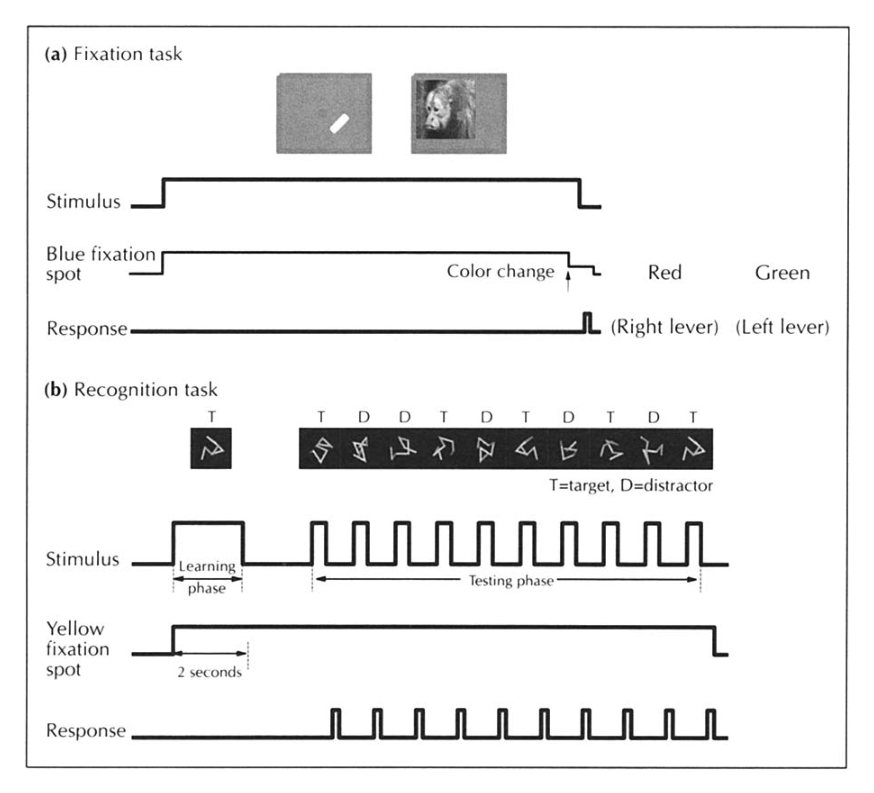
图 2 · 线状物体的视角调谐细胞
原文图注:Fig. 2. View-selective response of an IT neuron to a wire-like object. Peristimulus histograms (PSTHs) show the activity of a view-selec-tive neuron when (a) the target or (b) distractors were presented. The ordinate and abscissa, labeled in (a), are the same for both sets of histograms. The insets show the target views and the distractors. Each distractor view was of a different object. Both targets and distrac-tors were of the same size - apparent size differences are merely the result of scaling the drawings. The boxed plot is the zero view, presented in the learning phase. Note that the activity of the neuron for a given target view is well above that for distractors up to ± 360 from the preferred view, defining the generalization field of the neuron. The dashed circles in (a) (00 view) and in (b) (distractors 18, 25, 44, 49, 50) serve to highlight one of the features, an inverted 'V', which all of these images have in common (see text).
(a) 展示了该神经元对目标物体各测试视角(以 10° 为步长,方框标识学习相呈现的零视角)的刺激后时间直方图(PSTH),(b) 为对 60 个干扰物中 20 个样本的放电直方图;两组图共用坐标标度(纵轴为放电率,横轴为时间轴),插图给出了对应的刺激图像投影。该细胞放电在最佳视角达到峰值,随视角偏离平滑下降,有效泛化场约为 ±36°;干扰物 18、25、44、49、50 虽与目标基准视角共享倒“V”形局部线段特征(虚线圆圈标识),但未能引发显著放电,表明该细胞响应依赖整体构型而非局部孤立特征。
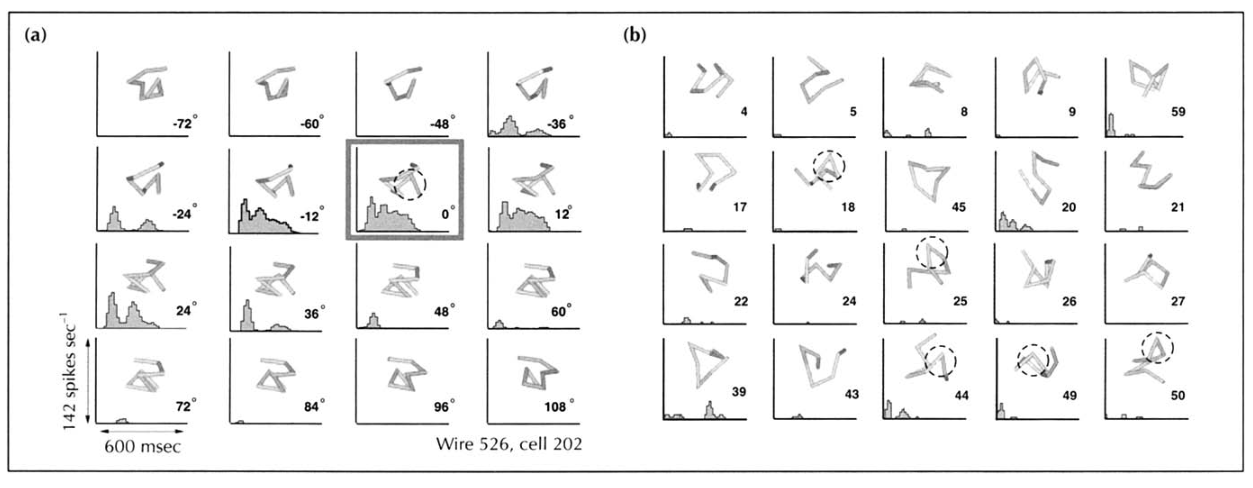
图 3 · 球形体物体的视角调谐细胞
原文图注:Fig. 3. View-selective response of a neuron for a spheroidal object. (Conventions as in Fig. 2.)
绘图规范与图 2 一致,刺激对象替换为表面具有凹凸形态的球形体物体。该细胞的最佳响应视角位于基准视角旁 72° 处,放电率随视角双向偏离对称衰减;引发显著响应的目标视角均包含两个凹坑与一个突起构成的局部构型(72° 视角处标出),但含有类似局部形态特征的干扰物 12 与 14 均未引起显著激活。这一结果表明视角特异性调谐同样存在于非线状的复杂曲面物体中,进一步排除了局部基元检测的替代假说。
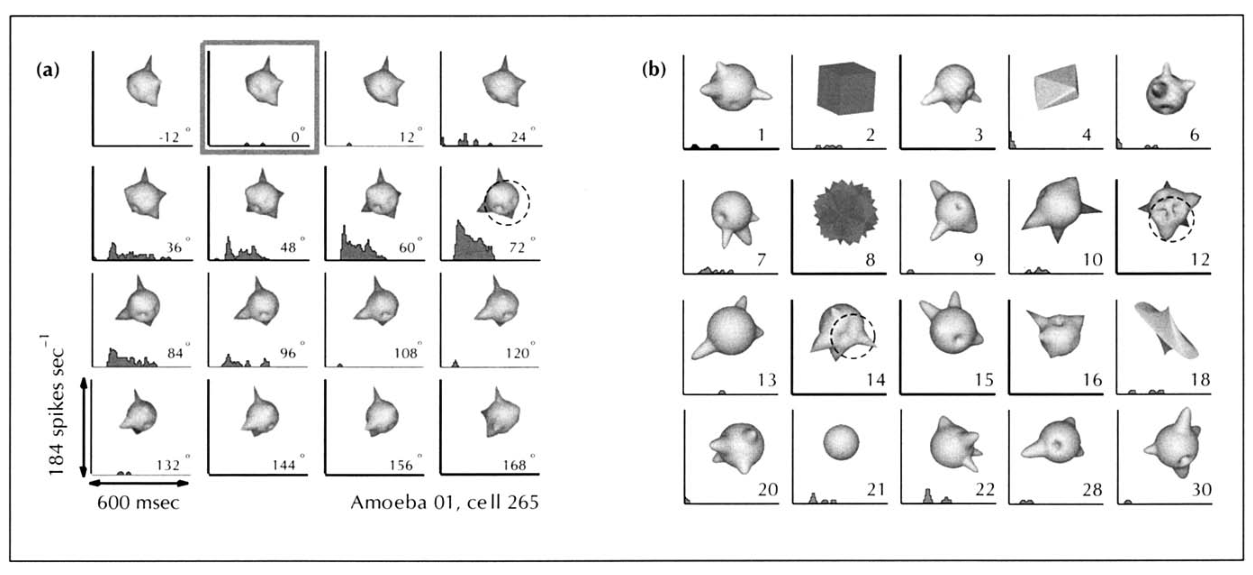
图 4 · 全深度旋转的三维响应面与拟镜像双峰调谐
原文图注:Fig. 4. (a) Response of a view-selective neuron to rotations around the preferred view along four axes. The z dimension of the plot is the spike rate, and the x and y dimensions show the degrees of rotation of the target object around either or both of the X or Y axes, respectively. The volume was generated by testing the cell's response for rotations out to ± 60 around the X and Y axes as well as along the two diagonals. The magnitude of response declined by approximately the same extent for rotations away from 0° along all of the axes tested. The activity of the neuron for the 60 distractors is shown in the inset box. Each distractor was a view of a different wire object. (b) Response of a neuron selective for pseudo-mirror-symmetric views, 180° apart, of a wire-like object. The filled circles are the mean spike rates for target views around one axis of rotation. The black line is the view-tuning curve obtained by 'distance-weighted least squares' (DWLS) smoothing. The two inset images depict the -120 and 60 views, around both of which the neuron showed view-selective tuning. The activity of the neuron for the 60 different distractor objects used during testing is shown in the inset box.
(a) 为三维响应曲面:z 轴表示放电率,x 轴与 y 轴分别表示物体沿 X 轴、Y 轴(及两条对角线轴)的旋转角度,测试范围达到 ±60°;响应曲面以 0° 视角为中心呈大致各向同性的圆丘状衰减,证实视角泛化场在三维视角空间内呈对称分布;(b) 展示了拟镜像双峰调谐特性:实心圆点代表单轴旋转下各视角的平均放电率,黑色实线为距离加权最小二乘(DWLS)平滑曲线,两个放电峰值分别位于相隔 180° 的 -120° 与 60° 视角,与线状物体在特定朝向下的镜像对称投影及猕猴的行为双峰表现一致。
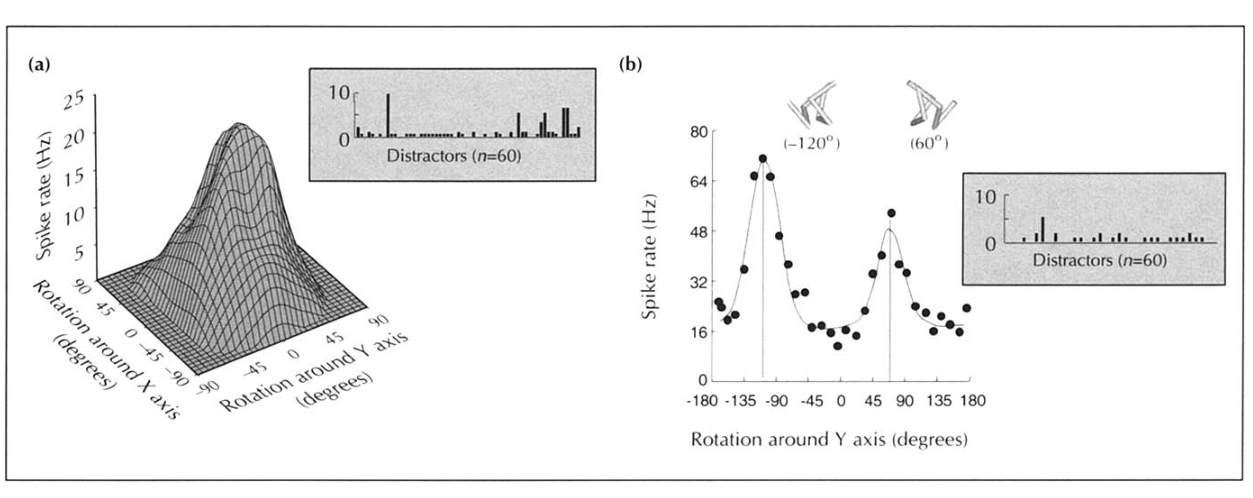
图 5 · 同一物体的多视角细胞群与视角无关细胞
原文图注:Fig. 5. (a-d). View-selective responses of four different neurons (459, 461, 520 and 550) tuned to different views of the same wire object. All data come from the same animal (S5396). The filled circles are the mean spike rates (n=10), and the thin black lines DWLS-smoothed view-tuning curves. The thick gray lines are a non-linear approximation (using the Quasi-Newton proce-dure) of the data with the function R(O)=N= 1 ciexp(- 11 -e, 11 2/2r)+Ro; where ci is the scaling factor for the Gaussian curve, is the test view, is the template view, R is an offset that represents the background activity of the cell, ar is the standard deviation of the Gaussian curve and N=1 or 2. (e) An example of a neuron showing a view-invariant response to a known wire object. The behavioral perfor-mance of the monkey for this object was view-independent because it had been used as a training object (see text). The insets in (a) through (e) show the average activity of the neuron to each of the 60 or 120 different distractors used during testing.
(a)–(d) 展示了在同一只猕猴(S5396)中记录到的针对同一线状物体的四个不同神经元响应:实心圆点为各视角的平均放电率(n=10),细黑线为 DWLS 平滑曲线,粗灰线为拟牛顿法拟合的高斯函数曲线 R(θ)=Σ cᵢ·exp(-‖θ-θᵢ‖²/2σ²)+R₀(其中 cᵢ 为幅度因子,θᵢ 为模板视角,σ 为调谐宽度,R₀ 为自发背景放电水平);四个单元的最佳响应视角分别落在同一物体的不同朝向上,直观呈现了多神经元集群分工覆盖三维物体的编码方式。(e) 则给出了对照范例:该神经元对目标物体的所有测试视角均维持相近的高放电率,且对全部 120 个干扰物的反应均显著微弱,表现出视角无关的表征特性。
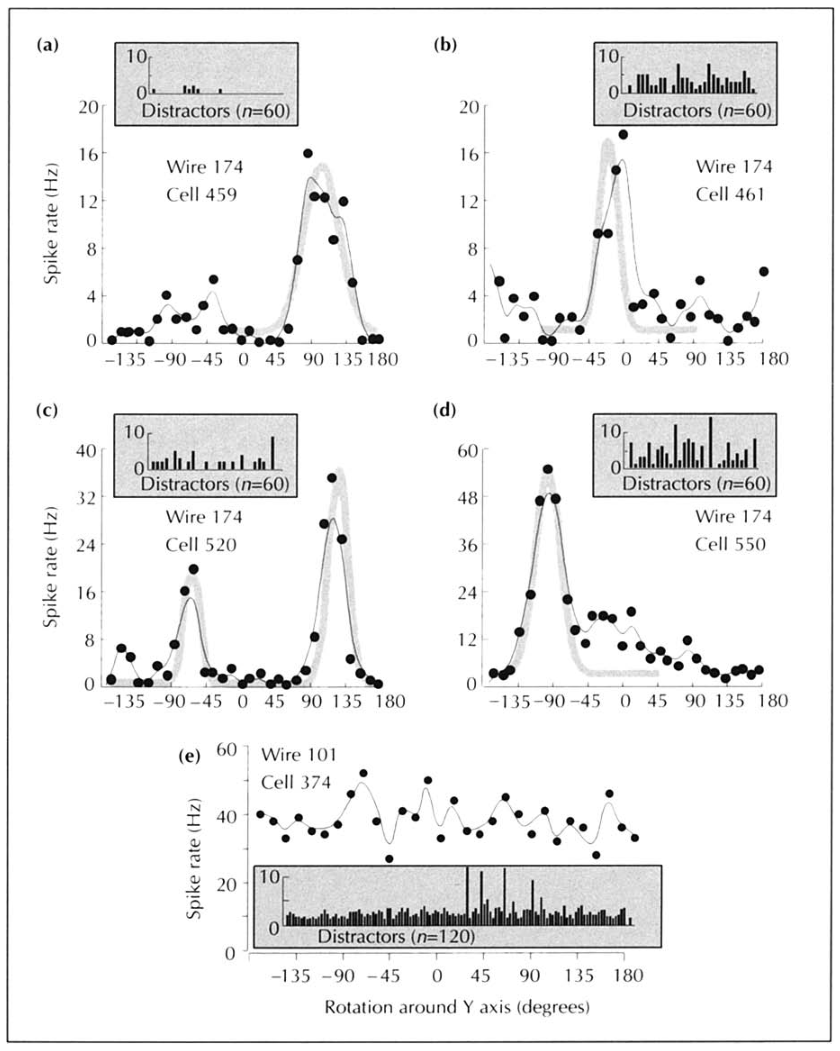
图 6 · 对物体大小变化的不变性
原文图注:Fig. 6. Response-invariance of a view-tuned neuron to changes in object size. The monkey was performing a simple fixation task in which each trial lasted 2 500 msec. PSTHs show the activity of the neuron over the course of a trial. The ordinate is the mean spike rate and the abscissa is time. The animal fixated without a stimulus for the first 500 msec, at which point a stimulus would appear (indicated by the dashed line), and the animal continued to fixate for 2 000 msec, responding to a change in fixation spot color at the end of the trial. Each stimulus is shown to the side of its respective histogram. The circled stimulus is the one used for testing view selectivity. The relative size of each stimulus with respect to the standard object is represented by x.
在单试次时长 2500 ms 的注视任务中:前 500 ms 仅呈递中央注视点(虚线指示刺激呈现时刻),随后刺激持续呈递 2000 ms,试次结束时猕猴根据注视点颜色转变完成按键反应。每个直方图旁标注了对应尺寸的测试刺激(圆圈标识用于测定基准视角选择性的标准物体,x 表示相对标准物体的放大倍数)。在 1° 至 6° 视角张角范围内,神经元 PSTH 的峰值放电率与瞬态波形基本保持恒定,证实了部分视角调谐神经元对尺度缩放具备不变性。
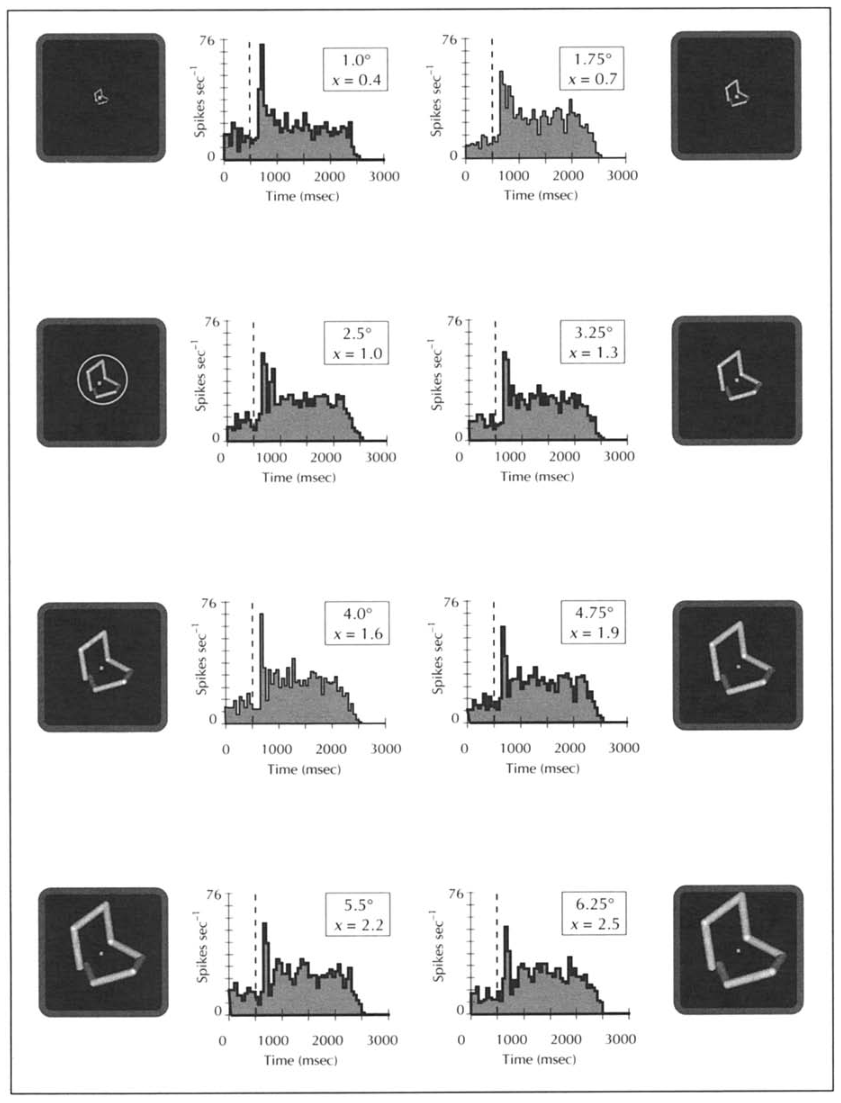
图 7 · 对像平面平移的不变性及其边界
原文图注:Fig. 7. Responses to translation of an object in the picture plane. The data are for the same cell as in Fig. 6. The activity of the neuron for the default wire object presented foveally (shown in Fig. 6) is represented here by the black histogram in the background of each plot. The gray PSTHs show the activity of the cell for the eight positions tested. In each case, the center of the wire was translated 7.5° from the central fixation spot. Other than a short transient burst of activity, cell activity is barely distinguishable from the baseline when the stimulus is presented at each of the eccentric positions. For smaller translations (less than 2), however, no such position dependency was observed.
该记录来自图 6 对应的同一神经元:背景中的黑色直方图代表目标物体在中央凹呈现时的放电曲线,灰色直方图显示将物体中心向 8 个外周方向平移 7.5° 偏心距时的反应。在 7.5° 偏心位置,除刺激呈现初期极短暂的瞬态发放外,持续期的神经活动与自发基线无异;但在小于 2° 的微小位移范围内,放电率并未出现明显的位置依赖性,说明视角样板细胞的位置容忍度存在空间尺度边界。
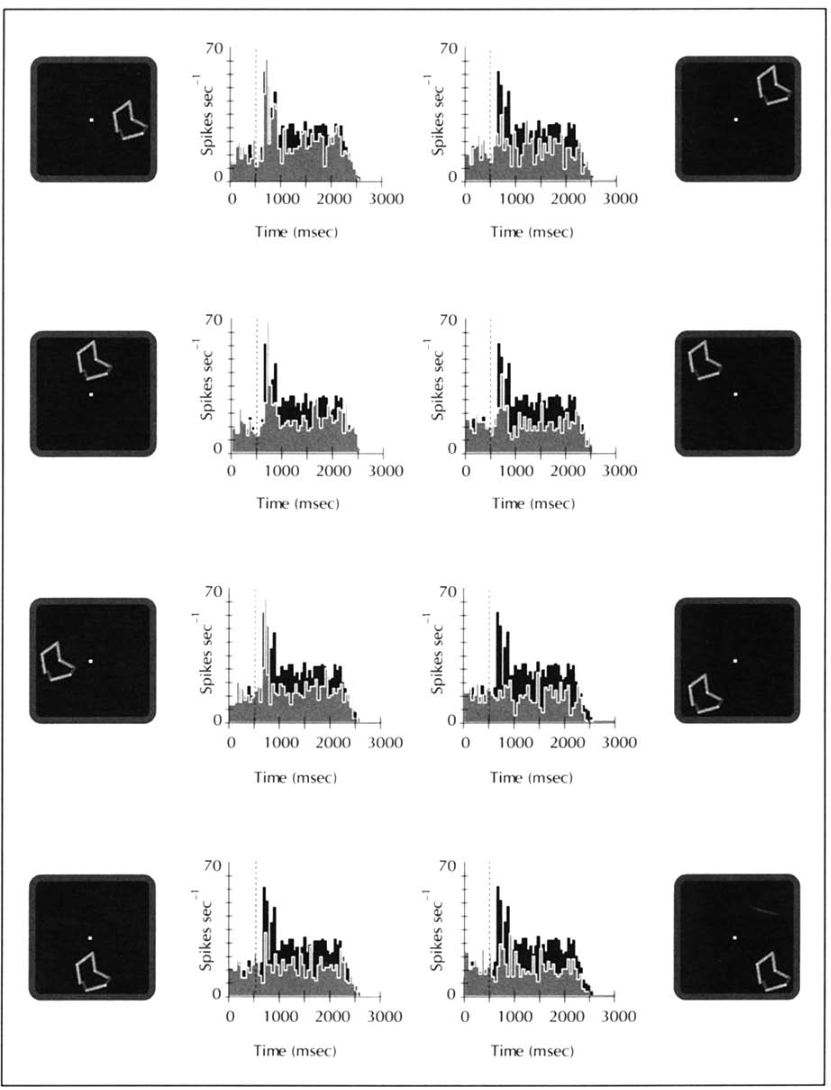
图 8 · 同时对大小与位置不变的视角选择性细胞
原文图注:Fig. 8. A view-selective neuron responding invariantly to changes in size and position. (a) Tuning curve showing activity of the neuron for a limited number of views of the object. The preferred view corresponds to a 120° rotation of the object around the Y axis. (b) The responses of the cell for the ten best distractors. Distractors were always presented foveally, and at the default size. The best target view was used to examine the cell's response to changes in size (c) and position (d). The response of the cell is plotted in both graphs as a ratio of the mean spike rate for a target view to the mean of the mean firing rates for the top ten distractors. The bar representing the response to the default size is indicated by the asterisk in (c). The smallest stimulus, subtending 1.90 of visual angle was used to test responses to changes in position. In (d), the abscissa of the graph indicates the position of each test image in terms of its azimuth and elevation.
数据采自物体识别任务。(a) 为该单元的视角调谐曲线,其最佳视角对应围绕 Y 轴旋转 120°;(b) 为前 10 个最强干扰物的平均放电水平(均在中央凹以标准尺寸呈递),最佳视角响应约为最佳干扰物的 3.5 倍;(c) 与 (d) 将神经反应标准化为“目标视角平均放电率 / 前 10 个干扰物放电均值”的比值:c 为不同呈现尺寸(星号标识默认基准尺寸,最小视角为 1.9°),d 为方位角与仰角平面内的不同空间偏心位点(偏心距为 3.15°)。在各测试尺寸及空间位置下,该比值均维持在较高水平,表明特定视角选择性细胞可同时在一定范围内容忍尺寸与空间位置的变化。
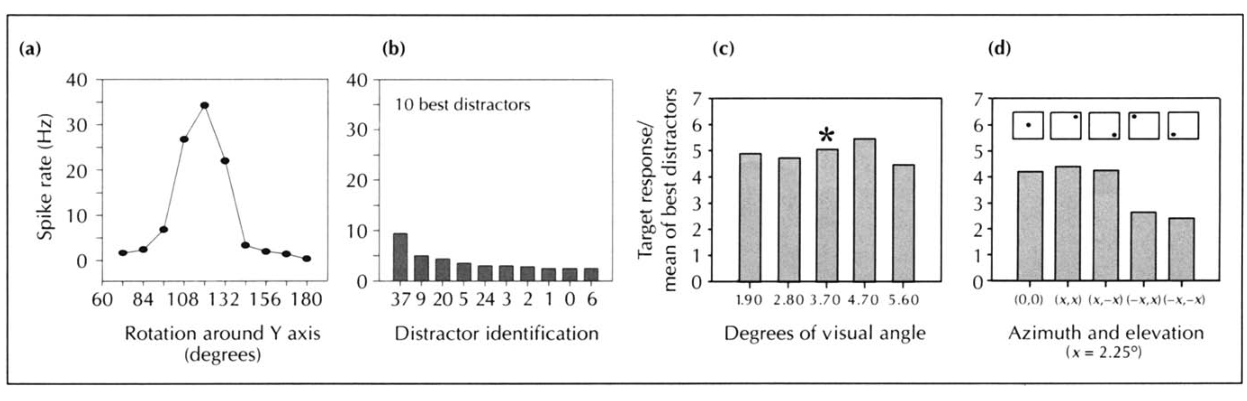
图 9 · 像平面旋转:神经调谐、行为依赖与自发改善
原文图注:Fig. 9. View-dependent behavioral per-formance and view-selective neuronal response for an image rotated in the picture plane. The animal was familiar-ized with the zero view of the object during one brief training session prior to testing. No feedback was given dur-ing the testing periods as to the correctness of the response. (a) The plot depicts the view-tuning curve of the neuron in terms of mean spike rate. (b) Performance of the animal in terms of hit rate (n=10 trials per view). (c) Improvement of performance for recog-nition of views resulting from view-plane rotations. The x axis is rotation angle, the y axis increasing session number, and the z axis hit rate. One test session included ten presentations of each target view, thirty-six in all, spaced at ten degree intervals. Each curve, starting in the front and proceeding to the back, illustrates the performance over two test sessions (a total of n=20 presentations of each target view).
猕猴在测试前仅通过简短训练熟悉基准视角,测试期不提供反馈。(a) 为神经元的像平面旋转调谐曲线(平均放电率),随旋转朝向呈现单峰依赖;(b) 为猕猴在该物体上的识别命中率(每视角 10 次试次),同样表现出朝向依赖性;(c) 展示了识别行为随测试单元推进的三维动态轨迹:x 轴为旋转角度(36 个测试视角,间隔 10°),y 轴为测试单元推进顺序,z 轴为识别命中率,每条曲线对应两个连续测试单元(累计每视角 20 次呈递)。结果表明神经调谐曲线与行为识别曲线具有相似形态,且像平面旋转的识别能力在无外部奖惩反馈的条件下即可随重复暴露自发泛化。
讨论
本研究的结论要点体现在三个方面:
第一,实验证明了 IT 皮层神经元的表征特性具有经验依赖的可塑性。即使面对对动物毫无先验生态意义、亦无自然界既有参照的人造三维几何体,系统的辨别与识别训练同样能诱导产生精细的构型选择性;当动物仅能从特定视角识别物体时,未习得的视角方向上从未检测到特异性放电,表明神经选择性与行为识别能力存在严格对应。
第二,针对“细胞放电究竟反映了视角表征还是降维后的简化特征组合”这一质询,作者提出了两项反驳依据:其一,这些视角选择性细胞对不同朝向的简单几何图案均不产生反应;其二,同类内共享大量局部特征(如线段朝向、交角、端点)的 60–120 个干扰物未能有效激活细胞。不过作者也指出,这两点属于定性观察,视角选择性理论上仍可能源自对若干中等复杂度特征组合的调谐,这一机制有待后续严谨的数学模型分析。
第三,实验数据与基于视角的理论构想相契合。多数 IT 神经元的放电率表现为围绕特定视角的钟形调谐函数,可视为一种“带有局部容忍度的视角样板”;拟镜像双峰调谐则代表了另一种维度的泛化形式,与人类心理物理学中的镜像对称恒常性一致;此外,不同细胞在尺度缩放与平移变换上的容忍度呈现异质性分布,支持多层或分级前馈网络的表征机制。作者强调,这一模型省去了前额叶等区域参与的自上而下注意与反馈调节,实际大脑中的表征形式可能是局部显式编码与分布式隐式编码的混合体;对于形态复杂的物体,以不同图像变换容忍度为特征的视角特异性神经元,构成了高阶视觉系统实现三维物体恒常性识别的重要神经构件。
一句话总结
本研究将心理物理学中的“视角依赖识别”推进到了单细胞电生理层面,证实一组各覆盖特定视角邻域、兼具局部尺度与位置恒常性的样板神经元,构成了灵长类下颞叶皮层编码三维物体的重要神经机制。