这是一篇综述(本期专题的一部分),作者系统梳理了当时已知的猕猴下颞叶(inferior temporal, IT)皮层的行为、电生理与解剖发育证据,并在此基础上提出未来研究的路线图。它值得读,因为文章把一组看似矛盾的发现拼成了清晰的问题:IT 的基本反应性质在出生后六周就很"成人化",但它的信号强度、连接精细化和对行为的功能贡献却要拖到一岁以后——"预先布线"与"长期成熟"并行,这个框架至今仍是发育高级视觉皮层研究的基本张力。
研究背景
IT 皮层(本文中与细胞构筑区 TE 同义,其后方的 TEO/PIT 部分仅在注明处涉及)占据下颞回及上颞沟下岸的邻近部分,是"高阶"视觉皮层。其成人的功能地位早有共识:损伤该区(或人类同等皮层)会在没有纯感觉缺陷的情况下损害对熟悉物体的识别和新物体的学习;其细胞常对特定物体或物体类别优先放电,偶尔对个别图像(包括面孔甚至特定面孔朝向)高度选择;近年大量实验还表明 IT 细胞具有相当的可塑性,并携带关于刺激新近性与熟悉性的明确信息——即视觉记忆痕迹。可以说 IT 是视觉认知机制研究的核心地带。
然而与纹状皮层(Hubel 与 Wiesel 的经典发育研究开始得极早)和额叶皮层(早期损伤研究影响深远)相比,IT 的发育研究少得不成比例。文章要填补的就是这个缺口:IT 的那些标志性质——形状选择性、大而双侧的感受野、面孔偏好——究竟是天生就有的,还是需要长期特定视觉经验或神经成熟才获得的?当时的已知拼图是:婴儿猕猴早期的模式识别行为呈"原始能力起步、长期渐进成熟"的样态(颜色辨别 10 天、简单形状辨别 3 周可解决,但更复杂的延迟非匹配取样任务 DNMS 直到约 4 个月才开始、2 岁才到成人水平);新生期 IT 损伤对识别行为影响很小,而成人同等损伤影响显著。缺口在于:这些行为层面的"延迟"到底是 IT 神经元反应性质不成熟造成的,还是另有原因——这正是作者自己的电生理与解剖数据要回答的。
研究思路
本文的总体策略是"三线合围"。第一条线是行为:梳理婴儿猕猴在偏好注视(preferential viewing)、操作性辨别和 DNMS 等任务上的发育时间表,以及新生期 IT 损伤的后果,用以划定"IT 到底何时开始被行为征用"这个宏观边界。第二条线是电生理:比较 5 周到 7 个月婴儿与成人 IT 细胞在清醒行为态和麻醉态下的反应性质——反应发生率、感受野、刺激选择性、反应强度与潜伏期——直接检验"标志性质是否天生"。第三条线是解剖:用逆向示踪剂(retrograde tracer,WGA-HRP 或霍乱毒素 B 亚基)注射到婴儿(2–18 周)与成人 IT,比较其皮层、皮层下与半球间连接的图式是否成熟。三条线各自得出的时间表可以互相校对:如果行为延迟、而生理性质早已成人化,那么"延迟"的源头就要到信号强度或连接模式里去找。
这个设计的巧思在于麻醉处理成了一道天然对照:作者发现麻醉在 4 个月前几乎完全压制 IT 的视觉驱动活动(而其他视觉区不受影响),清醒态记录因此成为婴儿 IT 反应性质的关键证据来源,两种记录状态并行的做法为"性质 vs 强度"的分离提供了杠杆。
方法
行为部分是文献综述(Zimmermann 1961、Harlow et al. 1960、Fantz 范式改造、Bachevalier 与 Mishkin 系列、早期损伤研究等),无新实验。生理部分来自作者实验室:对 5 周–7 个月大的婴儿猕猴做 IT 单细胞记录,方法由成人 IT 记录规程改造(Rodman, 1991),在两种状态下进行——清醒行为态(动物做注视任务时)和麻醉态;成人对照数据取自文献(Gross et al., 1979; Richmond et al., 1983)及自己的样本。刺激为投影到屏幕上的黑白(傅里叶描述子/Fourier descriptor, FD 刺激及线条)或彩色图像,在中央凹处张角 3–6°;分析上用重复测量方差分析(repeated-measures ANOVA)对每个反应性细胞的跨刺激反应量算 F 值,比较婴儿与成人样本的 F 分布以量化"整体选择程度"。解剖部分:向 8 只 2–18 周的婴儿和 3 只成人的前 IT 注射逆向示踪剂,比较标记细胞的分布(顺行标记用于看终止层);髓鞘化用髓鞘染色评估。文中还引了 2-脱氧葡萄糖代谢测定和毒蕈碱型胆碱受体结合的发育数据(Bachevalier 等)。
主要结果
-
行为:识别功能的发育出奇地漫长。偏好注视范式下,婴儿猕猴出生一个月内就对新奇图案有偏好,6 周以上者只需更短的熟悉时间即可表现出显著的新异偏好;操作性任务上 3–4 个月婴儿学习长串物体对辨别("视觉习惯")的速度几乎与成人一样快、甚至能容忍 24 小时的试验间延迟。但复杂识别任务 DNMS 4 个月前完全做不了,要到 2 岁才达成人水平——"习惯"早熟、"记忆"晚成,这条分界是全文的暗线。
-
新生期 IT 损伤几乎不留永久缺陷。出生第一个月内双侧 IT 损伤的猴子,10 个月时测 DNMS 正常,且数年后依然正常;偏好注视测得的识别能力也不受损;物体对辨别任务保留(仅雌性婴儿有一过性缺陷)。与额叶"长入式"缺陷(长到该用这块皮层时才显出障碍)不同,IT 的早期 spared 是持久的,提示其他结构能长期代偿。
-
电生理:基本性质惊人地早熟。清醒态下能被视觉驱动的 IT 细胞比例在婴儿与成人间无显著差异、在所测年龄窗内也无随年龄上升的趋势(图 2;婴儿样本为 4 只 4 个月以下动物的 93 个细胞加 1 只 6–7 个月动物的 18 个细胞)。麻醉下仔细测绘的感受野大而双侧:婴儿与成人的中位尺寸都约 20°见方,双侧野比例都约 65%(图 3)。刺激选择性同样成人化:婴儿 IT 中有一小部分细胞对面孔作为一类刺激有选择,个别细胞只对特定面孔朝向(如侧面像,图 4A)放电;对以边界曲率定义的形状(FD 刺激的频率调谐)的加工在婴儿与成人中比例相当(图 4B);也找到了对颜色、任意几何图案和特定三维物体有选择的细胞。整体选择程度的 F 值分布在婴儿与成人间无显著差异(图 5B),且两组中绝大多数细胞的 F 值本身高度显著——多数细胞都在为"物体身份"提供可分辨的反应模式。
-
电生理:信号强度是短板。尽管选择性成熟,婴儿 IT 细胞对各种刺激的反应一致地比成人弱(图 6A),且反应量与记录时的年龄无相关(作者样本多集中在 1.5–3.5 个月的窄窗内);视觉反应潜伏期更长、更不稳定。麻醉在约 4 个月前几乎完全抑制 IT 的视觉驱动活动——尽管其他视觉皮层区此时已有反应——4–7 个月间被驱动的情况也少于成人(图 6B);自发活动水平在麻醉态和清醒态下都低于成人(图 6C),提示这可能是婴儿皮层神经元普遍的膜性质而非 IT 特有。代谢数据与此吻合:视觉刺激下 IT 的代谢活动发育落后于更靠后的视觉区,约 4–6 个月才达成人水平;将“这与长潜伏期直接对应”修这可能与婴儿 IT 皮层较长的视觉反应潜伏期有关。
-
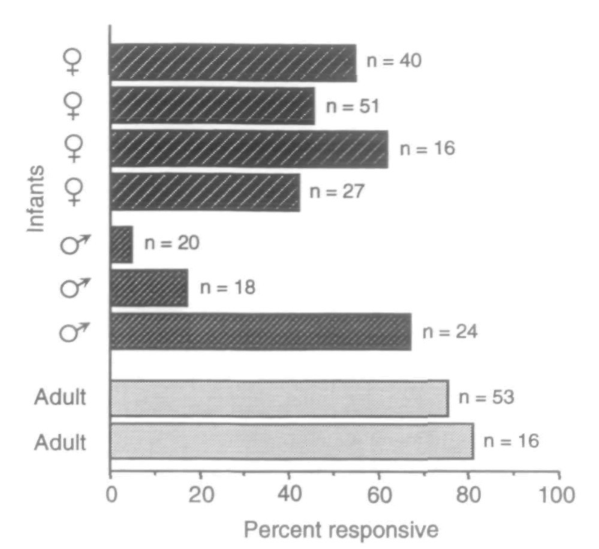
解剖:视觉输入早熟,"记忆-注意"连接晚熟。婴儿 IT 的枕颞视觉输入图式与成人基本一致(图 7、8),但出现一批成人没有的瞬时连接:来自脑岛、胼胝体上方的前扣带皮层、对侧额叶皮层的输入,以及 7 周以下来自对侧 IT 深层的比例更高的输入;同时 IT 对鼻周和海马旁皮层的输出比成人更广泛,TEO 在新生猴还有通往海马旁皮层的瞬时投射(图 9)。皮层下也有一批瞬时连接:TE 到上丘的广泛投射、到丘脑内侧背核和尾核尾部的投射增强、TEO 到杏仁核的扩展投射及来自外侧膝状体背层的增强输入。半球间纤维(胼胝体与前连合)在出生后 3–4 个月经历多余轴突的大规模回撤(LaMantia & Rakic, 1990),作者推测对侧额叶与对侧 IT 深层的瞬时连接正是在这一期被修剪掉的。此外,两性发育不同步:行为上雄性婴儿在物体对辨别上平均要晚几周,成绩与血浆睾酮水平紧密负相关、新生期性腺切除可把雄性提到雌性水平;麻醉态电生理上,4–7 个月的雌性婴儿反应率一致,雄性则波动大、三例中两例被大幅压制(图 10)。
图注解读
正文还引用了图 8(婴儿猴前颞叶与额叶冠状切面上逆向标记细胞的分布,三角形密度代表标记密度),但其图注未包含在元数据中,故本节仅解读元数据所列的 9 张图。
图 1 · 猕猴视觉区分布图
原文图注:Figure 1. Location of visual areas, including IT cortex {shaded area), shown on a lateral view of the macaque brain in which posterior sulci have been "opened up." FEF, frontal eye field; FST, fundus of the superior temporal sulcus visual area; LIP, lateral intraparietal area; MST, medial superior temporal area; MT, middle temporal area; PO, parieto-occipital area; STP, superior temporal polysensory area; VIP, ventral intraparietal area; VI, V2, V3, V3a, V4, V4t, visual areas 1, 2, 3, 3a, 4, and transitional 4, respectively, 46, cytoarchitectonic area 46.
这张定位图把 IT 皮层(阴影区)放在整个视觉皮层地图上:后部沟回被"展开"以便看清 V1 到 V4 的层级排布,IT 位于腹侧通路的终点附近,向前与 FEF(额叶眼区)等额叶区域毗邻。读图要点在于体会 IT 在解剖层级中的位置——它接收的是多级中转后的视觉信息,又紧邻与记忆、注意相关的区域,这正是下文"视觉输入早熟、额叶连接晚熟"对比的空间基础。
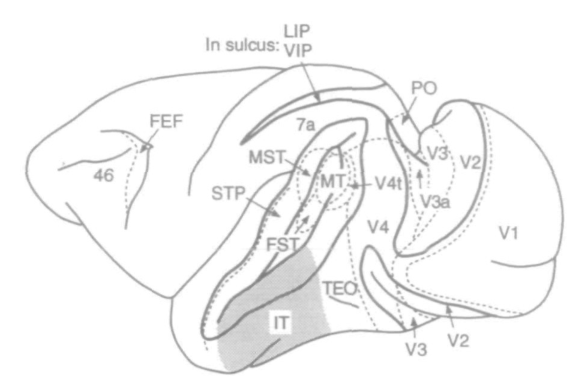
图 2 · 婴儿与成人 IT 视觉反应性细胞比例
原文图注:Figure 2. Incidence of visually responsive single neurons in IT cortex in awake infant and adult macaques performing a fixation task. Data are from, in a, Rodman et al. (1993b); b, Gross et al. (1979k and c, Richmond et al (1983). Infant sample was drawn from 93 IT neurons in four animals below 4 months of age and 18 neurons in one animal between 6 and 7 months at the time of recording.
三根柱分别给出三个样本中做注视任务的清醒动物里"有视觉反应"细胞的比例:a 为作者自己的婴儿样本,b、c 为两组成人文献数据。读图要点:三根柱几乎等高——能被视觉驱动的细胞比例在婴儿与成人之间没有显著差异,且婴儿样本内部(4 个月以下 vs 6–7 个月)也没有随年龄上升的趋势。这张图支撑结果第 3 条的前半句:IT"有多少细胞管视觉"这件事从出生起就是成人配置的。
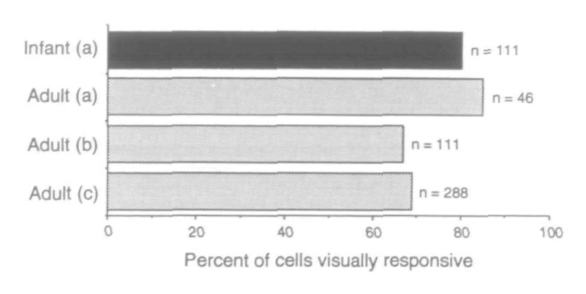
图 3 · 麻醉婴儿 IT 细胞的感受野测绘
原文图注:Figure 3. Receptive fields of IT cortex cells plotted in four electrode penetrations in anesthetized infant monkeys, c, contralateral visual field; ce, central sulcus; ci, cingulate sulcus; hm, horizontal meridian; /, ipsilateral visual field; la, lateral sulcus, ot occipitotemporal sulcus; rh, rhinal sulcus; Jt superior temporal sulcus; vm, vertical meridian. Adapted from Rodman et al. (1991).
四个电极穿刺通道中记录到的 IT 细胞感受野,叠画在以中央沟、外侧沟、鼻侧沟等脑沟为参照的视野坐标系上(c 为对侧野、i 为同侧野、hm 与 vm 为水平和垂直经线)。读图要点:每个野都横跨垂直经线两侧、覆盖中央凹且面积很大——这就是"大而双侧感受野"的直观形态。这一成年标志性质在麻醉的婴儿身上同样成立(婴儿与成人中位尺寸都约 20°见方、双侧比例都约 65%),支撑结果第 3 条。
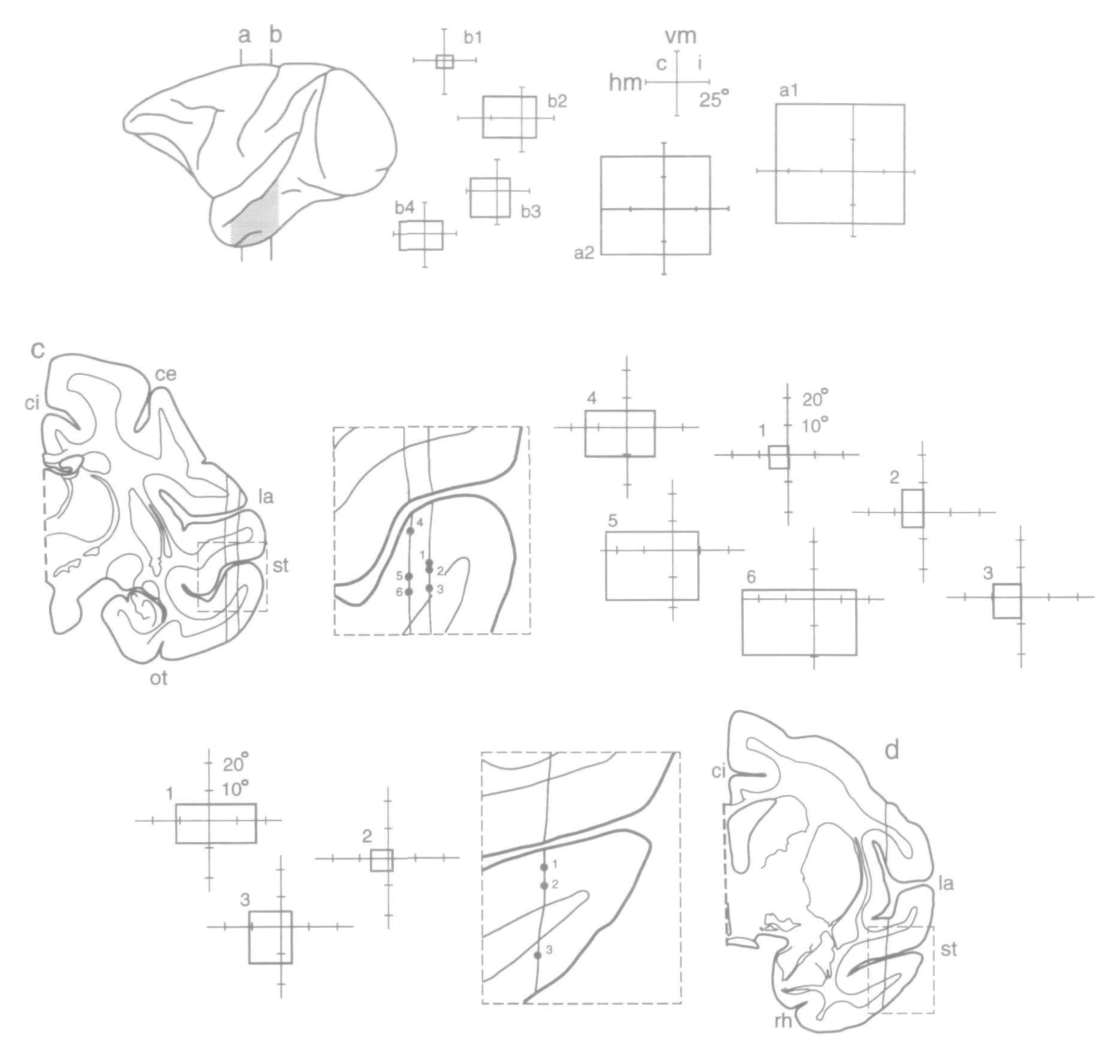
图 4 · 婴儿 IT 的形状选择性与曲率调谐
原文图注:figure 4. Responses of neurons in fT cortex. Stimuli were black and white (FDs, Gnes) or colored (all other stimuli) images projected onto a screen and subtended 3-6° at the fovea. A, Cell in IT cortex of a 3-month-old alert infant monkey that was selective for a particular profile view. For each stimulus, the arrow under the poststhnuius time histogram (PSTH) indicates die time at which the monkey fixated the central fixation spot, the horizontal line under the PSTH indicates the 500 msec period during which the stimulus was presented, and the vertical line in the raster diagram above each PSTH indicates the time of stimulus onset B, Examples of responses tuned to boundary curvature (FD frequency) in IT cortex of awake infant and adult macaques. Adapted from Rodman et al. (1993b).
A 栏是一只 3 个月大清醒婴儿的细胞对一组彩色图像(猴子侧脸 profile 1/2、威胁脸、打哈欠、打乱 scrambled 控制等)的栅格图加刺激后时间直方图(PSTH):每个 PSTH 下的箭头标注视时刻、横线标 500 ms 刺激呈现期、栅格中的竖线标刺激起始。读图要点:该细胞对某一张特定侧脸像放电最强、对打乱的同图或线段几乎不响应——"个别面孔朝向选择性"在 3 个月的婴儿 IT 中已存在。B 栏比较婴儿与成人细胞对边界曲率(FD 刺激的傅里叶描述子频率)的调谐曲线,两边的调谐样式与比例相似,支撑结果第 3 条中"形状加工成人化"的论断。
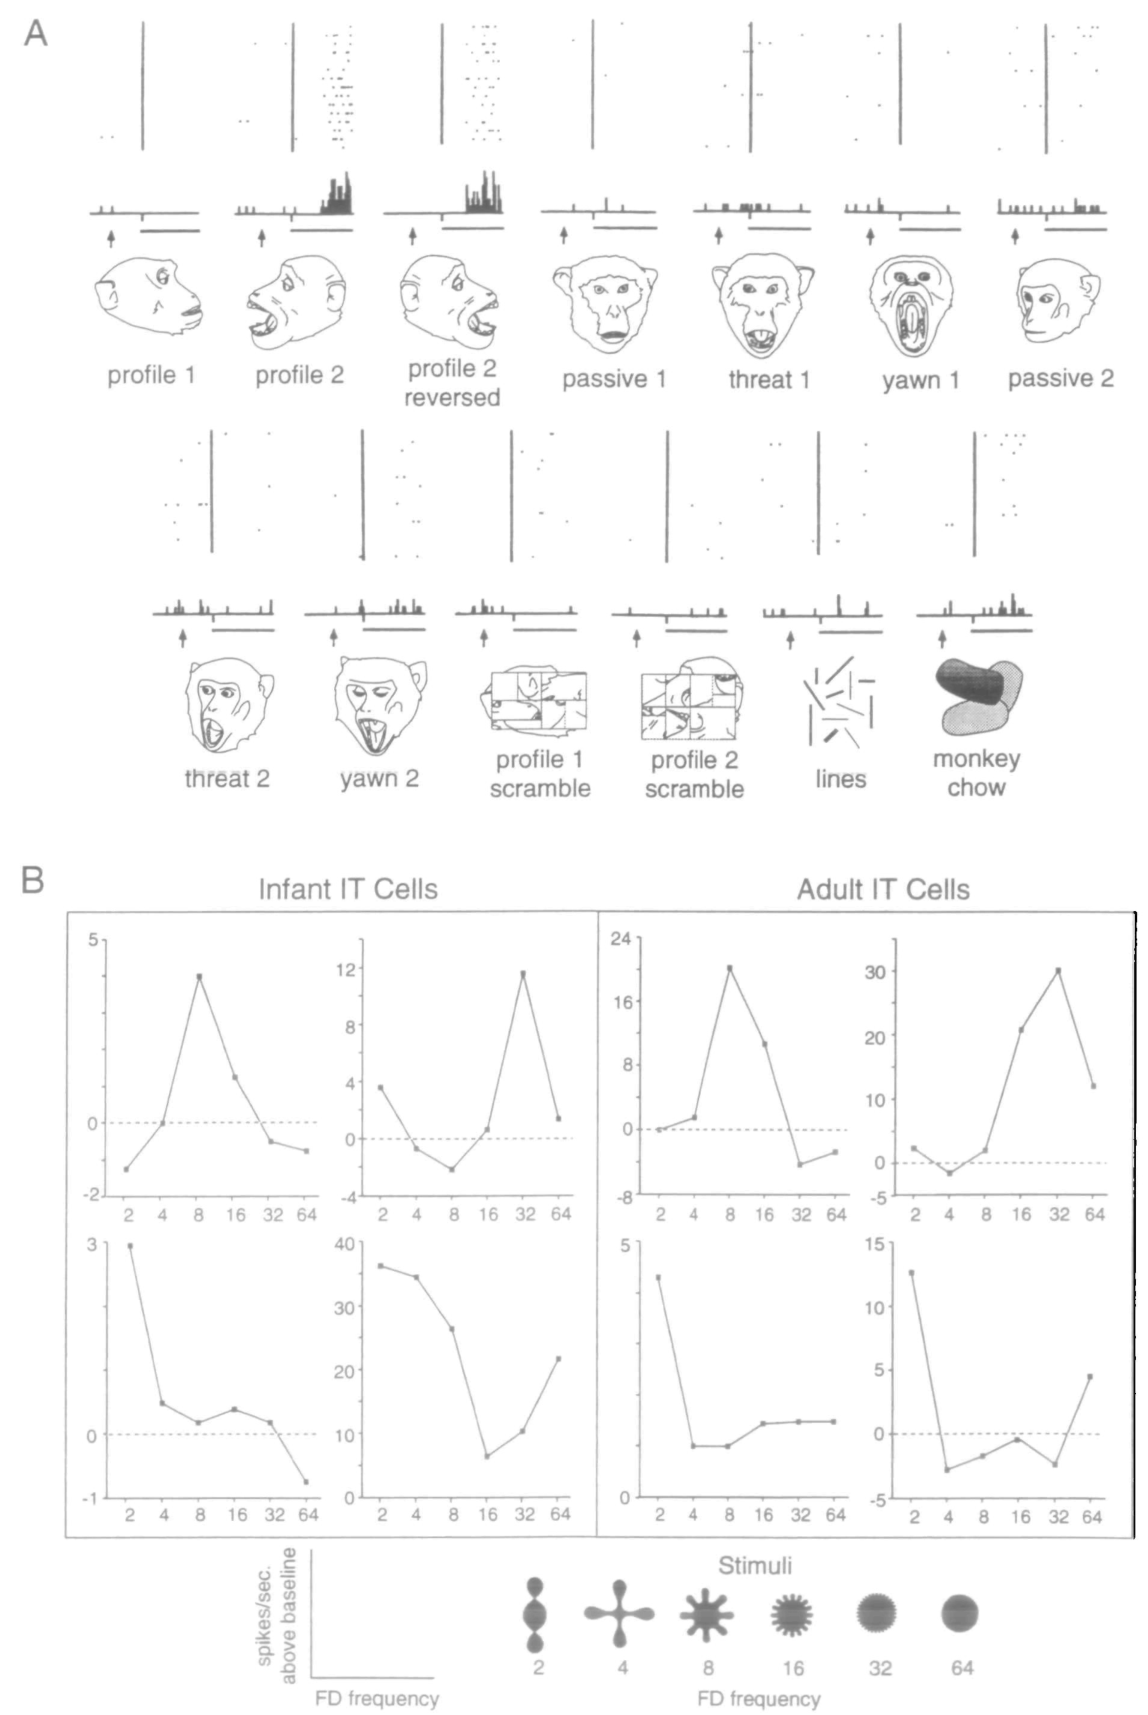
图 5 · 三个婴儿细胞的反应谱与整体选择度分布
原文图注:Figure 5. Patterns of selectivity of cells in FT cortex. A, Bar graphs illustrating responses to set of standard images (shown to the right) for three cells in infant IT cortex. Asterisks indicate statistically significant responses. Adapted from Rodman et al. (1991). B, Comparison of distributions of F ratios from repeated-measures AN OVA for each responsive IT cell in awake infant and adult monkeys. Adapted from Rodman et al. (1993b).
A 栏给三个婴儿细胞对同一套标准图像的响应柱状图(星号表示统计显著):有的细胞只对单一图像放电(顶与底),有的对多张但非全部图像响应(中),展示婴儿 IT 选择程度的个体差异谱。B 栏把每个反应性细胞跨刺激反应量做重复测量 ANOVA 得到的 F 值画成分布,婴儿(n=70)与成人(n=36)两条分布形状接近、无显著差异。读图要点:B 栏是对"婴儿 IT 的整体选择程度与成人相当"这一结论的直接统计检验,支撑结果第 3 条的总结句。
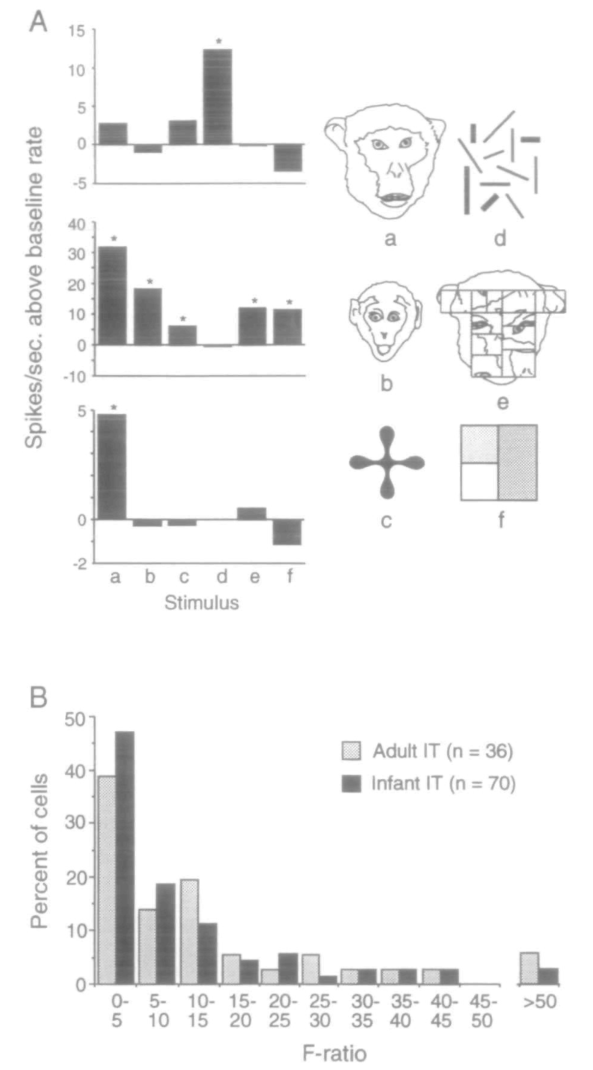
图 6 · 信号强度:反应量、麻醉敏感性、自发活动
原文图注:Figure 6. Signaling properties of IT cortex in infant monkeys. A Overall mean response magnitudes of samples of IT cells in awake infant and adult macaques to individual members of standard set of projected stimuli. B, Emergence of IT responses as a function of age under anesthesia. C, Mean spontaneous activity values of IT neurons in infant and adult macaques. A and B are adapted from Rodman et al. (1993b).
A 栏按刺激逐个比较清醒婴儿与成人细胞样本的平均反应量,婴儿各刺激上一致更低;B 栏画麻醉态下 IT 视觉反应出现率随周龄的变化(<4 个月、4–7 个月、成人三组柱),可见 4 个月前几乎全无、4–7 个月仍低于成人;C 栏比较自发放电率分布,婴儿在麻醉与清醒两态下都偏低。这张图是结果第 4 条的全部证据:基本性质早熟、信号强度拖后腿,强度短板与年龄不相关、且连带自发活动一起低——指向膜性质的普遍不成熟而非选择性问题。
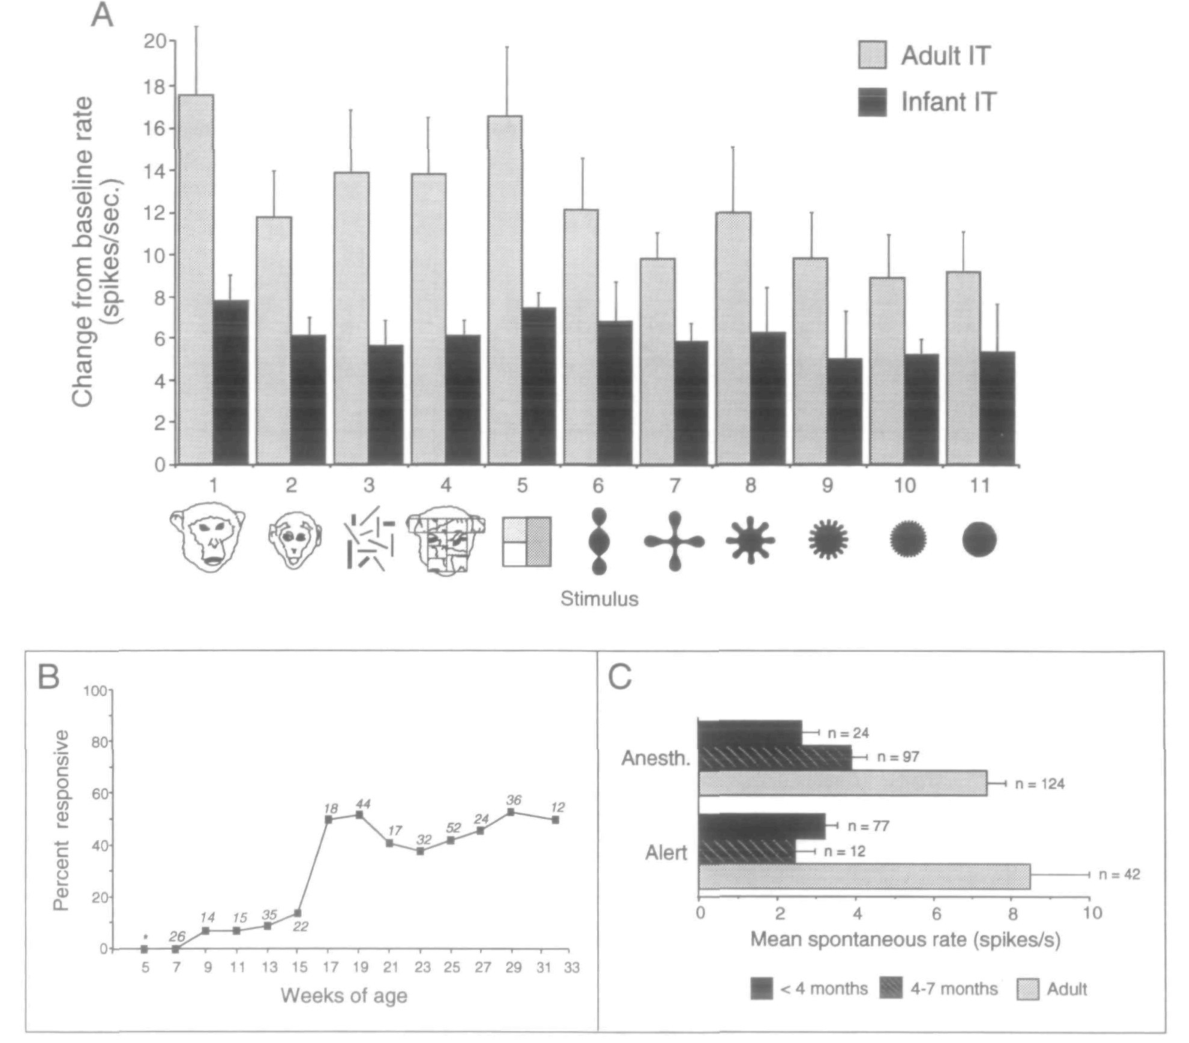
图 7 · 前 IT 逆行标记的整体模式:婴儿对成人
原文图注:Figure 7. Overall pattern of retrograde labeling following injection of anterior IT cortex in an infant monkey and an adult monkey, shown on lateral and ventral reconstructions of each hemisphere and on flattemngs of the superior temporal sulcus. Small, medium, and large dots represent sparse, moderate, and dense labeling, respectively, al, inferior arcuate sulcus (s.h ami anterior medial temporal s; as, superior arcuate s; ca, calcarine s, ce, central s; io, inferior occipital s., ip, intraparietal s; la, lateral s; Io, lateral orbital s; lu, lunate s; mo, medial orbital >; ot occipitotemporal s; pmt, posterior medial temporal s; or, principal s; rfi, rhinal s; st superior temporal s.
婴儿与成人各一例,向前 IT 注射逆向示踪剂后,把每侧半球的侧面观、腹面观和上颞沟展开图上被逆行标记的细胞密度画成点图(小、中、大点代表稀疏、中等、密集)。读图要点:两侧半球对比可见婴儿的标记整体图式(枕颞来源为主)与成人相似,但对侧半球——尤其对侧额叶与对侧颞叶——的标记在婴儿明显更多,这正是结果第 5 条"瞬时连接"的解剖学来源,也解释了为何需要随后在冠状切面上细看(正文图 8)。
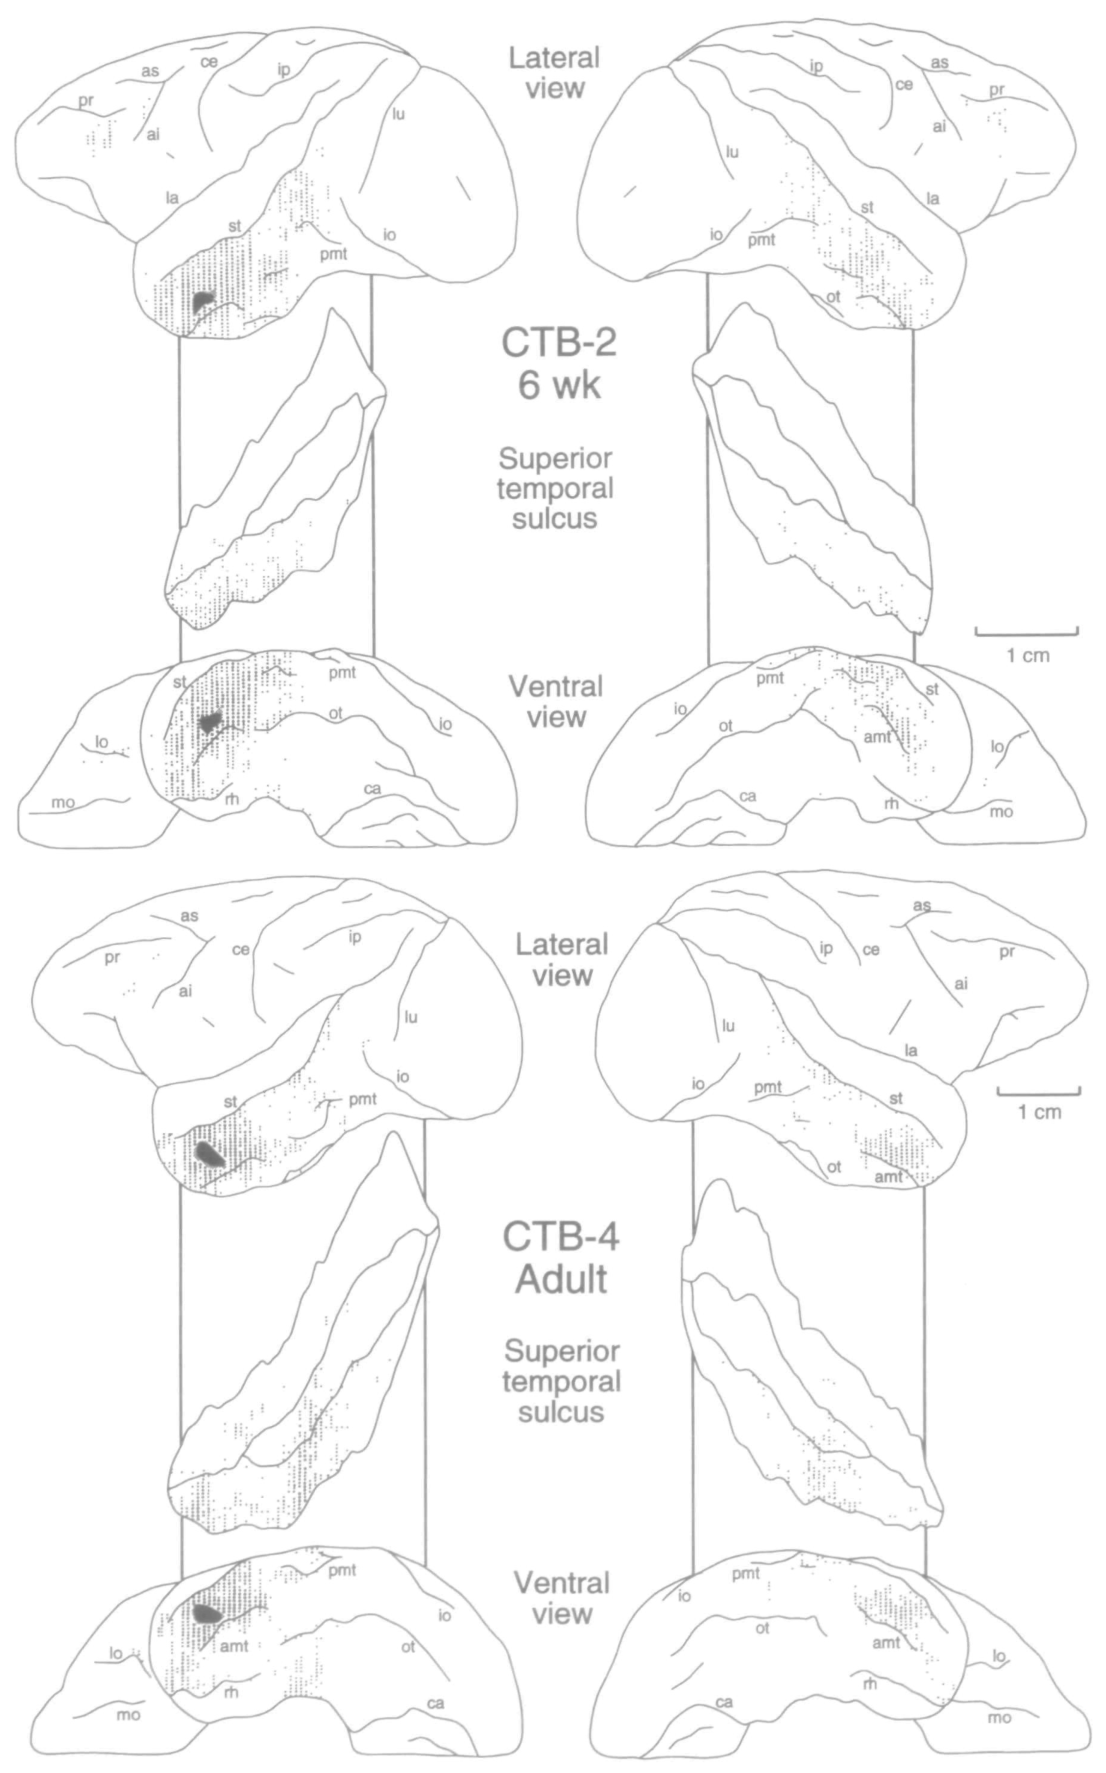
图 9 · 7 周婴儿 WGA-HRP 标记的显微照片
原文图注:Figure 9. Bright-field photomicrographs of WGA-HRP labeling in 7-week-old infant monkey. Neutral red counterstain. A, Cingulate cortex, cc, corpus callosum. B, Rhinal cortex. Note anterograde label in layers I and IV. 35, 36, cytoarchrtectonic areas of the rhinal cortex; rh, rhinal sulcus. Adapted from Rodman and Consuelos (1994). Scale bars: A, 200 M-m; 6, 500 urn.
修A 为扣带皮层显微照片,显示向 IT 投射的逆行标记细胞;B 为鼻周皮层,显示来自 IT 注射点的顺行纤维标记(集中在第 I 和 IV 层)。读图要点:图注强调第 I 层和第 IV 层出现的顺行纤维标记——这说明婴儿 IT 不仅"收到"这些区域的逆行输入,还实际把纤维送到了对方皮层的特定层次,瞬时连接是真实的功能性布线而非标记伪影,支撑结果第 5 条中关于输出比成人更广泛的部分。
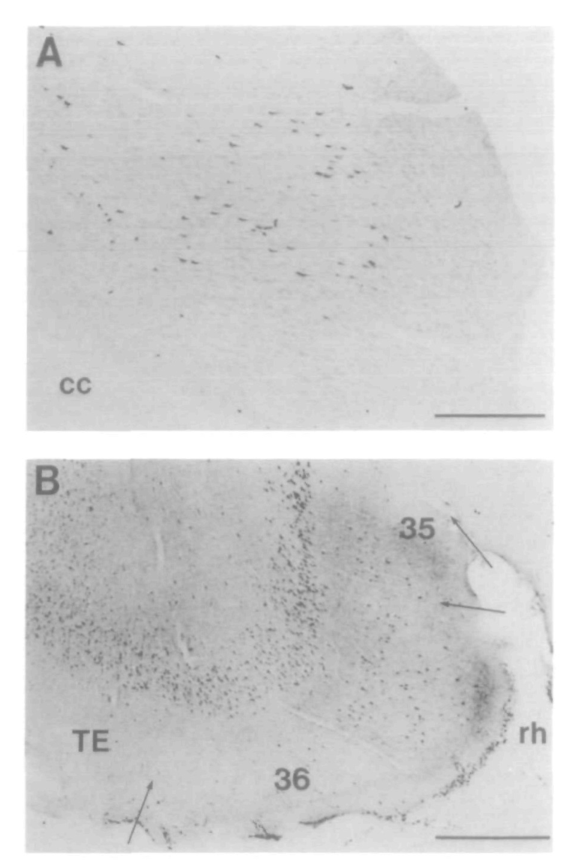
图 10 · 麻醉态视觉反应性的性别差异
原文图注:Figure 10. Visual responsiveness of isolated single neurons in anesthetized IT cortex as a function of gender in infant monkeys, and in male adults.
以性别分组比较麻醉态下 IT 单细胞的视觉反应比例(婴儿雌、婴儿雄与成年雄性三组,各柱下标出细胞数 n=24、53、16 等)。读图要点:婴儿雌性组内部反应比例一致,而婴儿雄性组内部波动很大、其中两例大幅偏低,成年雄性回到高反应水平——与行为上"雄性发育晚、受睾酮水平拖累"的报道互相印证,支撑结果第 5 条末尾的两性不同步论断;作者同时声明清醒态记录中未见到稳定的性别差异,可能是样本量小所致。
讨论
作者对"IT 行为贡献为何延迟"给出了排除式论证:这种延迟显然不是由于早期 IT 反应缺乏特异性(选择性模式明明已成人化),也不是由于提供视觉输入的皮层投射不成熟(枕颞连接图式基本成人化);最合理的解释是 IT 信号太弱——反应量低、潜伏期长、易被麻醉压制——至少在半岁以内如此。同时,解剖上的不成熟恰好集中在与视觉记忆和注意相关的区域:额叶、鼻周、扣带皮层和脑岛,而这些区域自身可能也还不成熟,使得 IT 参与视觉记忆所需的回路无法闭合;成人与 IT 相连的额叶区在匹配任务延迟期有刺激选择性的持续活动,Fuster 的冷却实验证明 IT 与额叶在任务中互相影响,Desimone 等据此提出额叶对 IT 有"自上而下"的预备(priming)作用——成熟的双向连接可能是 IT 充分参与视觉识别记忆的前提。作者把 IT 的发育放进全皮层背景:出生后头 2–4 个月各皮层区同步出现突触与受体的过量产生,随后回落;IT 的发育既包含其特异现象(麻醉压制的区域特异性、髓鞘化滞后),也叠加在全皮层共有的发育机制之上。最后,文章提出了一个颇具前瞻性的假说:除头半年的敏感期外,IT 这类"联合区"可能还有一个长得多、可延伸到成年期大部分时间的第二敏感期——成熟的标志不是固定的反应模式,而是随经验高效重组回路的能力,作者甚至预测婴儿个体神经元的反应模式受环境操纵的影响反而比成年后更小。
一句话总结
我的读法是:这篇文章用"性质早熟、强度晚熟、连接晚熟"三个时间表把一个老问题重新排序了——IT 的编码逻辑是预装的,但让它真正介入行为的是信号增益和额叶-鼻周回路这两件慢工。文中对第二敏感期的猜想(高级皮层的可塑性本身就是一种需要发育出来的能力)在今天读来仍然相当大胆,虽然它更像一份研究纲领而非已证结论。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig10: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[A, B] - Fig5: 提取质量
good,对齐度full,识别面板[A, B, F] - Fig6: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig7: 提取质量
good,对齐度full,识别面板[] - Fig9: 提取质量
good,对齐度full,识别面板[A, B]
关键事实与局限性声明
- 审校纠偏: 将“髓鞘化延迟与长反应潜伏期存在可能的相关性(likely to be related)”夸大表述为两者“直接对应”。
- 补充要点: 原文讨论部分提到了“单纯的时间连续性(mere temporal contiguity)”可能是神经元特性重组及形成“物体中心参照系(object-centered frames of reference)”的潜在发展机制之一,V0 在解读中未提及这一理论假设。