这篇文章在猴子做延迟匹配取样任务的同时记录下颞叶(inferior temporal, IT)皮层单细胞活动,专门问一个问题:当样本和测试刺激在大小或视网膜位置上不同时,IT 神经元对"当前刺激是否与记忆中的样本匹配"的检测是否依然成立。它值得读,因为这是最早把"记忆匹配效应本身的不变性"当作 IT 支持物体恒常性(object constancy)的直接电生理证据的工作之一,也把作者组此前提出的"适应性记忆过滤"假说推到了表征层面的检验。
研究背景
人类记忆最强大的能力之一,是见过物体某个特定样貌之后,即使其图像在大小或视网膜位置上已经改变,仍能认出它是同一个物体。作者认为这类不变性记忆机制的可能位点在 IT 皮层:该区损伤会严重损害视觉记忆(Gross 1973; Mishkin 1982 等),而且已有多项研究显示记忆中的条目会影响 IT 细胞对当前刺激的反应。作者组此前(Miller et al., 1991, 1993)发现 IT 中约一半细胞只传递感觉信息,另一半的反应由当前刺激和存储的记忆痕迹共同决定;在常规延迟匹配取样(delayed matching-to-sample, DMS)任务中,这些"记忆型"细胞大多按当前刺激与记忆痕迹的相似性被抑制——记忆像一个过滤器,优先放行与近期历史不同的视觉信息,作者称之为"适应性记忆过滤"(adaptive mnemonic filtering)。
但这个过滤操作所针对的刺激表征是什么性质,当时并不清楚。一种可能是"逐像素"式的字面比较,即把当前图像与之前见过的图像做低层对照;另一种可能是比较发生在更抽象的表征上,这种表征对保持物体身份的刺激变换(大小、位置)保持不变。此前已有零散证据提示 IT 具备某种不变性:IT 神经元对物体的整体特征(如形状)敏感、感受野(receptive field)极大(Gross et al., 1972; Desimone et al., 1984 等),部分形状与朝向选择性细胞在大小或位置变换下保持调谐(Schwartz et al., 1983; Sary et al., 1993),面孔细胞对面孔的选择性在旋转、平移、对比度变化下维持(Desimone et al., 1984; Rolls & Baylis, 1986; Hasselmo et al., 1989);损伤研究也表明 IT 损伤的猴子难以完成跨大小、跨位置的物体辨别。缺口在于:没有人检验过 IT 的"记忆效应"——即细胞对匹配与非匹配刺激的差异化反应——是否也对这些变换保持不变。这正是本研究要补上的空档。
研究思路
作者的总体策略是把 DMS 任务改造成"变换版":让样本与测试刺激在大小或视网膜位置上可以不同,同时猴子在行为上必须无视这些差异、按物体身份做匹配。逻辑链条分两步。第一步,感觉信息通过细胞对样本刺激的反应来评估——如果细胞对不同刺激的反应偏好排序在变换前后保持一致,就说明感觉表征带有不变性;同时考察细胞是否保留了对位置或大小本身的偏好。第二步,记忆信息通过细胞对测试刺激的反应来评估——对每个细胞做方差分析,看"匹配/非匹配"这一因素的主效应是否存在、以及它是否与"空间构型(同位置/跨位置)"或"大小关系(同大小/跨大小)"因素发生交互。如果匹配效应在没有交互的情况下跨变换成立,就意味着记忆比较不是在原始图像特征层面进行的,而是在较高层次的物体表征上进行的。
这个设计聪明的地方在于把"知觉不变性"和"记忆不变性"拆开测量:同一个细胞、同一批刺激,在感觉域和记忆域分别检验变换的影响,从而能回答"IT 到底保留了多少位置/大小信息、又丢掉了多少"这个量化问题。
方法
被试为三只恒河猴(rhesus monkey, Macaca mulatta)。埋置记录室前用 MRI 定位,记录区域与前作相同,即前中颞沟与鼻侧沟(rhinal sulcus)之间的前腹侧 IT。任务为改良版 DMS:每次试验猴子先握金属杆,出现 0.1° 的注视点并全程保持注视;随后呈现样本刺激,再接一至三个测试刺激,当测试刺激与样本匹配时松杆得到一口果汁。刺激是从真实物体或杂志照片数字化的彩色图片(可识别的物体如面孔、水果,以及彩色图案)。同一个用作样本—匹配项的刺激,在其他试次中也会作为非匹配刺激出现,以平衡刺激身份与匹配状态。,以平衡刺激身份与匹配状态。
位置实验用固定的 24 个刺激(1–3°),每个细胞先用全组刺激在注视中心做预筛,挑出两个能引发明确反应的和一个无效的刺激用于正式测试。三种空间构型:全部在注视中心、全部在离注视点 5° 的对侧视野(水平经线上)、样本在中央而测试在 5° 处。三种构型以约 36 次试验的小块交替进行,刺激呈现 400 ms,样本与最终匹配刺激之间有 0–2 个非匹配刺激,刺激间延迟 1500 或 2000 ms。大小实验中每个细胞用固定的两幅或六幅图片,各自数字化为小尺寸(约 2° 宽)和大尺寸(线性尺寸两倍),样本与测试的大小关系完全随机平衡(小配大、大配小、小配小等),刺激呈现 500 ms,最多一个间隔非匹配,延迟 700 ms。数据分析上,样本与测试反应取刺激呈现后 75 ms 起的 200–225 ms 时间窗(位置实验中因外周反应较弱,判定细胞是否有反应时用 325 ms 窗),细胞反应性用配对 t 检验(P<0.05)判定,其余结果用方差分析(ANOVA)或 t 检验,显著性水平 P<0.05。
主要结果
-
位置的感觉表征:偏好排序不变,但位置信息并未消失。位置实验共记录 71 个细胞,62 个(87%)有视觉反应,其中 90%(56/62)具有刺激选择性。在 58 个于中央凹与外周两处都测试过的细胞中,约三分之一(18/58,30%)对两处刺激反应相当,其余 69%(40/58)显著偏好某一位置,且其中 80%(32/40)偏好中央凹。关键在于,只有 12%(7/58)的细胞出现刺激×位置交互并改变了反应排序——也就是说,即使反应幅度随位置变化,绝大多数细胞的刺激偏好顺序不变。逐刺激分析(128 个刺激项)与之吻合:55%(70/128)对某一位置有显著更强反应,其中 59 项偏好中央凹、11 项相反;散点图(图 2)显示点集中在等响应对角线附近、整体向中央凹一侧偏移。群体平均直方图(图 3)还显示中央凹刺激的反应起始略早(105 ms 对 110 ms),峰值潜伏期差异更大。
-
位置的记忆效应:跨位置不变的匹配检测。记忆效应分析限于在全部三种空间构型下都测过、且两处都有反应的 45 个细胞。其中 27%(12/45)对测试刺激的反应显著依赖于是否匹配样本,且该主效应与空间构型无交互——即样本在中央凹看、测试在 5° 外周出现时依然有效。这 12 个细胞中 83%(10/12)表现为匹配抑制(match suppression),与此前发现的"适应性记忆过滤"一致(单细胞示例见图 4,群体平均见图 5)。值得注意的是,这些细胞中约半数(7/12,58%)在感觉域本身仍对某一位置有偏好——感觉上编码位置、记忆比较却不因位置而失效,两件事在同一细胞上并存。仅 3 个细胞(7%)的匹配效应随构型变化。逐刺激分析:82 个在两处都有反应的刺激项中,15 项(18%)有跨构型不变的匹配效应,其中除 1 项外全部为抑制型;仅 3 项(4%)出现匹配状态与位置的交互。
-
行为观察:跨大小识别是"天然"能力。正式记录开始前的一个观察很有意思:两只猴子此前在 DMS 中只匹配过与样本等大的刺激,但第一次遇到大小不同的测试刺激时,它们就无错误地把大小不同的测试与样本匹配起来——猴子认得出图案是同一个,尽管大小差异本身很容易察觉。
-
大小的感觉表征:同样是"排序不变 + 幅度可变"。大小实验共记录 59 个细胞,37 个有视觉反应。方差分析显示 51%(19/37)有刺激选择性(这批刺激没有按细胞逐个预筛,是无偏估计,比例略低于前作)。反应对大小不变与随大小变化的细胞几乎对半:56%(21/37)不变,43%(16/37)随大小显著变化;后者中 7 个对所有刺激统一偏好某一尺寸(纯大小主效应),9 个只对"特定刺激×特定大小"反应最好。只有 2 个细胞(5%)改变了刺激偏好排序。逐刺激看,133 个引发反应的刺激项中 17 项(13%)有显著大小偏好,偏好大和小各约一半(9 比 8);散点图(图 6)同样显示点大多沿对角线分布。
-
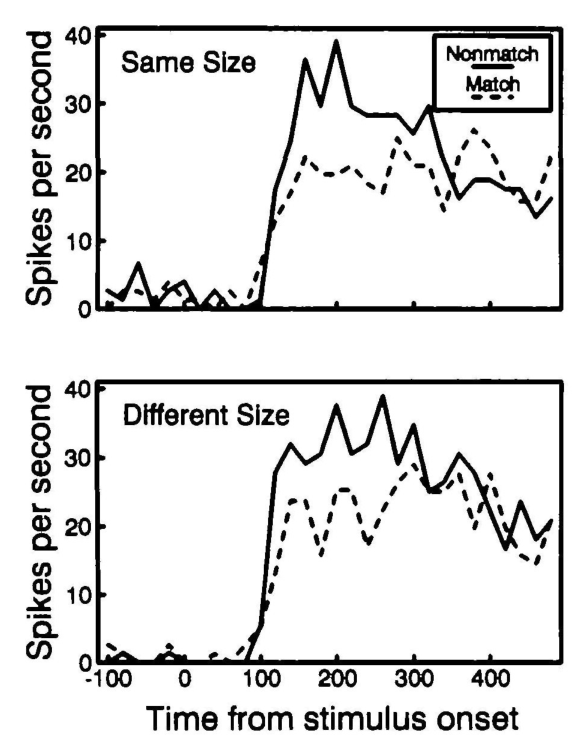
大小的记忆效应:跨大小匹配抑制为主。37 个细胞中 38%(14/37)的匹配-非匹配主效应显著,且不依赖样本与测试的相对大小;其中 78%(11/14)为抑制型,64%(9/14)同时具有刺激选择性。另有 3 个细胞(8%)的匹配效应量随相对大小变化,且都在样本与测试等大时效应最大。逐刺激分析中,133 项里 20%(26 项)有显著匹配效应,73%(19/26)为抑制、27%(7/26)为增强。群体平均(图 8)显示,无论匹配抑制组还是匹配增强组,样本与测试不同大小时的效应量都和等大时几乎相当——IT 细胞检测的是"记忆中的那个物体",而非"那张同样的图"。单细胞示例见图 7。
图注解读
正文另引用了图 8(按匹配抑制/匹配增强分组的平均测试反应,A/B 两栏,均显示"同大小"与"不同大小"条件下效应量相当),但其图注未包含在元数据中,故本节仅解读图 1–7。
图 1 · DMS 任务的三种试次构型
原文图注:Figure 1. Examples of trials from the DMS task. Shown are examples of trials in which the match stimuli were (1) the same size and presented at the same location as the sample (fop), (2) a different size than the sample (middle, or (3) presented at a different location than the sample (bottoni. The number of intervening stimuli in a trial actually varied in number from zero to two in the location task and from zero to one in the size task.
这张示意图给出任务的时间结构:每次试验依次呈现样本(Sample)、若干非匹配项(Nonmatch)和最后的匹配项(Match),自上而下三行分别对应标准构型(样本与匹配项同大、同位置)、大小差异构型和位置差异构型。图注还交代了两种实验中间隔非匹配项的数量范围(位置任务 0–2 个,大小任务 0–1 个)。读图的关键是理解"匹配项永远是试验的最后一个刺激",且猴子必须注视注视点、忽略大小或位置差异按物体身份松杆——这是后面一切"不变性"结论的行为前提,对应上文研究思路一节的任务改造。
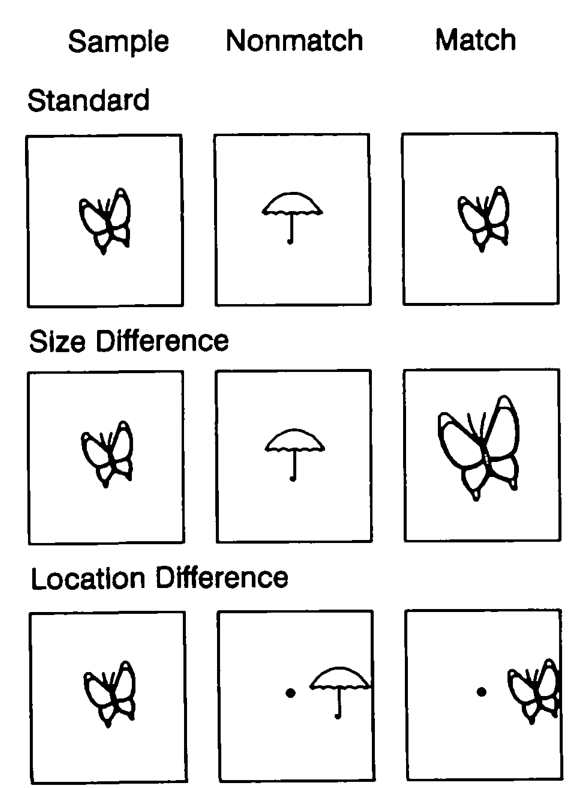
图 2 · 中央凹与外周反应的逐刺激散点
原文图注:figure 2. Comparison of responses to the same stimuli presented tovealty and extrafovealry. Diagonal indicates equal responses. Triangles indicate responses that were significantly different depending on the location of the stimulus. Squares indicate responses that were not significantly different
横轴为同一刺激在中央凹呈现时的反应,纵轴为外周(5° 对侧视野)呈现时的反应,对角线代表两处反应相等;三角形表示位置间差异显著(t 检验,P<0.05),方块表示不显著。读图要点:绝大多数点紧贴对角线分布——即同一刺激在两处诱发的反应量级接近——而显著偏离对角线的点中,偏向"中央凹反应更大"一侧的(59 项)远多于反向的(11 项),整体点云向中央凹侧偏移。这张图支撑结果第 1 条:位置信息以"中央凹增益偏高"的形式保留在 IT 中,但并未引起刺激偏好排序的重组。
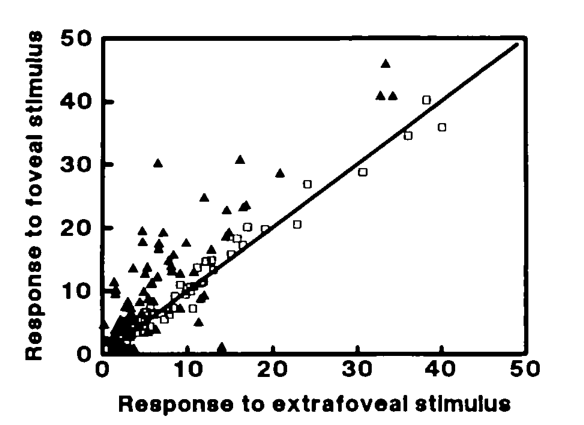
图 3 · 群体平均的中央凹与外周样本反应
原文图注:Figure 3. Responses to fovealry and extrafoveally presented samples, averaged across all cells that elicited a response at both locations.
这是跨细胞平均的刺激后时间直方图(PSTH),比较两处呈现样本刺激的群体响应时间过程,横轴为刺激起始后的时间(约 0–175 ms),纵轴为平均放电率。两条曲线形状相似但外周那条整体更低、更晚:群体反应起始潜伏期中央凹为 105 ms、外周为 110 ms,达到峰值的潜伏期差异看起来更大。它支撑结果第 1 条末尾的补充结论——IT 不仅在发放幅度上保留了"中央凹优先",在反应时程上外周刺激也略占劣势。
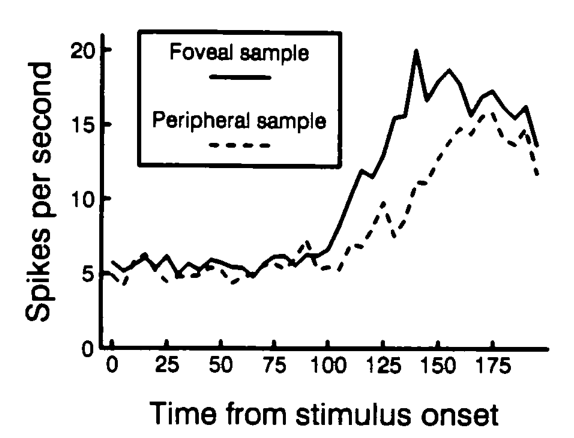
图 4 · 跨位置匹配抑制的单细胞示例
原文图注:Figure 4. Responses of an IT neuron to a single stimulus appearing as a nonmatch and as a match when both the sample and the test stimuli appeared at the fovea (top), when the sample was presented at the fovea and the test stimuli extrafovealty {middle), and when all stimuli were presented extrafovealry [bottom). Solid line indicates nonmatch; dashed line indicates match
三行分别为三种空间构型下同一个刺激作为匹配项(虚线)与非匹配项(实线)出现的平均反应直方图。读图要点:顶部(全在中央凹)匹配虚线明显压在非匹配实线之下;中部(样本在中央凹、测试在外周)和底部(全部在外周)这种"虚线更低"的关系依然保持。也就是说,该细胞对"这个刺激是否是刚才见过的那个"的判断并不因为样本和测试位置不同而失效。正文特别指出,这类具有跨位置记忆效应的细胞中约半数在感觉域上仍对某一位置有偏好——感觉信息与不变的记忆比较可以在同一个细胞里并存。
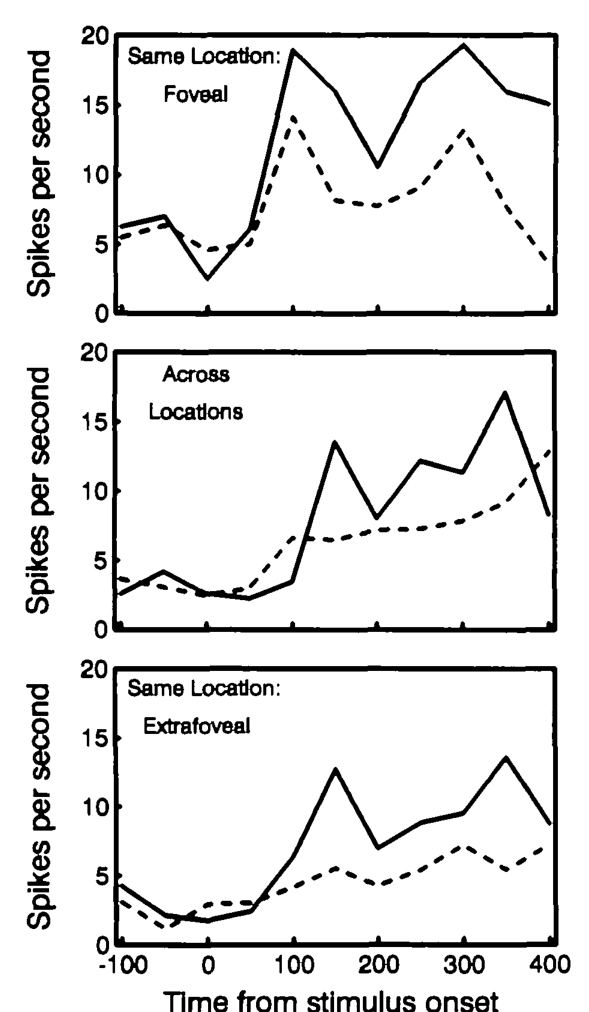
图 5 · 三种构型下匹配抑制的群体平均
原文图注:Figure 5. Average responses across cells to the same set of stimuli appearing as samples and as matches and nonmatches. Fov., foveal stimulus presentation; Extralov., extrafoveal stimulus presentation; M, match; N, non-match.
这张柱状图把 14 个显示跨构型抑制效应的刺激项的平均反应并排列出:左侧为同一组刺激作为样本的反应(分中央凹与外周呈现),右侧三种构型(同位置中央凹、同位置外周、跨位置)下各给出 M(匹配)与 N(非匹配)两个柱。读图要点:三组构型里 M 柱一致低于 N 柱,且降幅接近——群体层面把单细胞图 4 的印象坐实为跨刺激的统计事实,支撑结果第 2 条"匹配效应跨空间构型不变"。
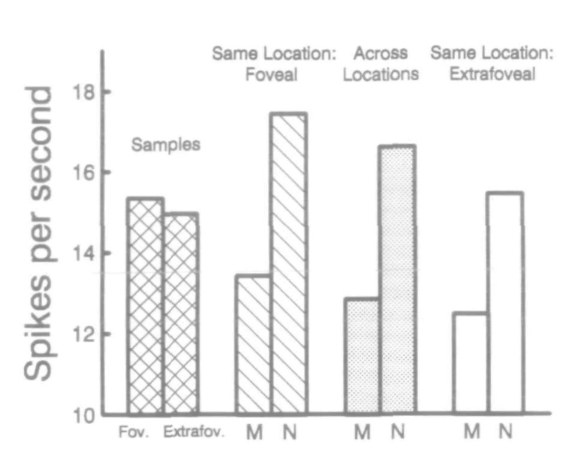
图 6 · 不同大小反应的逐刺激散点
原文图注:Figure 6. Comparison of responses to the same stimuli presented at two different sizes. Diagonal indicates equal responses. Triangles indicate responses that were significantly different depending on the size of the stimulus. Squares indicate responses that were not significantly different
与图 2 完全同构的散点图,只是横轴换成小尺寸(约 2° 宽)呈现时的反应,纵轴换成大尺寸(线性两倍)呈现时的反应。要点是点云同样集中在等响应对角线附近,显著偏离的刺激项只占 13%(17/133),且偏好大(9 项)与偏好小(8 项)近乎各半、方向不一致——说明大小效应不是系统性的"越大越强",而是零散的个别偏好。这张图支撑结果第 4 条:IT 反应模式对刺激大小大体不变,仅残留少量、非定向的大小信息。
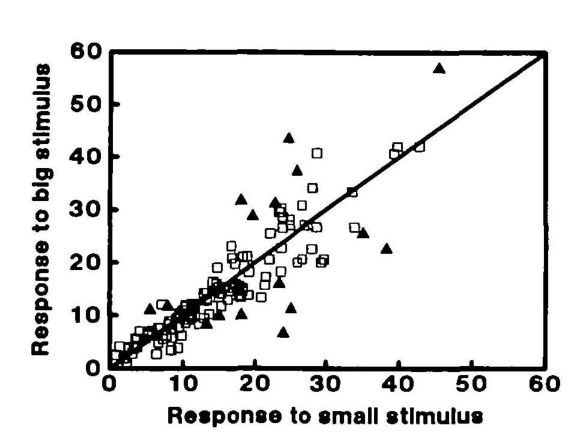
图 7 · 跨大小匹配抑制的单细胞示例
原文图注:Figure 7. Responses of an IT neuron to a single stimulus appearing as a nonmatch and as a match when both the sample and the test stimuli were the same size {top), and when the sample and test stimuli were different sizes (bottoirt.
上下两行分别对应样本与测试等大、不等大两种情形,实线为该刺激作为非匹配项的反应,虚线为作为匹配项的反应。读图要点:两行中虚线都明显低于实线,即匹配抑制在"测试换了尺寸"时照常出现,与图 4 在位置维度上的结论平行,共同支撑结果第 5 条——记忆匹配的检测发生在物体身份这一表征层级上,而不是在原始图像特征上。
讨论
作者的讨论分三层。第一层是把结果放进 IT 不变性研究的谱系:Gross 与 Mishkin(1977)早就提出 IT 神经元的大感受野可能介导跨视网膜平移的刺激等同性,后来的形状/朝向/面孔细胞研究及本期的仿真模型(Cochin, 1994)都与此一致;本研究把这条线延伸到记忆域——对大多数细胞而言,当前刺激与记忆痕迹的交互在大小和视网膜平移下不变,因此这种交互必然发生在较高层次的物体表征而非局部特征层面,人们之所以能认出"变了大小或位置的刚见过的东西",大概就要归功于这类细胞。第二层是对"残留信息"的解释:IT 感受野在中央凹常有"热点"(hot spot),且往往是从中央凹延伸到上或下对侧视野的"热带"(hot streak),加上部分细胞对大小有粗调谐,作者提出位置和大小在 IT 中被当作与颜色、形状并列的"物体特征"来编码——有机体何时用不变的身份信息、何时用位置/大小特异性信息,可能取决于任务需求。第三层是机制起源:作者此前区分了两种短时记忆机制——由单纯刺激重复自动引发的抑制机制,和猴子必须主动"记住"样本并与之比较时参与的增强机制(ABBA 任务),本研究中抑制与增强两类效应都表现出大小与位置不变性;由于这些效应在视觉反应起始(约 80 ms)时就出现,难以用在线反馈解释,虽然 V4 也存在匹配抑制(作者未发表观察),但 V4 感受野不足以覆盖中央凹到 5° 外周的范围、也没有大小不变性的证据,所以作者推断这种不变的记忆效应很可能在 IT 内部自足地产生,而非从上游传递下来。作者也坦承了局限:大小不变性只在"此处测试的有限尺寸范围内"成立,位置也只测了中央凹与 5° 对侧一点;论文还把匹配抑制与重复启动(repetition priming)联系起来,因为行为上的启动效应同样跨大小、位置、朝向变化存在(Ellis et al., 1989; Biederman & Cooper, 1991, 1992)。
一句话总结
在我看来,这篇文章最漂亮的地方是它在同一个细胞上同时量出了"变换不变的物体身份"和"依然编码变换本身"这两件事——偏好排序几乎不动、幅度增益随中央凹性和尺寸漂移、而在具有显著匹配效应的主要亚群中,该效应在有限的位置和大小变化范围内通常未检测到显著改变。它对"记忆过滤作用于抽象表征"给出了相当干净的证据,只是测试的变换范围(2 倍大小、5° 平移)偏保守,结论的外推边界作者自己也说得很清楚。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[] - Fig7: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: {'classification': 'INTERPRETATION', 'claim': '匹配效应发生在较高层级的物体表征,而非局部图像特征层面。', 'assessment': '这是作者明确提出且与结果一致的解释,但不是由当前数据唯一确定的机制事实。'} -> 评注: 这是作者明确提出且与结果一致的解释,但不是由当前数据唯一确定的机制事实。
- 审校纠偏: {'classification': 'INTERPRETATION', 'claim': '大小和位置不变的记忆效应在IT内部产生,而不是由早期视觉区传入。', 'assessment': '作者根据效应潜伏期、V4感受野范围及缺乏V4大小不变性证据作出的推断;本研究没有直接记录或操控V4—IT通路。'} -> 评注: 作者根据效应潜伏期、V4感受野范围及缺乏V4大小不变性证据作出的推断;本研究没有直接记录或操控V4—IT通路。
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': 'IT细胞检测的是记忆中的物体身份,并完成是否为同一物体的判断。', 'assessment': '记录显示的是匹配状态相关的放电差异,不能确立单细胞承担身份判断,也不能排除自动重复抑制等替代解释。'} -> 评注: 记录显示的是匹配状态相关的放电差异,不能确立单细胞承担身份判断,也不能排除自动重复抑制等替代解释。
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '记忆比较完全无视大小或位置变换。', 'assessment': '存在显著交互的细胞,且无显著交互不等于统计等效;变换范围也十分有限。'} -> 评注: 存在显著交互的细胞,且无显著交互不等于统计等效;变换范围也十分有限。
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '跨大小识别是猴子的天然能力。', 'assessment': '只有两只经过DMS训练的猴子的非正式首次表现观察,缺少未训练对照和定量统计。'} -> 评注: 只有两只经过DMS训练的猴子的非正式首次表现观察,缺少未训练对照和定量统计。
- 审校纠偏: {'classification': 'UNSUPPORTED_CONTEXT', 'claim': '这是最早把记忆匹配效应不变性作为IT支持物体恒常性的直接电生理证据之一。', 'assessment': '该历史优先级判断不能仅由本论文原文验证,需要独立文献史检索后才能保留。'} -> 评注: 该历史优先级判断不能仅由本论文原文验证,需要独立文献史检索后才能保留。
- 补充要点: : (第 页)
- 补充要点: : (第 页)
- 补充要点: : (第 页)
- 补充要点: : (第 页)
- 补充要点: : (第 页)