这是一项关于面孔知觉早期经验依赖性的长期剥夺实验:研究将十只幼猴自出生起与任何面孔刺激严格隔离饲养 6 至 24 个月,照料者均佩戴面罩,饲养笼仅布置非面孔玩具与人造花。测试表明,在完全缺乏面孔视觉经验的情况下,幼猴仍表现出对人类和猴类面孔照片的显著偏好,并能基于局部特征与间距构形信息有效辨别新旧面孔;而在剥夺期结束后分别接受单物种面孔暴露一个月,其面孔偏好与辨别能力迅速窄化至该暴露物种,且该特异性在正常混养一年后仍未恢复。结果表明,基础面孔检测与辨别机制可在无面孔经验下发育成形,而后续经验主要发挥定向筛选与知觉窄化(perceptual narrowing)作用。
研究背景
面孔识别系统具有鲜明的能力特征:它需要在同类别内部进行细粒度判断——辨认特定个体并区分同一面孔的不同表情。为此有观点认为进化催生了专门的面孔识别系统,但该系统的个体发生(ontogeny)长期存在争议:一派认为面孔加工是特殊的知觉过程,在出生时已组织就绪;另一派认为它源自一般用途的知觉系统,依赖频繁的视觉经验逐渐特化。两派各有实证支持:人类新生儿对类人脸刺激表现出视觉偏好,提示存在不依赖经验的知觉基础;但先天性白内障患者在生命最初数月被剥夺模式化视觉输入后,分辨五官间距微调面孔的能力严重受损,又表明早期经验不可或缺。
该争议的关键难点在于,人类婴儿研究无法将先天潜能与出生后数日内的早期经验彻底剥离——只要睁开眼睛,视觉经验便已开始积累。作者由此选用猴进行完全的面孔剥夺实验:如果剥夺数月至两年的动物仍具备面孔加工能力,即可证明该能力不依赖面孔经验本身;如果首次接触面孔后能力发生方向性收窄,又能据此界定经验塑造的敏感期。此前相近的工作包括 Sackett(1966)将猴隔离饲养、仅以照片提供视觉输入,提示具备社会意义的刺激对缺乏社会经验的幼猴具有先天激活效应;但此前未见以特征与构形两类分辨为明确目标的彻底性面孔剥夺实验。
研究思路
实验设计的核心是“剥夺—测试—单侧暴露—再测试”的纵向链条。剥夺阶段检验在缺乏经验时系统具备的能力基线:作者为幼猴提供了丰富的非面孔视觉环境(人造花、彩色玩具、每天与佩戴面罩的照料者互动至少 2 小时),若面孔加工能力受损,可归因于面孔刺激的特异性缺失,而非整体环境剥夺。测试指标选取了人类发育文献中已分化的两条通路:局部特征信息(featural information,眼、嘴等具体部件的形态差异)与空间构形信息(configural information,部件间的间距关系),据此构建了仅改变部件形状的特征集与仅改变部件间距的间距集两套面孔刺激,从而分别检验两条通路对经验的依赖程度。
暴露阶段检验经验如何收窄知觉调谐:剥夺期结束后,一组幼猴首次接触人脸,另一组首次接触猴脸,各维持一个月,随后移入正常动物房(两类面孔并存),追踪偏好与辨别能力的演变与可逆性。研究在剥夺期内、暴露后一个月、混养一年后三个时间点,采用偏好注视与视觉成对比较两项行为任务进行纵向评估,并设置正常群养猴作为对照组。正常猴对人脸的敏感度显著低于猴脸,恰好印证“本物种优先”是视觉经验塑造的结果,而非先天的生理能力上限。
方法
被试共 14 只日本猴(Macaca fuscata):实验组 10 只(5 雌 5 雄),出生数小时内与母亲分离(夜间出生者于次日 8 时前分离),由人类照料者在独立房间人工抚养,笼内布置人造花与彩色玩具;对照组 4 只(1 只 2 岁雄猴、3 只 2 岁雌猴),由母猴在约 30 只猴的群养环境中正常抚养。剥夺期分别为 6 个月(4 只)、12 个月(4 只)、24 个月(2 只)。剥夺期结束前一个月,幼猴接受坐椅注视训练,注视前方屏幕(50×30 cm)5 秒可获得果汁奖励。剥夺期结束后,幼猴在独立房间停留一个月,其中 6 只首次见到摘除面罩的照料者面孔(每天互动至少 2 小时),另外 4 只与猴同笼首次见到猴脸;随后成对移入包含至少 10 只猴的正常动物房。所有程序经产业技术综合研究所动物实验委员会批准。
行为测试包含两项。偏好注视(preferential looking):屏幕中央闪烁直径 1° 的红点(333 ms 开/关循环)引导注视,熄灭后左右并排呈现两张 10×10 cm 图像(中心间距 30 cm、视距 60 cm)持续 10 秒,刺激对从三类组合(人脸–非面孔物体、猴脸–非面孔物体、人脸–猴脸)中随机抽取,左右位置在被试间平衡;两名不知情观察者逐帧判读录像(观察者间一致性 Pearson 相关 r=0.94),每种条件记录 10 次,30 分钟内完成 30 次测定。视觉成对比较(visual paired comparison,VPC):屏幕中央先呈现单张面孔 5 秒,以 10 秒间隔重复 6 次,经 5 秒延迟后将熟悉面孔与新异面孔并排呈现 10 秒,以对新异面孔更长的注视时间作为再认指标;刺激从(人/猴脸 × 特征/间距集)四种组合中随机抽取,每种条件测定 6 次,45 分钟内完成 24 次测定。刺激包含各 20 张人脸与猴脸的灰度正面照片;特征集替换眼、嘴部件形态,间距集使眼嘴距离或两眼间距相对增减 6%(每张面孔各 4 个变体),另包含 20 张动物未见过的非面孔物体照片(房屋、日用品、车辆),所有图像背投于毛玻璃屏(平均亮度 70.0 cd/m²,对比度 140)。注视时长占比采用重复测量方差分析进行统计推断。
主要结果
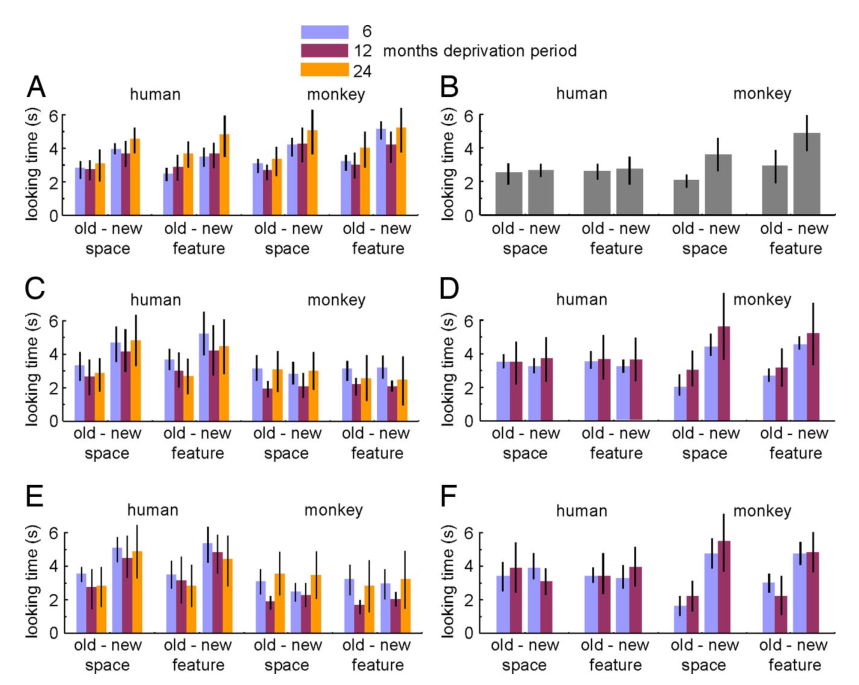
- 剥夺期内:面孔检测与双物种辨别能力已然具备。 幼猴均表现出对人脸与猴脸照片显著优于非面孔物体的注视偏好;当人脸与猴脸并排呈现时,注视时间无显著差异(图 3A),且三种剥夺时长组别间无显著分歧。正常抚养的对照猴则表现出对猴脸的显著偏好(图 3B)。在 VPC 任务中,剥夺组幼猴面对人脸与猴脸两套刺激及特征与间距两类变式,对新异面孔的注视时长均显著更长(图 4A),表明在完全缺乏面孔经验的前提下,系统同时具备针对人与猴面孔的局部特征与空间构形辨别能力。对照猴仅能辨别猴脸新旧,且对猴脸的组内辨别力反而更弱(图 4B)。
- 一个月的定向暴露使宽调谐收窄为单物种偏好。 暴露后,先接触人脸的幼猴偏好人脸,对猴脸的注视时长降至非面孔物体水平(两因素 ANOVA 注视条件主效应 F(2,9)=61.67,P<0.01);先接触猴脸的幼猴偏好猴脸(F(2,6)=8.40,P<0.05),对人脸注视时长降至非面孔基线(图 3C、D)。
- 物种特异性辨别固化且一年后未见恢复。 VPC 显示:先接触人脸的猴仅能辨别人脸新旧面孔的特征与间距差异,对猴脸新旧面孔不再表现出注视偏好(F(3,12)=48.60,P<0.01;图 4C);先接触猴脸的猴仅擅长辨别猴脸(F(3,8)=27.71,P<0.01;图 4D)。移入两类面孔并存的正常动物房一年后,未暴露物种的辨别能力仍未恢复(图 4E、F:分别为 F(3,12)=10.46 与 F(3,8)=14.84,P<0.01)。
- 物种注视偏好保持稳定至少一年。 一年后复测偏好注视:先接触人脸组仍偏好人脸(F(2,9)=55.45,P<0.01),先接触猴脸组仍偏好猴脸(F(2,6)=12.79,P<0.01)(图 3E、F)。表明对特定面孔形态的知觉偏好受到早期经验的显著塑形。
- 经验无关能力至少保持两年未见退化。 剥夺期幼猴的面孔检测能力及双物种特征与构形辨别能力至少维持至 2 岁未见退化;在发育时间线上,构形加工并未表现出人类文献中晚于特征加工的滞后性,两类加工均可在无面孔经验下就绪。
图注解读
图 1 · 面孔剥夺的饲养环境
原文图注:Fig. 1. An infant monkey and her living circumstance. An infant monkey and a caregiver with (A) and without (B) a facemask. Both photos were taken after the face-deprivation period. (C) Toys placed in the monkey's home cage. (D) Decorations provided around the home cage.
图示展示了面孔剥夺的饲养环境与对照设置。A 与 B 分别为同一只幼猴与照料者在佩戴面罩及摘除面罩状态下的合影(均拍摄于剥夺期结束后)。C 与 D 展示了笼内的彩色玩具与笼周的人造花装饰。实验设计旨在实现单一维度的“面孔视觉剥夺”,而非整体感觉剥夺;幼猴在剥夺期间保持丰富的触觉、运动及非面孔视觉刺激,并接受每天至少 2 小时的照料互动,从而排除了普遍认知发育迟滞对面孔测试表现的混淆。
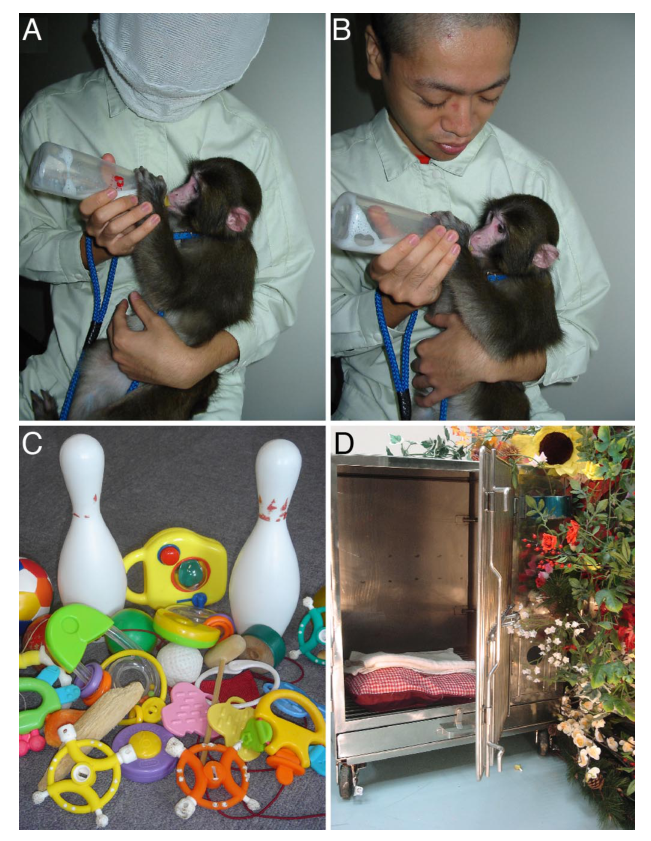
图 2 · 两套面孔刺激与特征/构形的分离
原文图注:Fig. 2. Visual stimuli. (A) Photographs of nonface objects. (B) Featural stimulus set of monkey faces: variation in individual features (eyes and mouth). (C) Spacing stimulus set of monkey faces: variation in spacing of the eyes and between eyes and mouth. (D) Featural stimulus set of human faces. (E) Spacing stimulus set of human faces.
图示为行为测试所使用的视觉刺激。A 为作为基线对照的非面孔物体照片(建筑、日用品、交通工具等)。B 与 C 分别为猴脸的局部特征集(仅替换眼、嘴部件形态)与间距构形集(仅改变眼嘴距离或两眼间距 ±6%)。D 与 E 为人脸的对应特征集与间距集。实验通过严格分离局部特征与空间构形变量,使视觉成对比较(VPC)中的新异性注视偏好能够分别特异性归因于特征加工通道或构形加工通道。
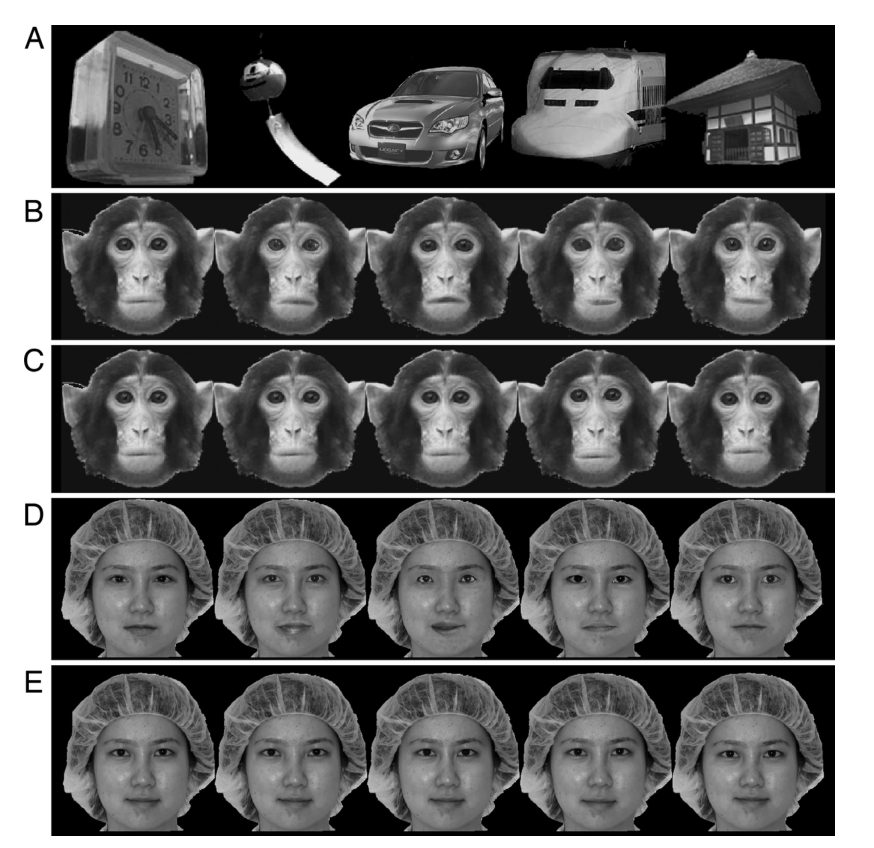
图 3 · 偏好注视:从"两不偏"到"定向偏"
原文图注:Fig. 3. Average looking time for the preferential looking task. (A) Results obtained during face-deprivation period. (B) Results from control adult monkeys. (C) Results obtained from the monkeys exposed to human faces for a month. (D) Results obtained from the monkeys exposed to monkey faces for a month. (E and F) Results obtained a year after the deprivation period from the monkeys exposed first to human faces (E) and to monkey faces (F). Error bars represent SE.
图表展示偏好注视任务在不同发育节点的平均注视时间。A 为剥夺期内测试,幼猴对人脸与猴脸注视时间无显著差异,且均显著长于非面孔物体。B 为母幼正常群养的对照猴,呈现出对本物种猴脸的显著偏好。C 与 D 为单向暴露一个月后的结果:先接触人脸组(C)对人脸呈现高度偏好,对猴脸注视时长下降至非面孔基线;先接触猴脸组(D)呈现反向偏好。E 与 F 为正常混养一年后的随访测试,显示单向暴露诱导的物种偏好具有长期的跨年稳定性。误差线为标准误。
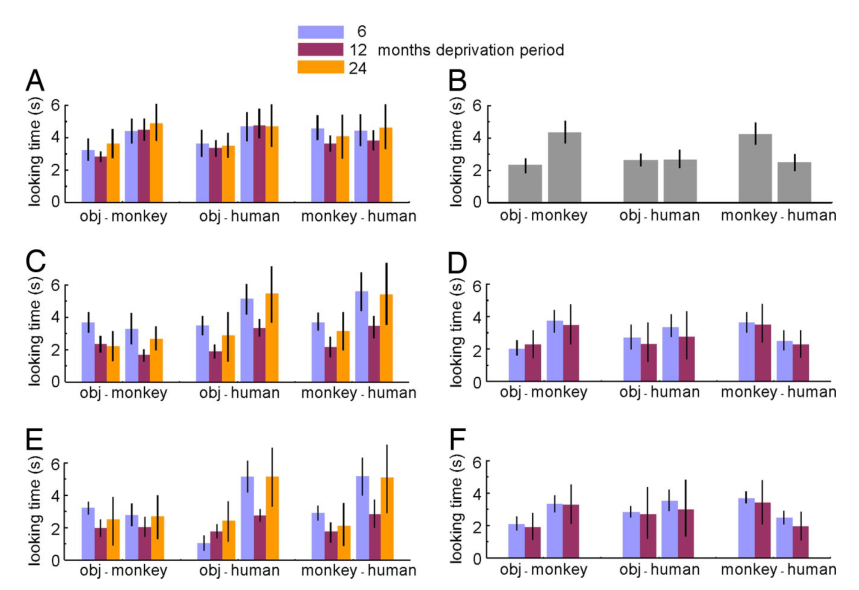
图 4 · VPC:分辨能力的出现与单向丢失
原文图注:Fig. 4. Average looking time for the VPC task. (A) Results obtained during face-deprivation period. (B) Results of control adult monkeys. (C) Results obtained from the monkeys exposed to human faces for a month. (D) Results obtained from the monkeys exposed to monkey faces for a month. (E and F) Results obtained a year after the deprivation period from the monkeys exposed first to human faces (E) and to monkey faces (F). Error bars represent SE.
图表展示视觉成对比较(VPC)任务中幼猴对新面孔注视时间的百分比。A 表明剥夺期幼猴在人脸与猴脸的特征集与间距集四个实验条件下,对新异面孔的注视时长均显著超出 50% 偶然水平,表明其具备双物种、双加工模式的辨别力。B 中正常对照猴仅在猴脸条件下展现出对新面孔的辨别偏好。C 与 D 显示一个月单向暴露后,辨别能力严格窄化至所经历的物种。E 与 F 显示在混养一年后,未暴露物种的精细辨别能力仍未出现自发恢复。误差线为标准误。
讨论
作者将发现划分为两层含义进行讨论。第一层关于经验无关机制:幼猴在缺乏面孔经验的情况下偏好面孔并在特征与构形两条通道上表现出辨别力,符合新生儿掌握基本面孔构型关联特征(双眼在鼻上方、嘴在鼻下方)的假说;但作者提出幼猴可能借助本体感觉与触觉输入理解面部关联结构——幼猴观看时转动眼球、进食时活动嘴部、频繁用手触碰面部或吸吮手指,面部几何结构可能由此成为具备吸引力的知觉模式。第二层关于经验依赖机制:定向暴露后知觉能力的单向窄化,符合知觉窄化(perceptual narrowing)规律,即对特定刺激的选择性经验导致对未接触刺激的分辨能力下降。异族效应(other-race effect)与异种效应(other-species effect)很可能是婴儿期频繁暴露于特定原型面孔的产物:3 个月人类婴儿优先辨别本族面孔但短期训练即可缓解该效应;5–9 岁被欧裔家庭收养的亚裔儿童成年后对欧裔面孔辨别更敏感;6–9 个月人类婴儿暴露于猴脸可阻止异种效应发展。此外,构形与特征加工并非面孔所独有,4 个月幼猴 IT 皮层神经元的反应特性已与成年猴相似,两类加工模式很可能在无面孔经验时已初步成形。
关于敏感期,作者提出:敏感期内社会性视觉刺激吸引注意,将宽泛的面孔模板固化为处理熟悉面孔的精细表征;敏感期的跨度并非仅由生理年龄决定,在完全剥夺面孔输入的情况下,该敏感期可延展至至少 2 年,与暗饲养延长初级视皮层可塑性临界期的现象类似。局限方面,猴异种效应的可逆性与神经可塑性边界仍待解答;暴露组样本量偏小(每组 4–6 只),且行为测定依赖注视时长这一单一指标,构成本实验的方法学限制。
一句话总结
本研究证实灵长类面孔检测及其特征与构形辨别能力无需早期面孔视觉经验即可初步形成,而出生后的面孔经验主要驱动表征系统的调谐与知觉窄化:短期的单物种视觉经历能够快速且持久地将辨别优势固化在特定类别上,未获经验支持的异种面孔辨别潜能则随之衰退且难以逆转。