这是一篇综述:Conway 沿"视锥细胞(cones)—视网膜/外膝体(LGN)—V1—V2—PIT"的层级路线,把灵长类色觉的神经机制串成一条完整的加工链。它值得一读是因为作者本人既做理论也做实验(第 8、9 图的"globs"数据来自他自己的工作),能把"为什么大脑必须这样计算颜色"的现象学论证与单细胞生理证据对接起来,读起来像一个资深研究者亲口讲述这个领域的地图。
研究背景
问题可以从一个看似简单的反问开始:既然视网膜只有三种视锥细胞,为什么我们能看到几百万种颜色,而且颜色还如此稳定、如此富有情绪色彩?作者在开篇指出,颜色并非对波长的逐一编码。物体反射光的光谱是光源光谱与物体吸收特性两个变量的乘积,若大脑直接读出反射光,物体的"颜色"就会随照明剧烈变化,从而丧失作为物体身份线索的价值。可事实上人类在不同天然光源下具有相当好的色彩恒常性(color constancy),某些测试条件下甚至接近完美——这背后必然存在某种对照式计算。此外还有同色异谱(metamers)、颜色同化(assimilation)、用颜色撕开伪装色边界等奇特现象,都在提示:色觉是由多层神经网络在特定空间尺度上做局部比较而构建出来的。
当时已知的核心框架是三色说(trichromacy,Young–Helmholtz)与对立说(opponent-colors theory,Hering)的调和:L、M、S 三种视锥(按吸收峰在长、中、短波长命名)构成三色视觉的起点;而视网膜神经节细胞与 LGN 中的"视锥对立"(cone-opponent)细胞则实现了信号相减。缺口在于中间环节的对应关系并不清楚:LGN 细胞的调谐轴是"红-青""薰衣草-青柠"这类互补对,并不对应心理上的独特色(unique hues)红、绿、蓝、黄;V1 里被寄予厚望的双对立细胞(double-opponent neurons)长期存在争议,在一些有影响的教科书里只配了脚注;而摘大脑皮层这一侧,V4 是否"颜色区"吵了几十年,争议极大。换句话说,从视锥信号到主观色觉,中间几个层级"谁负责算什么"仍是一笔糊涂账。
研究思路
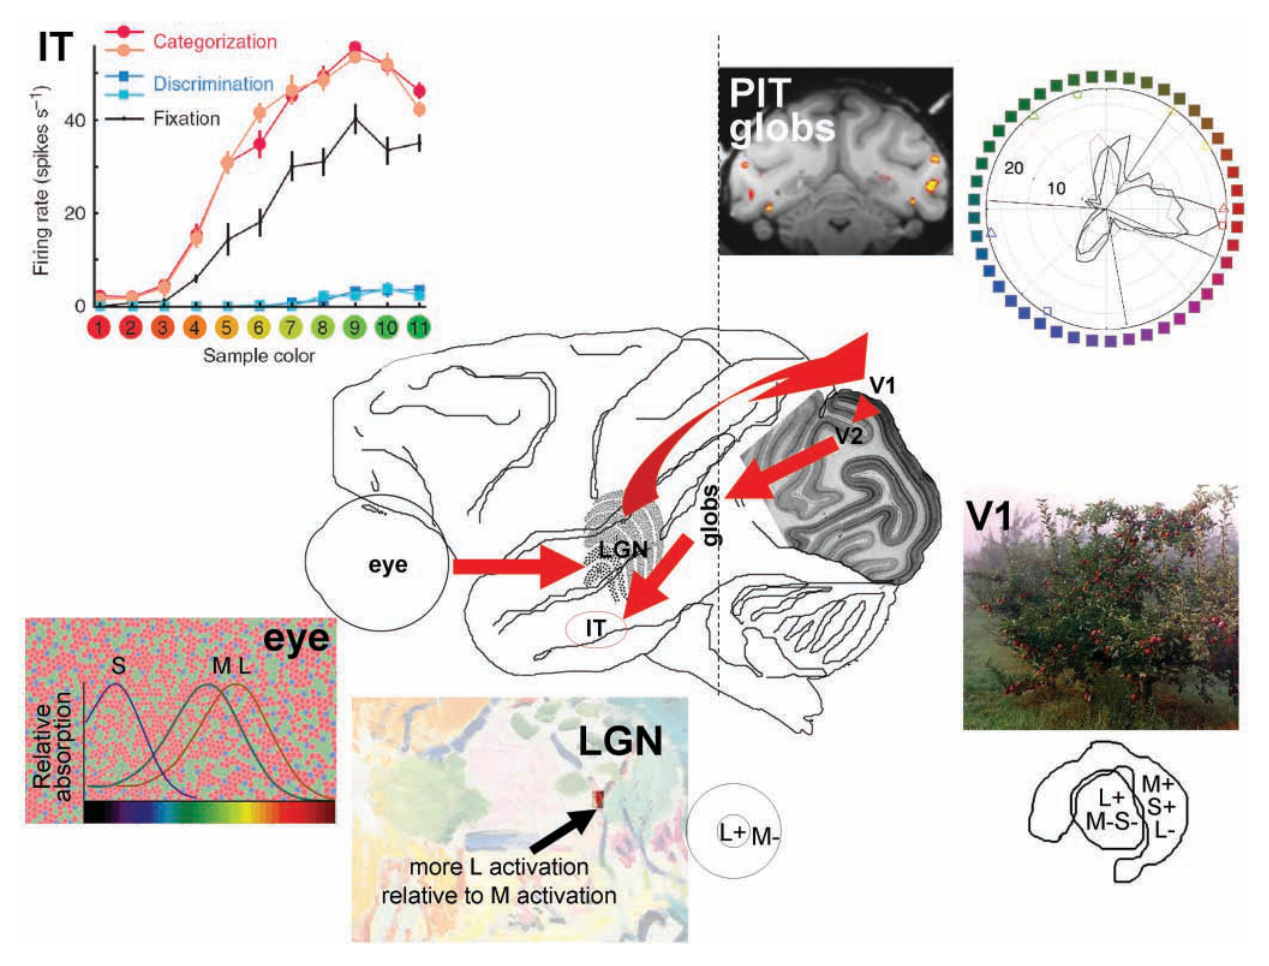
作者的总体策略是"现象倒逼机制":先列举颜色现象(同色异谱、颜色对比/恒常、颜色同化、伪装识别),指出每一现象对神经计算提出的要求——比如恒常性要求对相邻区域做局部比较、同化与对比随观看距离反转暗示存在不同空间尺度的双通道——再用"哪一层、哪类细胞满足这些要求"来组织神经证据。这条逻辑链恰好给了每个层级一个启发式的分工:视锥奠定三色性,视锥对立细胞奠定颜色对立性,V1 双对立细胞生成局部颜色对比并作为恒常性的构件,PIT 的"globs"加工色调(hue),IT 把颜色整合进行为情境。
第二个策略是直面争议而非回避:对 LGN 细胞"为什么叫红-绿细胞却不对应对立色轴"的错位、对 V1 双对立细胞存在性的质疑、对 V4 是否专职颜色的大量相互冲突的报告,作者都逐条摆出双方证据,再提出自己的判断(例如用 globs 与 globs 之间的"inter-globs"来解释 V4 结论的分裂)。这种写法本身就是把"哪些结论可靠、哪些还悬着"交代清楚,比单纯罗列事实更有信息量。
方法
这是一篇综述,没有单一实验设计,但其论证依赖于若干关键实验范式,值得记下。动物模型以旧世界灵长类(猕猴,与人同为三色视觉)为主。测量的核心手段包括:清醒猕猴单单位(single-unit)记录——用"视锥分离刺激"(cone-isolating stimuli,利用不变异性原理,只调制某一类视锥的活动而保持另外两类相对不变)配合逆相关(reverse correlation,随机呈现刺激并回溯每个动作电位之前的刺激位置)重建感受野的二维结构;用等亮度(equiluminant)色栅与黑白栅对比做 fMRI,把对黑白的响应从对颜色的响应中减掉,再重建、膨胀、展平皮层得到全皮层活动平面图;用细胞色素氧化酶(cytochrome oxidase)染色显示 V1 的斑点(blobs)与 V2 的细条纹(thin stripes)。作者团队自己(Conway, Moeller & Tsao 2007)的方案是同一批猕猴先做 fMRI 定位颜色偏好的"globs",再用微电极靶向记录 globs 与 inter-globs,用三套颜色(与背景等亮度、高于、低于背景亮度)检验调谐的亮度不变性。
分析要点上有两个判据反复出现:一是"等亮度敏感性检验"——用亮红暗绿到暗红亮绿的一系列亮度比刺激,对颜色对比敏感的神经元应全程有反应且无零点(null);二是"亮度不变性"——真正的颜色调谐应在大范围的亮度变化下保持稳定,这是颜色知觉的特性,LGN 与多数 V1 细胞不满足,而 globs 细胞满足。
主要结果
-
三色性与视网膜镶嵌的"粗糙"是一体两面。 视锥细胞只能报告"被激活了多少"而不能区分波长与强度(不变异性原理,principle of univariance),所以色觉必须靠比较不同视锥类的信号;这决定了色觉的空间分辨率天然低于亮度视觉,也决定了任何产生相同视锥激活组合的物理刺激都是同色异谱(图 1、图 5)。有意思的是 L:M 视锥比例在个体间从约 1:1 到 1:17 波动,却几乎不影响颜色视觉,说明大脑能对任意的视锥信号组合做出校准。
-
LGN 的视锥对立细胞是色觉的构件,但不做颜色对比。 改为:蓝黄细胞通常具有较大且空间上近乎共延的 S 与 L+M 对立输入;多数 LGN 红绿细胞则对小刺激表现亮度敏感、对覆盖中心与外周的大刺激表现视锥对立,但仍不能解析空间颜色对比。,即它们检测的是亮度对比而非颜色对比(图 6A);群体调谐沿"红-青""薰衣草-青柠"两条主轴(cardinal axes),与人类独特色轴并不对应(图 6B)。这些细胞对大刺激能贡献颜色对立,却无法解析颜色对比。
-
V1 双对立细胞实现空间上的颜色比较。 双对立细胞约占 V1 细胞的 5%–10%,分"红-青"(L 对 M+S)与"蓝-黄"(S 对 L+M)两群;其中心被 L 增高或 M/S 降低激活、外周呈相反的色调安排,感受野常呈新月形而非圆对称,由此带来朝向调谐(图 7A、B)。它们对等亮度刺激有响应且无等亮度零点,是颜色对比与色彩恒常性的神经候选基础;改为:V1 颜色调谐细胞富集于细胞色素氧化酶 blobs,而 blobs 向 V2 的细条纹投射。(图 7C、D)。文中还提出另一类"复合等亮度细胞"(complex-equiluminance cells)负责高空间分辨率下检测与色调无关的颜色边界——这正是识破伪装(图 4)所需要的。
-
PIT 的 globs 是色调表征的关键一站。 同一批猕猴上,fMRI 显示 V2 呈条纹状颜色偏好活动,V3/V3A 几乎没有,而 V4 前方的 PIT 里散布着可重复的"globs"团块;靶向记录显示 globs 细胞绝大多数具有亮度不变的颜色调谐,inter-globs 则多数没有、朝向调谐更强(图 8)。群体最优颜色分布出现三个峰——最大峰对红、其次绿、第三蓝,外加一个偏向黄的隆起,大致对应人类独特色,也与颜色词的语言演化顺序(红最先,黄或绿次之,蓝在后)一致(图 9)。作者由此解释了 V4 之争:说 V4 专职颜色的研究可能打中了 globs,否认 V4 颜色特化的大概记录的是 inter-globs。
-
IT 把颜色与行为挂钩。 IT 皮层 pockets 状的颜色调谐神经元(Komatsu 等 1992)在 fMRI 上也可见;其活动受动物在刺激呈现期间执行的任务调制(Koida & Komatsu 2007),且 IT 颜色调谐细胞的活动模式能预测行为任务中的颜色辨别(Matsumora 等 2008)(图 10)。改为:这些结果提示 IT 颜色表征与行为任务和可能的决策过程相关;颜色信号如何连接运动程序或情绪中枢仍完全未知。
图注解读
图 1 · 彩虹与加色混合:同色异谱的引入
原文图注:Figure 1. A rainbow (left) and additive color mixing (right). Left photo credit, the author (Tanglewood, MA, 2008).
左图是棱镜分光得到的彩虹(光谱中部某波长附近的一段呈"单色黄"),右图是加色混合:把单色红与单色绿混合,可以得到与单色黄看起来完全相同的黄色。这一对"物理上不同、知觉上相同"的黄色就是同色异谱的例子——同色异谱之所以存在,是因为色觉基于三类视锥激活组合的比较,凡产生相同组合的刺激看起来就一样。这张图支撑上文第 1 条结论,为"颜色是计算出来的、不是波长贴标签"立论。
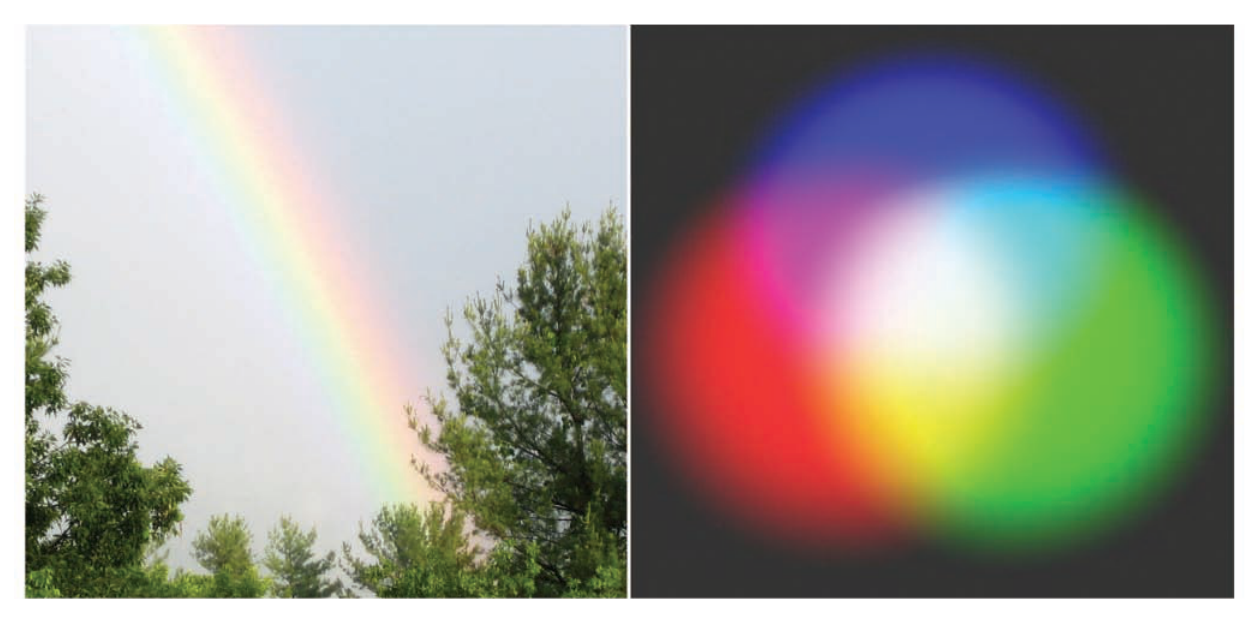
图 2 · 色彩恒常与颜色后像:空间与时间上下文的威力
原文图注:Figure 2. Color constancy illustration by Beau Lotto (top) and color afterimage demonstration (bottom). The patches indicated by the asterisks in the top images are the same. To see the afterimage in the bottom panels, stare at the star on the left and then transfer your gaze to the star on the right.
上半部分是 Beau Lotto 的恒常性演示:带星号的两个色块物理上相同,但整个场景看似被蓝光照明时色块显黄、看似被黄光照明时显蓝、周围是白色时显灰——同一物理刺激因空间上下文而被赋予不同颜色。下半部分是时间上下文的演示:盯着左侧星点再移视右侧,会看到黄色后像;作者解释说黄底把白星诱导成弱蓝,后像是这个诱导蓝的互补色。这张图说明负责颜色的大脑网络同时利用空间与时间上下文,是后文"恒常性靠局部比较实现"论证的现象学出发点。
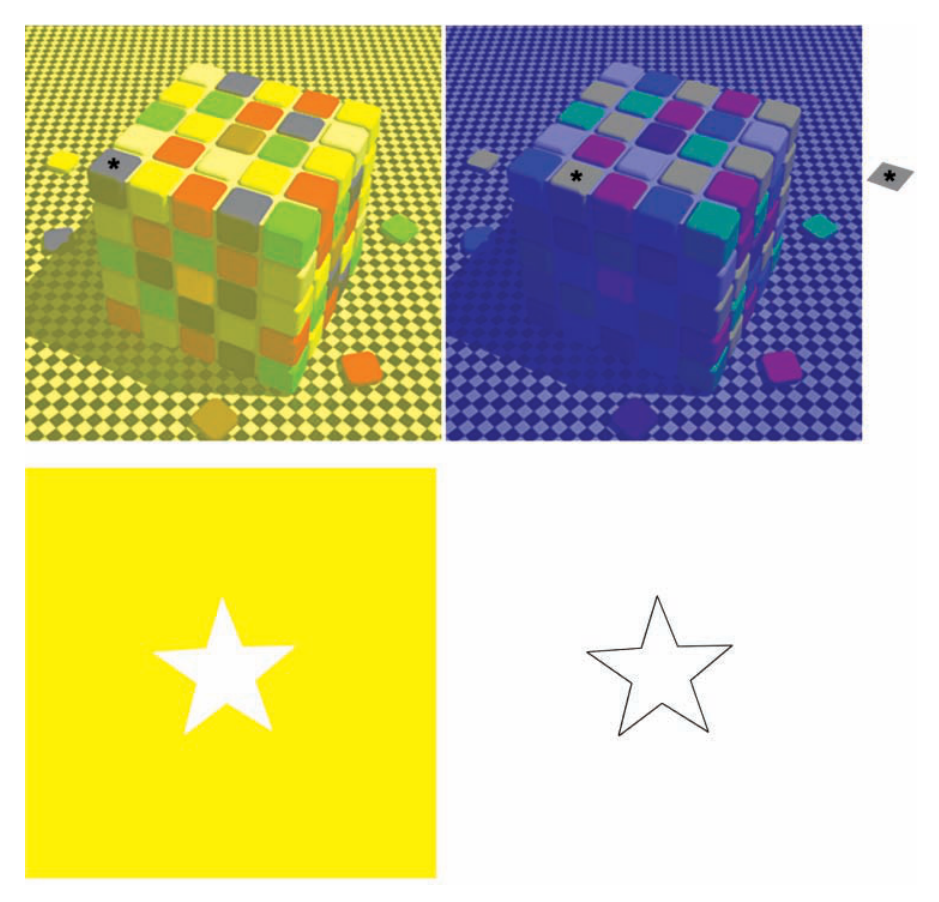
图 3 · 颜色同化:与对比相反的现象
原文图注:Figure 3. Color assimilation demonstration, adapted from Shevell and Kingdom (2008)
"Color"一词的字母 C、l、r 由同一种蓝绿色(turquoise,左侧给出色样)与紫色(C、r)或黄色(l)条纹构成;与黄色条纹配对时蓝绿反而显黄绿,这与颜色对比的预测(黄应衬托出更蓝)正好相反。决定对比还是同化的关键因素是尺度:观看距离变远、条纹空间频率升高时同化更明显,而图 2 的对比效应在远看时减弱。作者借此论证存在低空间分辨率的颜色比较通路,并把同化现象归给"高分辨率的复合等亮度细胞看清条纹、低分辨率的双对立细胞把条纹颜色模糊混合"的分工。
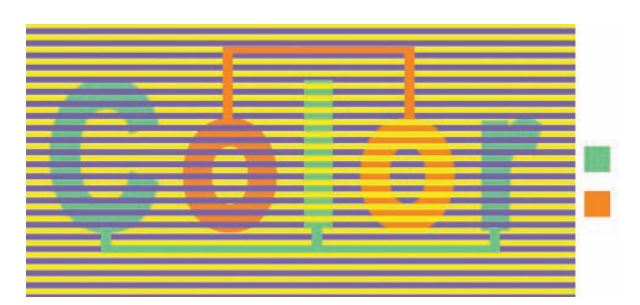
图 4 · 颜色与反伪装:色调不重要,边界才重要
原文图注:Figure 4. Color vision helps defeat camouflage by detecting the location of the color boundaries that demarcate objects independent of the hue forming the boundaries.
图中场景由两色斑块构成,识破伪装的关键信息是"两种颜色在哪里交界",而不是交界处是什么色调——事实上色调信息反而干扰判断(引 Morgan 等 1992)。与色调辨别和颜色对比不同,识破伪装在小尺度色斑(高空间频率)下反而容易完成。这提示颜色信号服务于两种不同任务——检测色调与图像分割——且两者 operating 的空间尺度范围不同,为后文区分双对立细胞(粗尺度、保留色调调谐)与复合等亮度细胞(细尺度、对边界色调不挑)提供了行为学依据。
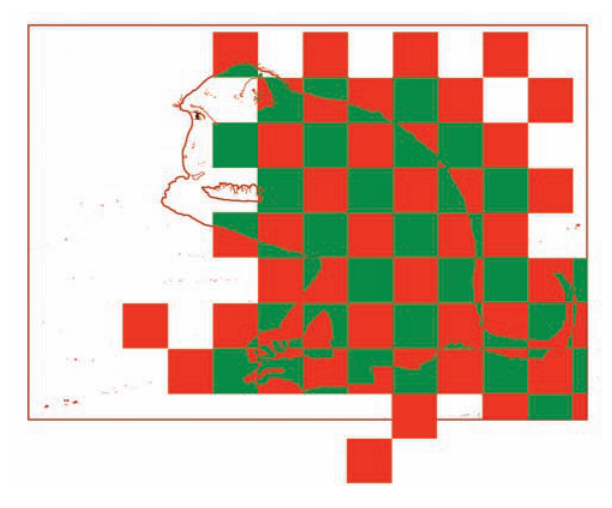
图 5 · 三种视锥的吸收光谱与视网膜镶嵌
原文图注:Figure 5. Absorption spectra of the three cone types (top) and patches of retina from two people with normal color vision (bottom). Bottom adapted from (Roorda and Williams 1999). Cone outer segments are 1 to 5 µm in diameter, with foveal cones smaller than peripheral cones. Scale bar corresponds to 5 arcmin of visual angle.
上半部分是 L、M、S 三类视锥的吸收光谱:L 与 M 峰值仅相距约 30 nm,且都大幅覆盖 S 曲线,意味着几乎任何视觉刺激都会同时激活三类视锥——这正是"必须做相减比较"的计算理由。下半部分是两位色觉正常人视网膜小片的自适应光学成像:L 与 M 视锥呈斑块状随机镶嵌,L:M 比例可从约 1:1 到 1:17,个体差异巨大却几乎不影响颜色视觉。该图支撑第 1 条结论(三色性的物质基础与镶嵌的粗糙性),也解释了颜色分辨率为何低于亮度分辨率。
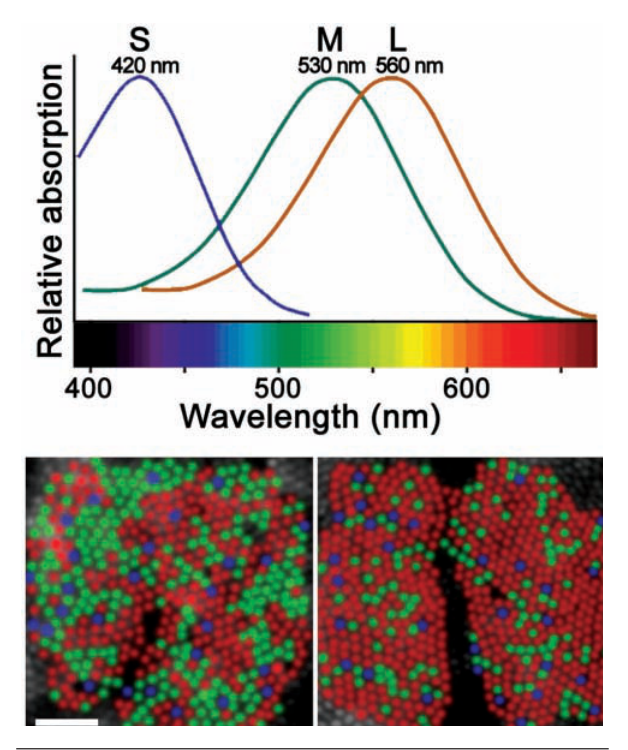
图 6 · LGN 视锥对立细胞:对小斑点看亮度、对大色斑看颜色
原文图注:Figure 6. Responses of a single lateral geniculate nucleus (LGN) cone-opponent cell to spots of different colors and sizes (A), and cone inputs to a population of LGN cells (B). The diagram on the left side of panel A shows a schematic summary of the receptive field of the cell. The cone weights in B are defined as follows. L-cone weight = (response to L-cone stimulation) / [(response to L-cone stimulation) + (response to M-cone stimulation) + (response to S-cone stimulation)]. S-cone weight indicated by distance from the diagonals. A adapted from Wiesel and Hubel (1966); B adapted from Derrington and others (1984).
A 图是一个 LGN 视锥对立细胞对不同颜色、不同大小光斑的反应(左侧示意图概括其感受野;数据改自 Wiesel & Hubel 1966):红光小斑在感受野中心强烈激活它,大红斑却不再增加反应(说明外周并非在色觉上对立于中心),小白斑也激活它(说明中心不做颜色对立),大白斑几乎没有反应(说明外周在色觉上对抗中心),大蓝斑的抑制强于小蓝斑。因此该细胞的最优刺激是暗背景上的亮白(或红)点——它做的是亮度对比,不是颜色对比。B 图把 LGN 细胞群体的视锥输入画在三角坐标里(三个顶点分别是纯 L、纯 M、纯 S 输入;点到对角线的距离表示 S 权重;数据改自 Derrington 等 1984):群体明显聚在几个方向上,调谐轴是"红-青"与"薰衣草-青柠"这样的互补对,而非心理学的红绿、蓝黄轴。该图支撑第 2 条结论,也点出了"LGN 细胞的调谐不对应独特色"这一关键错位。
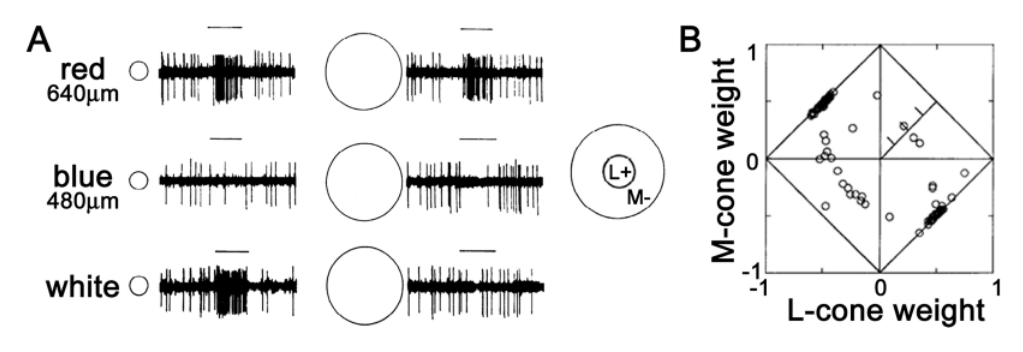
图 7 · V1 双对立细胞的感受野与颜色细胞的皮层聚集
原文图注:Figure 7. Organization of cone inputs to a V1 double-opponent cell (A and B), and anatomical clustering of color cells in V1 (C and D). A, Spatial receptive-field map. Scale of the grid is 0.75° of visual angle. B, Spike-triggered average traces. The receptive-field center (central region of each panel in A) was excited by an increase in L-cone activity (L+) or a decrease in M or S activity (M–, S–), and suppressed by a decrease in L (L–) or an increase in M or S (M+, S+); the receptive-field surround gave the opposite pattern of chromatic tuning. Responses are summarized by the receptive-field diagram at the right. Adapted from Conway and Livingstone (2006). C, Section encompassing V1 and V2, taken parallel to the cortical surface, stained for the metabolic enzyme cytochrome oxidase. Blobs in V1 are indicated by white arrows; thick and thin stripes in V2 are indicated by arrow heads and arrows, respectively. D, Optical imaging map of the same piece of tissue; darker activity indicates higher response to color than to black and white. Scale bar 1 mm. C and D adapted from Lu and Roe (2008).
A、B 用视锥分离光斑加逆相关重建一个 V1 双对立细胞:A 是空间感受野图(网格尺度 0.75°视角),B 是每个格点的尖峰触发平均波形。读法是逐格点看四种视锥分离条件下的反应极性:中心区被 L 增高(L+)或 M/S 降低(M–、S–)激活,被 L 降低或 M/S 增高抑制;外周呈完全相反的色调安排——这就是"既是颜色对立、又是空间对立"的双对立结构,右侧示意图给出总结。此类细胞最优刺激是绿底上的红点,直接对应颜色对比。C 是平行于皮层表面、经细胞色素氧化酶染色的 V1–V2 切片(白箭头指 V1 斑点,箭头/箭分别指 V2 粗、细条纹),D 是同一块组织的光学成像图(越暗表示对颜色的反应相对黑白越强),可见颜色活动与 V1 斑点、V2 细条纹对齐。该图支撑第 3 条结论:双对立细胞存在、结构清晰,且颜色通路在解剖上有专门的聚集与投射通道。
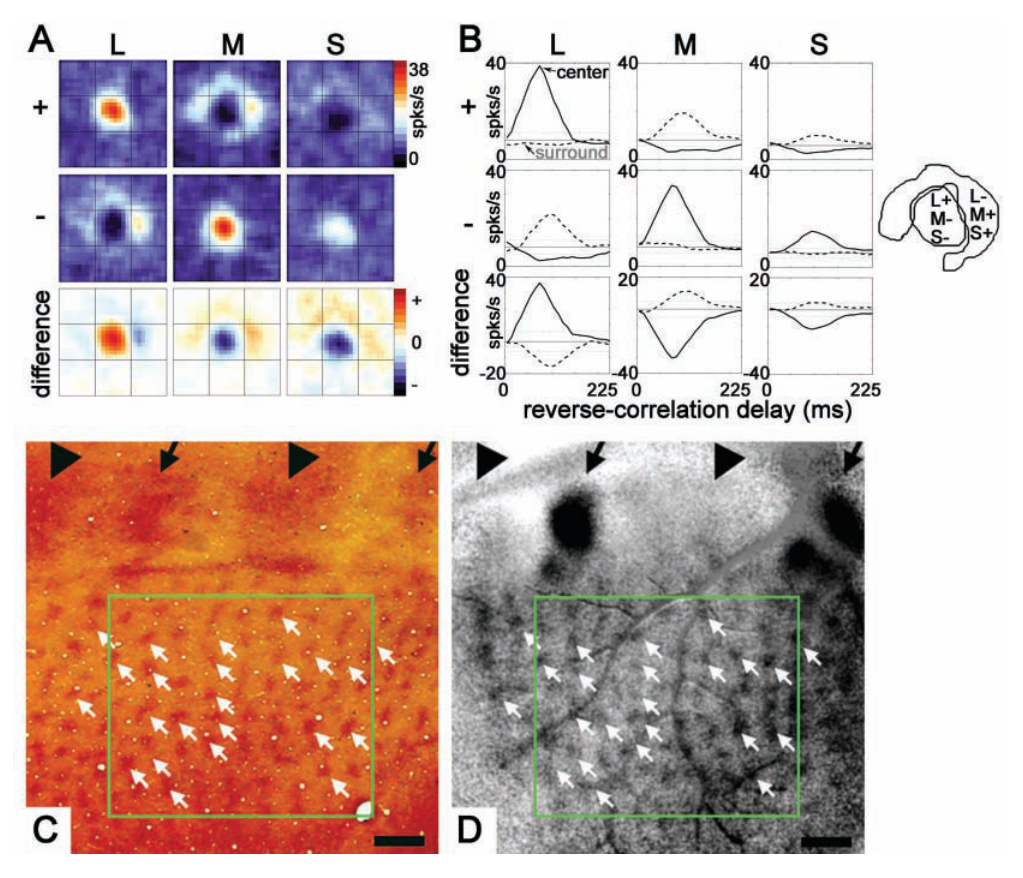
图 8 · 用 fMRI 找到 globs,再用微电极记录它们
原文图注:Figure 8. Flat map of color-biased brain activity in alert macaque monkey revealed with fMRI (A), and single-unit electrodes targeting a color glob (B) and inter-glob (C). Scale bar in A, 1 cm. Bottom panels of B and C show responses from a single glob cell and an inter-glob cell, respectively, to a complete set of colors.
A 图是清醒猕猴的颜色偏好活动的皮层展平图(比例尺 1 cm):等亮度彩色栅减黑白栅的 fMRI 响应在 V2 呈条纹状、V3/V3A 很弱、在 PIT 前区散布成许多点状"globs"。B、C 是随后用单单位电极靶向记录:B 的电极停在某个 globs 内、C 停在 globs 之间的 inter-glob;底部小图分别给出一个 glob 细胞与一个 inter-glob 细胞对整套颜色的反应——glob 细胞的调谐在不同亮度下保持稳定,inter-glob 细胞则不然。这张图是本文叙事的关键证据链:先由 fMRI 给出全脑概览、再由靶向单单位记录给出细胞层面的确认,支撑第 4 条结论(globs 具有亮度不变的颜色调谐、inter-globs 更偏朝向与亮度)。
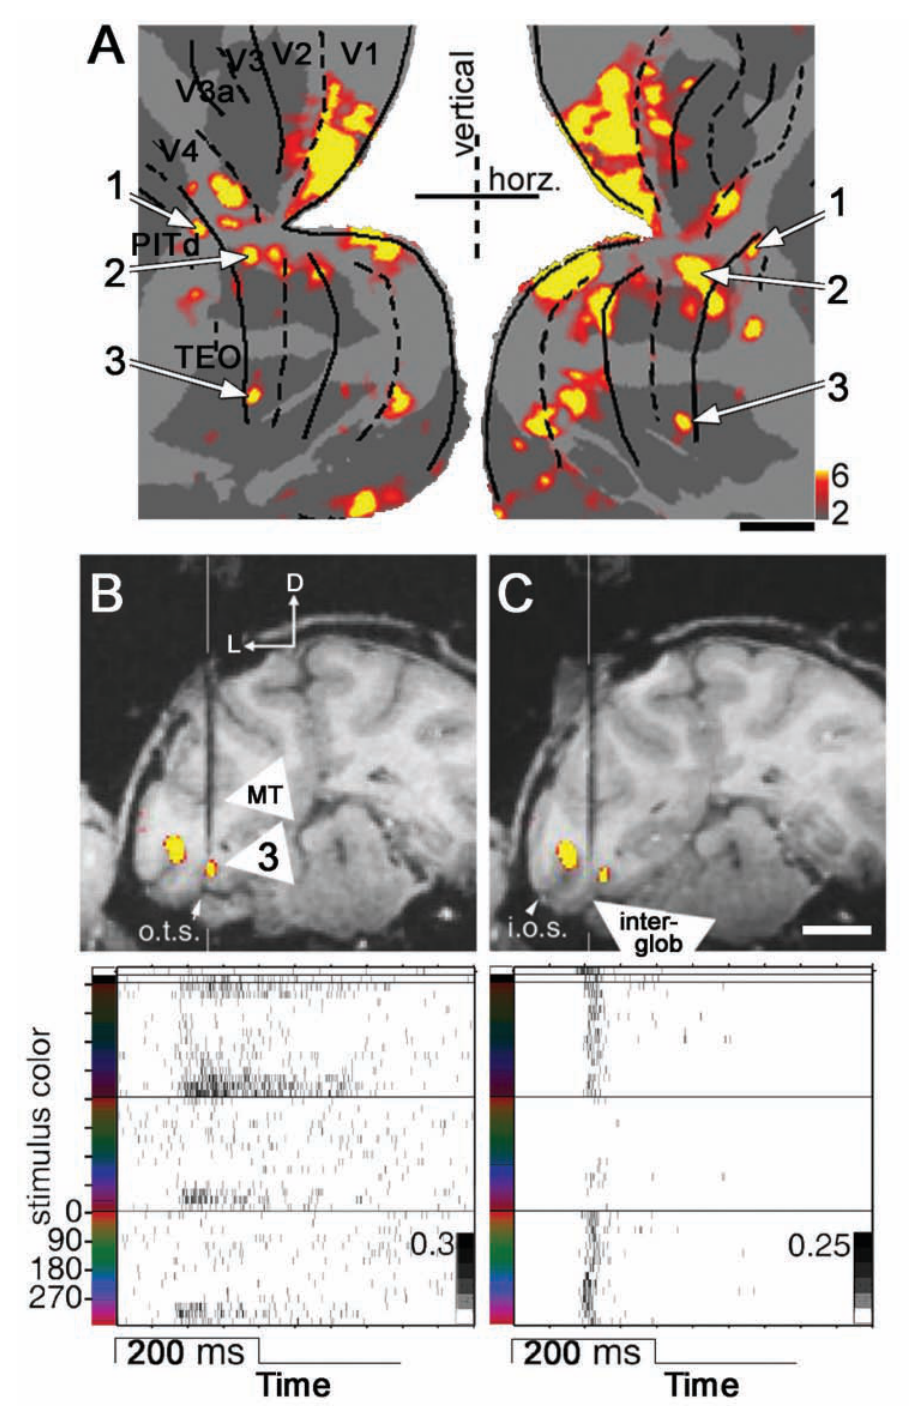
图 9 · globs 细胞群体最优颜色直方图:红、绿、蓝三峰
原文图注:Figure 9. Histogram of optimal color tuning of glob cells. Number of cells tuned to each color shown by the radius. Color tuning was assessed with three sets of equiluminant colors: one set equiluminant (thick dark-gray line), one set higher luminance (thick light-gray line), and one set lower luminance (thin black line) than the adapting neutral field. The cardinal color axes are shown, along with the unique colors from two studies. Adapted from Stoughton and Conway (2008).
这是极坐标直方图:角度是颜色(红-橙-黄-绿-青-蓝-紫绕色环一周),半径是调谐到该颜色的细胞数量。三条线是三套等亮度颜色(与适应的中性背景等亮度的深灰粗线、更亮的浅灰粗线、更暗的黑细线)各自测得的分布,若某条线叠在一起则说明调谐不随亮度变化。读图要点:分布不是均匀的,出现三个峰——最大峰对着红、其次绿、第三蓝,另有一个偏向黄的隆起;峰的位置大致落在来自两项研究的独特色标记附近,且峰的相对大小对应刺激集里三高饱和色的饱和度,也对应颜色词被语言采纳的顺序(红最先,黄或绿次之,蓝随后)。该图是"globs 群体编码色调"的最直接证据,支撑第 4 条结论,也是作者所称"迄今灵长类脑中对独特色最接近的显式神经表征"。
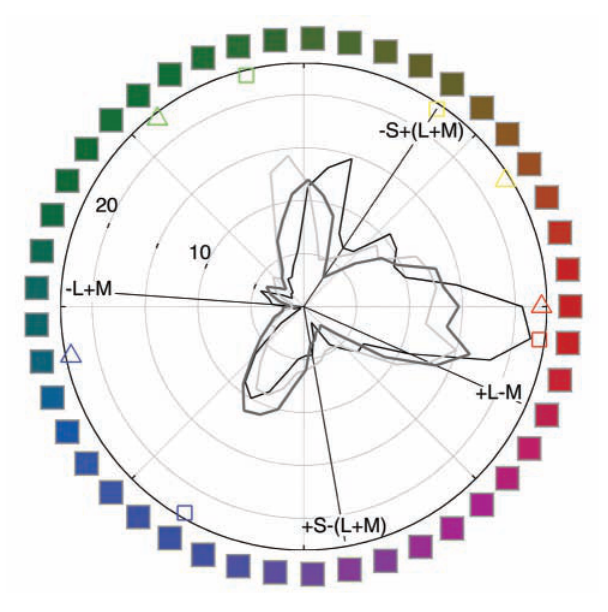
图 10 · IT 颜色调谐受任务调制
原文图注:Figure 10. Color tuning of two neurons measured while the monkey performed a color discrimination task, a color categorization task, or no task (fixation). Adapted from Koida and Komatsu (2007).
图中给出两个 IT 颜色调谐神经元在三种行为条件下的调谐曲线:做颜色辨别任务、做颜色归类任务、不做任务(只注视)。读法是对比同一神经元在三种条件下的反应幅度与调谐形状:任务类型改变了神经元的颜色反应模式,改为:IT 颜色调谐随动物执行的任务而变化,表明颜色表征与行为状态相关;这种调制是行为的原因、结果还是反馈作用,目前尚不清楚。结合同组后续工作(IT 活动模式能预测行为中的颜色辨别),该图支撑第 5 条结论:颜色通路的最末段把颜色表征与行为程序整合起来。
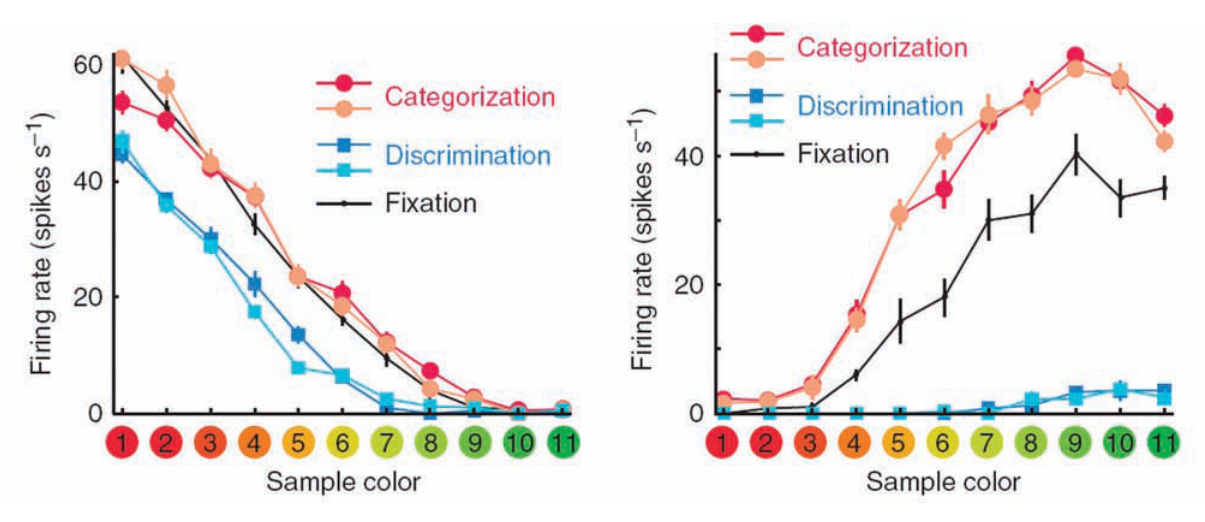
图 11 · 猕猴颜色加工总览图
原文图注:Figure 11. Overview of color processing in the macaque monkey. See Conclusion in text. PIT = posterior inferior temporal; LGN = lateral geniculate nucleus.
这张总览图把全文串成一条链:三类视锥 → 视锥对立神经节细胞(颜色对立的基础)→ LGN → V1 双对立细胞(跨空间比较、算颜色对比与恒常)→ V1 斑点 → V2 细条纹 → PIT 的 globs(群体偏向红、绿、蓝及部分黄)→ IT(与行为程序接口、参与决策)。读图时注意每级旁边标注的"分工":三色性、颜色对立性、颜色对比/恒常性、色调、行为整合。该图即全文结论的图形版,把上面 1–5 条结果收拢为一个层级模型。
讨论
作者的解释框架是明确的层级建构论:每一级都在为颜色知觉补上一块拼图,而判断某级细胞是否参与色觉的标准是"其反应模式是否与颜色现象的特性相配"——LGN 与多数 V1 细胞的调谐随亮度和对比改变、不稳定,与知觉不符;双对立细胞与 globs 细胞的调谐亮度不变,才配得上"颜色"二字。对 V4 之争,作者用 globs/inter-globs 的混录来调和两派结论;对 Lennie 等(1990)"几乎所有 V1 细胞都有某种颜色调谐"的经典结果,作者猜测其中多数只是斑块状视锥镶嵌有限采样的伪迹,真正参与色调辨别的是被他们漏掉的双对立细胞群体。他也坦承大量未解问题:单细胞颜色调谐的细胞计算机制、哪些神经元对色觉必要且充分、场景复杂度为何强烈影响颜色知觉、行为调制是因还是果、反馈连接在颜色加工中的作用等,文中明确说这些都还不知道,连"颜色信号如何接入运动程序与情绪中枢"也是纯推测。
局限方面,作者自己点出的方法论隐忧值得注意:光学成像对技术伪影非常敏感且空间分辨率低(平均了数千个神经元的活动),因此 V2 细条纹内的"色调图"(Xiao 等 2003)还难下结论;而"群体偏向独特色"虽然诱人,其与语言颜色词演化顺序的对应在文中只是相关性观察。与既有文献的对话集中在几条战线上:与 Zeki 的 V4 100% 色调选择性主张及其反驳者的拉锯、与 Livingstone–Hubel 模块化模型的继承与修正(作者认同某些细胞类别的特化,但对"强分离"持保留态度,因为双对立细胞也有朝向调谐和亮度反应)、与"随机布线+功能偏置"模型的争论(LGN 对立性的解剖基础仍未完全说清)。
一句话总结
我自己读下来的感受是:这篇文章最大的价值不在于逐级证据的完备——V2 一层其实相当单薄,色调图的证据链也偏软——而在于它给出了一套可以证伪的分工假设(对立→对比→恒常→色调→行为),并且把"调谐是否亮度不变"这个朴素判据用得极好,让"哪些细胞算颜色、哪些只是顺带动了一下"第一次有了可操作的门槛。若后续工作在 globs 的独特色偏向上翻车,整个层级叙事的后半段就要重写;但作为理解颜色通路的全景入门,它至今仍是我读过最清晰的一篇。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A] - Fig10: 提取质量
good,对齐度full,识别面板[] - Fig11: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[A, B] - Fig7: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig8: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig9: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: IT 的颜色信号被自上而下地塑造 -> 评注: 任务调制是事实,但自上而下方向及因果机制未被证明。
- 审校纠偏: 颜色通路与情绪程序交接 -> 评注: 原文明确指出关于情绪中枢接口尚无知识,仅属推测。
- 审校纠偏: 复合等亮度细胞负责检测与色调无关的颜色边界 -> 评注: 这是作者提出的候选机制,而非直接实验证实的功能归属。
- 补充要点: : (第 286 页)
- 补充要点: : (第 286 页)
- 补充要点: : (第 285 页)
- 补充要点: : (第 286 页)