这篇综述系统整合了猕猴单细胞记录、人类颅内记录、头皮 ERP、fMRI、TMS 与病损研究,论证人脑外纹状皮层存在两个可从面孔系统分离的身体选择性区域——纹外身体区(extrastriate body area, EBA)与梭状回身体区(fusiform body area, FBA),并探讨了它们在身体图式、情绪知觉与动作理解中的功能定位。
研究背景
面孔研究推动了高级视觉皮层功能特化的讨论,但社会性视觉信息并不只来自面孔。身体的形态、姿势和动作同样提供身份、情绪及意图线索,而且人在日常生活中对身体具有大量经验,常需要区分外形相近的个体或姿态。这使身体知觉成为一个独立问题:如果面孔的精细辨认具有相对专门的神经基础,身体形态的辨认是否也有可分离的组织?猕猴下颞叶中对手和身体形状有选择性的细胞,已经说明身体相关信息进入了高级视觉表征;但单细胞偏好本身既不能确定人类的宏观区域,也不能说明这些区域如何参与身体知觉的不同环节。
人类成像随后发现外纹状身体区和梭状回身体区,为系统整理这条证据线提供了空间框架。然而,两者分别邻近运动相关区和面孔相关区,部分激活还发生重叠,因而不能只凭一张平均激活图就认定它们与相邻系统相同或完全独立。静态身体图片、局部肢体、完整姿态与点光运动显示,所需加工也不一致。与此同时,“身体表征”这一说法涵盖了对他人身体的视觉辨认、对自身姿态的感觉,以及动作理解等不同功能。如果把这些任务中出现的活动都归到同一机制,就会混淆形态知觉、运动分析和自我身体状态更新。需要解决的缺口,是将身体选择性的空间分布、出现时间和行为必要性联系起来,再讨论它与更广泛功能的关系。
本文综合猕猴记录、人类颅内与头皮电生理、功能成像、多体素分析、经颅磁刺激及病损证据,考察身体与面孔选择性如何分离,以及身体相关区域在形状辨别中的作用。进一步讨论身体图式、情绪和动作观察,使这些区域被放进功能网络,而非仅作为新增的类别斑块列出。不同手段提供的约束需要分别理解:模式差异说明宏观重叠下仍可存在可区分的信息,刺激干扰则为特定任务中的必要性提供线索。到这篇综述所处阶段,精确定位的患者证据和发育资料仍有限,身体部件与整体加工的分工也带有假说性质。因此,身体区参与动作或情绪任务,不足以直接证明它承担动作理解、情绪判断或身体所有感的全部计算。
研究思路
综述前半部分按空间、时间与因果约束整合六类证据:猕猴单细胞记录与 fMRI 提供细胞层面的选择性及跨物种对应;颅内记录提供毫米级定位与毫秒级时间动态;头皮 ERP 记录无损的时间进程;fMRI 描绘双区解剖分布,并通过多体素模式分析(multi-voxel pattern analysis, MVPA)解决激活重叠下的神经亚群分离问题;TMS 与病损研究则提供因果证据。后半部分将这些区域置于自我与身体图式、情绪知觉、动作理解三个功能语境中,检验身体选择区在各网络中的候选角色,通过多类实验证据的交集明确其功能边界。
方法
综述涵盖的方法包括:猕猴研究中的早期下颞叶单细胞记录(测试手、面孔、几何图形等类别)与大样本神经元群体分析(600 多个 IT 神经元对 1,000 多张自然与人工物体图片的响应模式),以及猕猴 fMRI(对比面孔、身体、水果、人造物与手的激活)。人类颅内记录在癫痫术前评估患者中进行,通过皮层表面电极获取高时空分辨率信号。头皮 ERP/MEG 研究比较面孔与身体(或手)诱发的成分,并借助源定位(source localization)估算皮层起源。fMRI 研究通过(去头)身体与身体部件对比工具、面孔等刺激定义功能 ROI;MVPA 则在体素响应模式层面区分重叠的神经元群体。TMS 通过特定时间窗(150–250 ms)单脉冲或重复脉冲干扰 EBA;病损研究考察卒中后身体相关任务的特异性缺陷;发育研究则使用婴儿 ERP 与呈现人形运动的点光显示器(point-light displays, PLDs)。
主要结果
(1) 猕猴皮层的身体选择性呈聚集分布(图 1)。猕猴 IT 存在对手的形状选择性细胞——对各种朝向、大小、位置的猴手与人手响应强烈,对其他复杂形状和面孔不响应;大样本群体分析进一步显示"有生命 vs 无生命"的响应模式分离,且面孔与身体在模式上互异、单一细胞很少同时选择两者。猕猴 fMRI 发现 STS 内两团身体选择性激活(右侧最强),与面孔选择区相邻且部分重叠;对面孔斑块内神经元的后续记录显示绝大多数为面孔选择性细胞,表明高密度选择性神经元聚集可形成宏观 fMRI 信号,为人脑与猴脑结果提供了对应线索。
(2) 人类电生理记录的时间动态(图 2、图 3)。颅内记录中,位于 EBA 大致位置的电极对(去头)全身图片自刺激后 190 ms 起表现出身体选择性,260 ms 达到峰值,且身体选择性电极对面孔、面孔选择性电极对身体均无显著响应;另有多处电极对手的选择性响应在约 230 ms 达峰。头皮 ERP 上存在身体选择性的负电位 N190,比面孔的 N170 晚约 20 ms,源定位指向不同的外侧枕颞来源;N190 能够泛化至火柴人与剪影等抽象表征,但不泛化至打乱版本;对身体与面孔(而非物体),图像倒置均导致 N1 潜伏期延迟并振幅增大,呈现出构形加工(configural processing)特征。
(3) 人类 fMRI 确定了两个与面孔及运动系统可分离的身体选择区(图 5;解剖位置参见文中图 4)。EBA 位于双侧后下颞沟/中颞回,对静态人形图片响应显著,对面孔、物体及其部件响应较弱,并能泛化至线画、火柴人与剪影,表明其表征抽象于具体视觉细节;对非人动物的响应幅度居中(哺乳类高于鸟类与鱼类),符合基于形体相似度的渐变特征。FBA 位于梭状回,与 FFA 相邻且部分重叠,但高分辨率 fMRI 显示相邻的小斑块各自偏好身体或面孔,MVPA 更显示体素层面的面孔与身体偏好模式互不相关,表明重叠激活下存在不同的神经元亚群。类似的解离模式也见于 EBA 与 hMT(运动区)、FBA 与 FFA:点光动画的选择性与身体选择性正相关,而与简单运动或面孔选择性不相关。
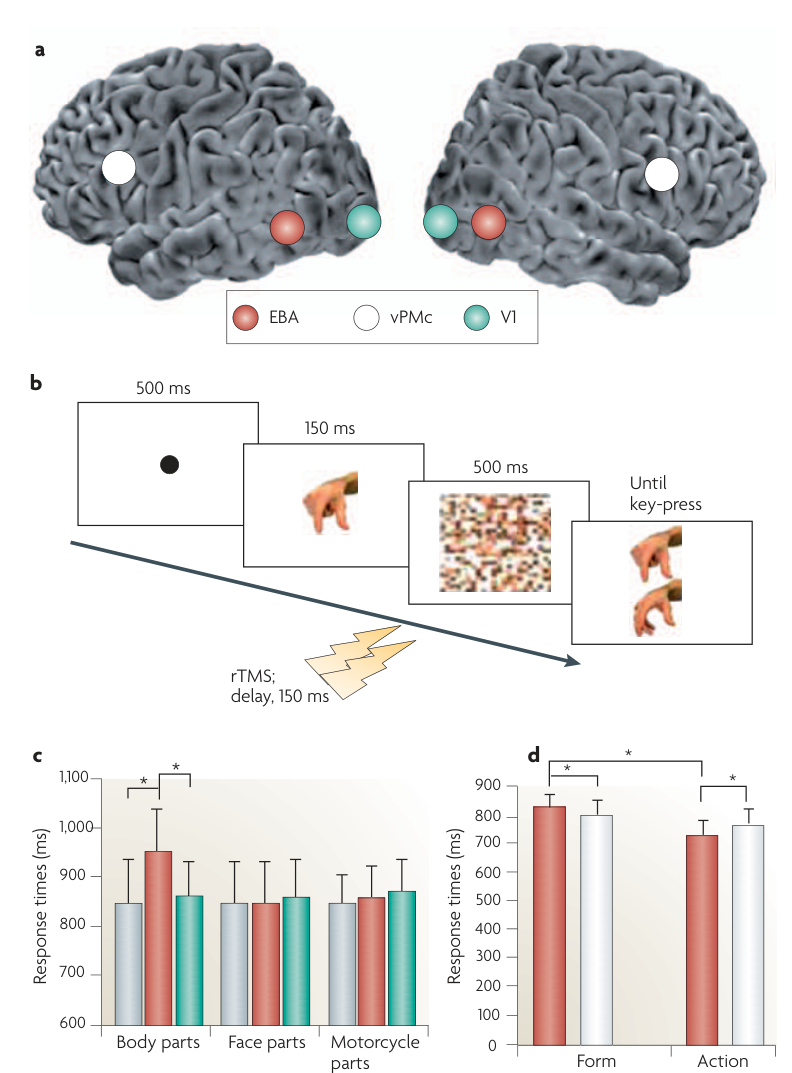
(4) EBA 的因果作用(图 6)。TMS 在刺激后 150–250 ms 干扰 EBA,特异性损害身体部件的延迟匹配任务,不影响面孔或摩托车部件;另一项研究显示干扰 EBA 损害对身体部件形状(身份)的判断,而干扰腹侧前运动皮层(ventral premotor cortex, vPMC)则显著减慢动作判断,表明 EBA 与前运动镜像系统存在功能解离。TMS 产生干扰的时间窗与 ERP(190 ms)及颅内记录(230–260 ms)的身体选择性峰值相吻合。
(5) 身体选择区在三个功能域中的角色各有证据约束: - 自我与身体图式:EBA 在被试执行无视觉反馈的自主手/足运动时也有激活(可能通过本体感觉或伴随放电更新身体表征),但与视觉知觉激活的重叠区域仅 14–19%,且 MVPA 显示运动调制与身体选择性在体素层面不相关,表明二者机制相对独立;右侧 EBA 对非中心视角(allocentric,他人视角的身体部位)有微弱但稳定的增强,但对身体归属(自身或他人)不敏感。 - 情绪知觉:情绪性身体姿态能引导注意分配(半侧空间忽视患者面对忽视侧的情绪姿态时,朝向健侧的注意力偏向减轻)、在无初级视皮层(V1)时被内隐知觉(提示丘脑枕-杏仁核通路参与),并调节 EBA 与 FBA 活动(跨被试分析显示其与杏仁核活动相关);面孔与身体情绪一致时识别更快,该一致性效应在 ERP 上最早出现于 115 ms。 - 动作知觉与镜像系统:时间连贯的完整动作激活 pSTS 与额顶镜像系统,而帧间姿态差异更大的非连贯动作序列反而对 EBA 和 FBA 产生更强激活,提示 EBA/FBA 并非动作理解的核心执行网络,主要提供身体形态的静态视觉快照。
图注解读
图 1 · 猕猴证据:从手选择性细胞到 STS 身体斑块
原文图注:Figure 1 | Key findings from non-human primates. a | Orange indicates the region investigated in early single-unit recording studies of macaque inferotemporal cortex15–17. b | Increasing responses to progressively more hand-like stimuli in a neuron from macaque inferotemporal cortex. Numbers reflect approximate relative magnitude of responses to different stimuli. c | Spike histograms and schematic stimuli from an investigation of a hand-selective neuron15. This neuron seems to be selectively tuned to the general form of the hand. The response to faces is low, ruling out a general response to all biological stimuli. The response to hand-like geometric stimuli is also low, demonstrating the specificity of the response to realistic hand shapes. d | Closely neighbouring regions of the superior temporal sulcus (STS) in the macaque are selectively activated in functional MRI by images of faces (left), as compared with bodies, fruits, artefactual objects and hands. This is also true for images of bodies (right), as compared with faces, fruits, artefactual objects and hands. Ce, central sulcus; Ip, intraparietal sulcus; L, lunate sulcus; La, lateral sulcus; Oi, inferior occipital sulcus; Tma, anterior middle temporal sulcus; Tmp, posterior middle temporal sulcus; Ts, superior temporal sulcus. ……
图中呈现了猕猴研究的递进证据:面板 a 标出早期单细胞记录所探索的下颞叶区域;面板 b、c 展示手选择性细胞的调谐特征:b 显示响应幅度随刺激接近真实手形而逐步递增,c 用发放直方图显示该神经元对真实手形响应强烈,但对面孔及手状几何图形响应微弱,说明其选择性针对手的一般形态而非泛化的生物或几何形状;面板 d 为 fMRI 结果,显示 STS 内相邻区域分别对面孔(左)和身体(右)表现出选择性激活。这些数据支撑主要结果 (1),表明身体加工系统与面孔系统在解剖上相邻但相互分离。
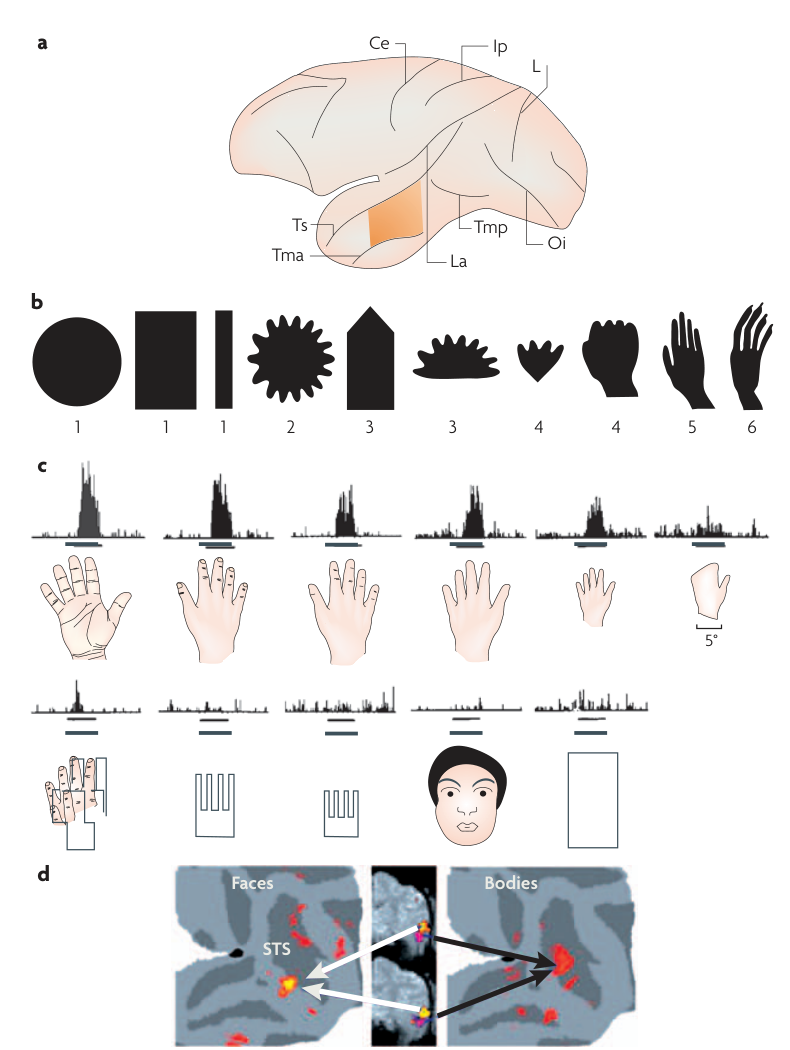
图 2 · 颅内记录:身体选择性电位的位置与时间
原文图注:Figure 2 | Key findings from intracranial recordings in humans with epilepsy. a | A summary of hand-selective negative potentials (indicated by red lines) peaking at approximately 230 ms post-stimulus. Blue lines indicate the response to images of faces, and green lines the response to images of objects. Red spots indicate body-selective recording sites across different patients. Red crosses indicate the average position of the inserted electrodes. b | Pre-surgical intracranial recordings from a patient with epilepsy reveal an electrode at the approximate location of the extrastriate body area28 (electrode 15; indicated by the yellow box) that is body-selective (red line) from 190 ms post-stimulus, relative to faces (blue line), tools (green line) and animals (black line)29. Panel a modified, with permission, from REF. 27 © (1999) Oxford University Press. Panel b modified, with permission, from REF. 29 © (2007) Elsevier Science.
面板 a 汇总了多名癫痫患者的颅内电极记录:红点表示手选择性记录位点,红线为约 230 ms 达峰的负电位响应,蓝线和绿线分别代表同一批位点对面孔和物体的响应;面板 b 显示单例记录:位于 EBA 临近区域的 15 号电极(黄框标出)自刺激后 190 ms 起表现出对身体图片(红线)的选择性响应,明显强于面孔(蓝)、工具(绿)和动物(黑)。该图支撑主要结果 (2),证实身体选择性在人脑皮层具有高空间定位与时间动态,且记录位点与面孔选择性电极相互分离。
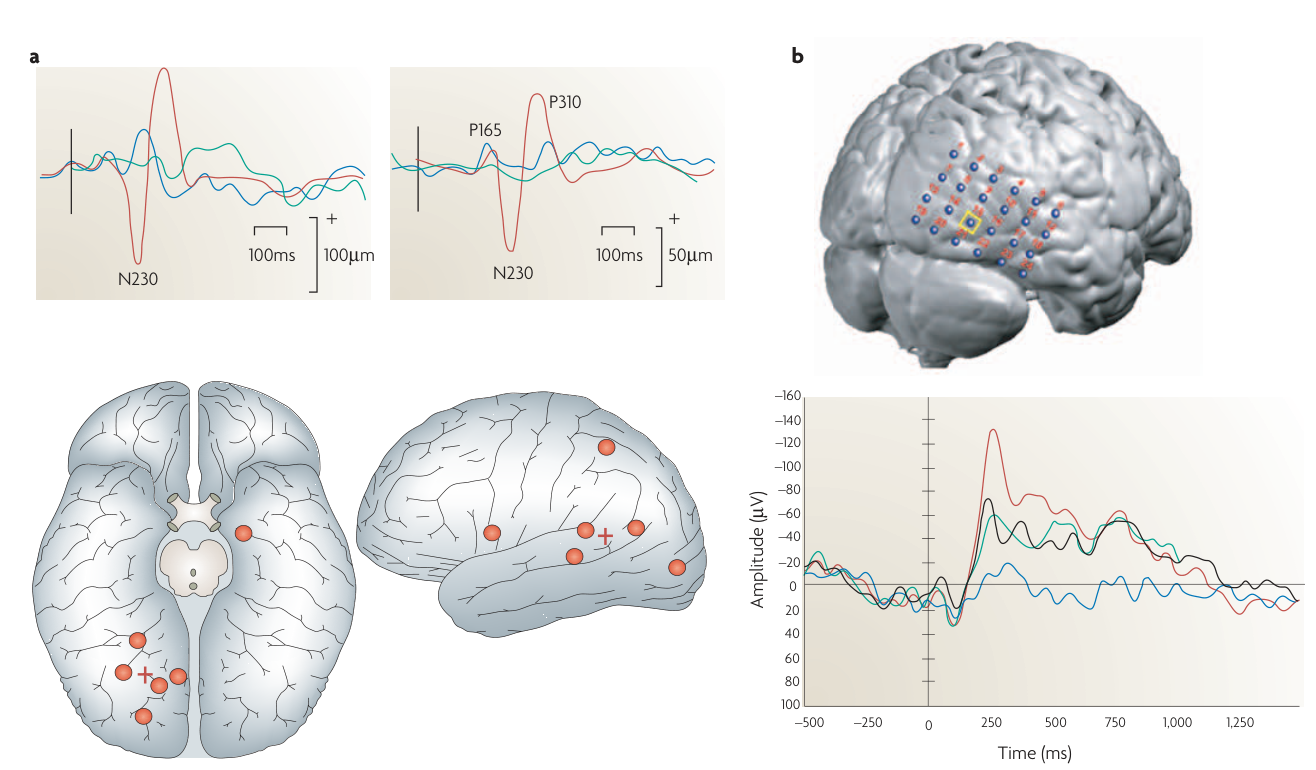
图 3 · 头皮 ERP:N190 与构形加工
原文图注:Figure 3 | Event-related potentials reveal similar, but distinct, responses to faces and bodies. a | A body-selective event-related potential (ERP) negative (N1) peak is centred approximately at electrode P8, the site from which the data in the remaining panels were acquired. b | The body-selective response (red line) peaks at 190 ms post-stimulus, about 20 ms later than the response that is elicited by pictures of faces48 (blue line), and roughly the latency at which body selectivity has been observed in intracranial recordings of occipitotemporal sites in human patients with epilepsy (FIG. 2). c | This body-selective 'N190' generalizes to abstract depictions of the body, distinguishing between intact and scrambled stick figures, and between intact and scrambled human silhouettes48. d | For both bodies (left graph) and faces (middle graph), but not objects (right graph), stimulus inversion delays and amplifies the N1 response43. Panels b and c modified, with permission, from REF. 48 © (2006) Elsevier Science. Panel d modified, with permission, from REF. 43 © (2004) Lipincott Williams & Wilkins.
面板 a 显示地形分布:身体诱发的 N1 负峰集中在右侧枕颞区电极 P8 附近,后续面板数据均源自该电极;面板 b 显示,身体刺激(红线)在 190 ms 处达到负峰,比面孔刺激(蓝线)诱发的 N170 晚约 20 ms,其潜伏期与图 2 颅内记录基本吻合;面板 c 表明 N190 能够泛化至抽象形态:完整火柴人与完整剪影均能比各自的打乱版本诱发更显著的响应差异,表明该表征独立于表层纹理特征;面板 d 显示,对身体和面孔(而非无生命物体),图像倒置均导致 N1 潜伏期延迟并振幅增大,呈现出相似的构形加工效应。该图支撑主要结果 (2) 中关于身体表征时间进程与构形加工特性的结论。
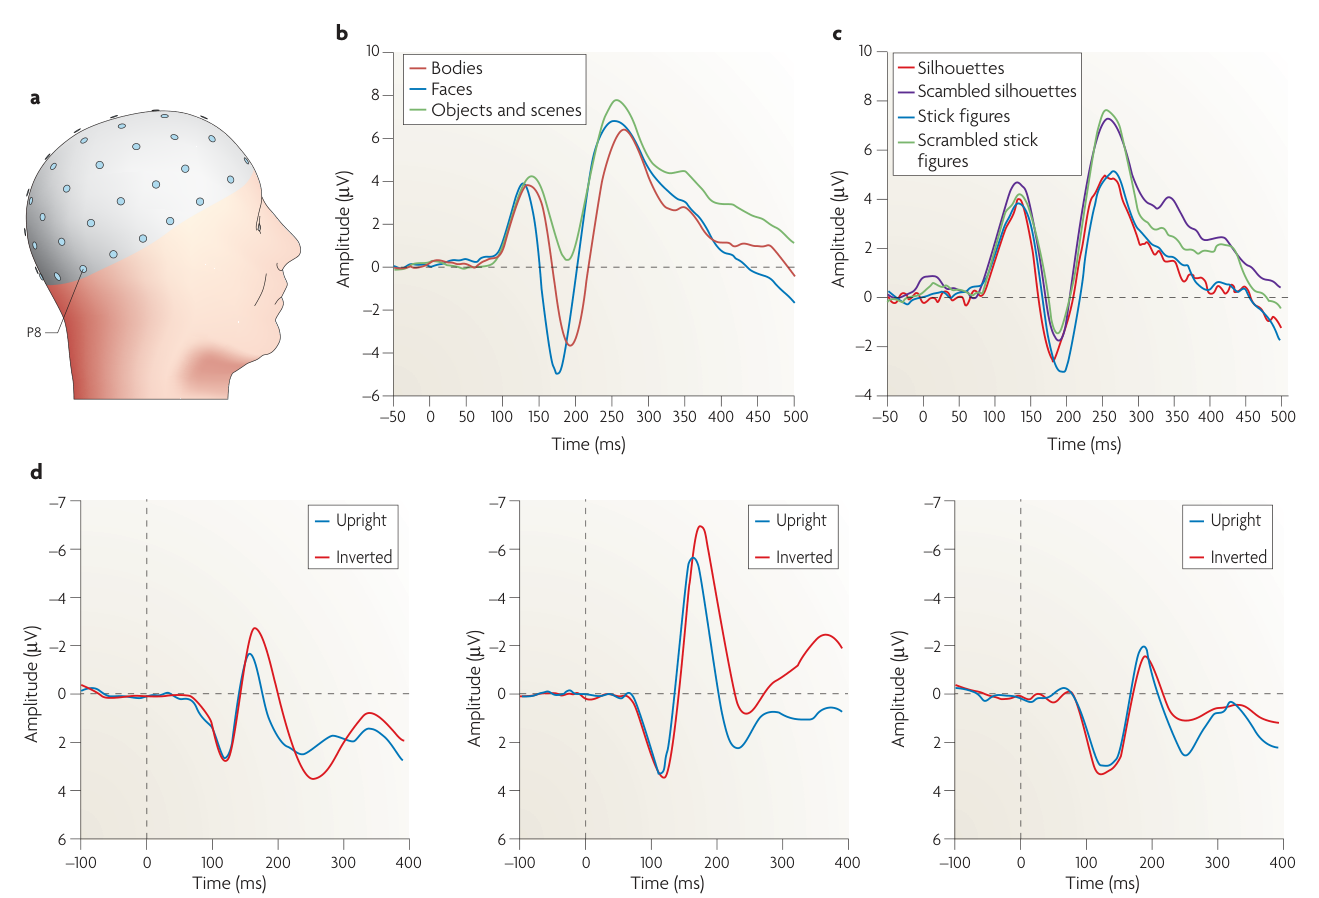
图 5 · MVPA 解开重叠的激活
原文图注:Figure 5 | Disentangling the regions of the occipitotemporal cortex. a | Multi-voxel pattern analyses (MVPA) of functional MRI (fMRI) data disentangle inferior temporal sulcus (ITS) responses to bodies, objects, simple visual motion and biological motion (see also BOX 1). Bodies, objects, 'point light' animations of human movements and simple oscillatory motion all activate similar regions of the ITS in human fMRI studies (see rendering at top of figure). These responses can be difficult to disambiguate — for example, even when only the single most object-selective voxel from this region is tested across individuals, significant motion, biological motion and body selectivity is found59. Pattern analyses consider the local variations in selectivity across the voxels of the region as a whole. They reveal that body and biological motion selectivity have significant positive correlation, indicating that they engage similar underlying neural populations (that is, the extrastriate body area). By contrast, the variations in motion and object selectivity are uncorrelated with each other and with body selectivity, indicating distinct underlying neural systems59,60. b | Similarly, MVPA of fMRI data disentangle posterior fusiform gyrus responses to bodies, faces and biological motion (see also BOX 1). Voxelwise pattern analyses reveal that body and biological motion selectivity show significant positive correlation, indicating that they engage similar underlying neural populations (that is, the fusiform body area). By contrast, these patterns are uncorrelated with the pattern that is elicited by faces, indicating a distinct underlying neural system (that is, the fusiform face area)60.
该图展示了利用 MVPA 分离宏观重叠激活的逻辑:在下颞沟(ITS)区域(面板 a),身体、物体、点光动画与简单振荡运动在常规单变量激活分析中均有重叠,甚至物体选择性最高的体素也对运动和身体有显著响应;但体素偏好模式相关分析显示,仅身体选择性与生物运动选择性呈显著正相关(提示共用 EBA 神经元群体),而运动与物体的偏好模式彼此不相关,也与身体模式无关,表明其由不同神经系统支撑。后部梭状回(面板 b)呈现类似规律:身体与生物运动选择性显著正相关(FBA),但与面孔偏好模式无关(区分于 FFA)。该图支撑主要结果 (3),表明宏观重叠激活下存在不同的神经表征结构(两个区域的解剖定位见原综述图 4)。
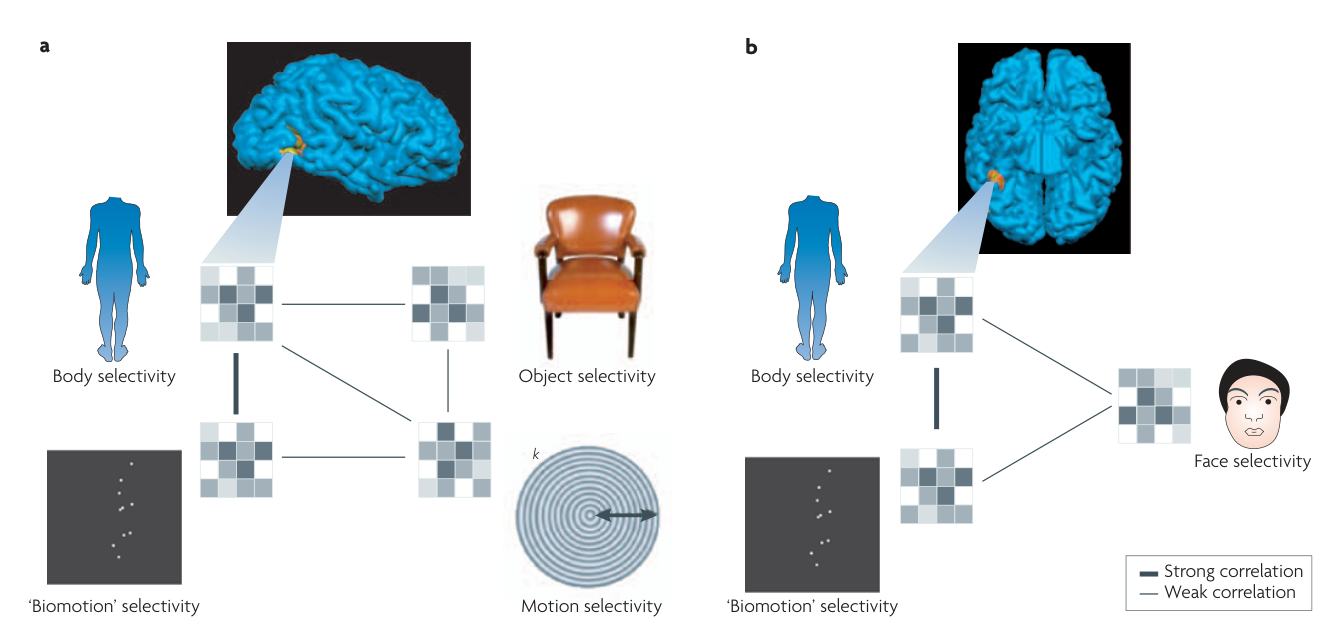
图 6 · TMS:EBA 的因果角色与 EBA–vPMC 双分离
原文图注:Figure 6 | Transcranial magnetic stimulation studies of the involvement of the extrastriate body area in body-perception tasks. a | The cortical sites stimulated in two studies82,134 — the extrastriate body area (EBA), the ventral premotor cortex (vPMC) and the primary visual cortex (V1). b | Stimulus timing parameters. Two transcranial magnetic stimulation (TMS) pulses were delivered in the interval of a short-term visual memory task in which subjects were asked to compare the initial sample item with two test items, and in which the comparison was based either on identity (form) or on the action implied by the image. c | Repetitive TMS (rTMS) over the EBA (red bars) slows response times to judgments on body parts, but not face or object parts, whereas rTMS over the V1 (green bars) and sham stimulation (grey bars) have no effect82. d | rTMS over the EBA (red bars) and the vPMC (white bars) has differential effects on judgments of body part identity (form) or implied action: form tasks are disrupted by EBA stimulation, and action-judgment tasks are disproportionately slowed by vPMC stimulation134.
面板 a 标示两项 TMS 研究涉及的刺激位点(EBA、vPMC 与 V1);面板 b 显示任务时序:在短时视觉记忆匹配任务(基于形状身份或隐含动作进行比较)的保持间隔施加双脉冲 TMS;面板 c 显示,对 EBA 施加重复 TMS 显著减慢对身体部件的识别反应时,而不影响面孔或摩托车部件判断,V1 刺激与伪刺激对照均无抑制效应,表明 EBA 对身体部件形状表征具有因果必要性;面板 d 显示,EBA 刺激特异性干扰形状(身份)判断,而 vPMC 刺激则显著减慢隐含动作判断,证实了 EBA 与腹侧前运动皮层(vPMC)的功能双分离。该图支撑主要结果 (4)。
讨论
综述的核心论点是:身体知觉在外纹状皮层诱发特异的神经活动,各实验范式的证据均支持身体系统与面孔系统在解剖与功能上的可分离性,即便在宏观激活重叠的梭状回内,细粒度模式也对应不同的神经亚群。作者提出了功能分工假说:EBA 主要表征身体部件与静态姿态快照,FBA 则整合更为完整的身体构形表征(基于局部部件偏向 EBA、整体形态偏向 FBA 的实验证据),而后部梭状回则可能为面孔与身体信息的交互提供基础(例如在远距离识别中由身体形态补充身份信息);这些静态视觉表征与来自运动区的信息结合,为镜像神经系统提供知觉输入,但 EBA 本身并不直接承担运动镜像计算。此外,该假说对接了 Kanwisher 的功能特化观点、与 Tarr/Gauthier 专家化假说的争论(Box 2 指出梭状回重叠在宏观上支持加工过程特异观,但在微观模式上支持领域特异观),以及 Giese 和 Poggio 的生物运动计算模型。
文章指出的局限性主要包括:EBA/FBA 与邻近的 hMT、FFA 存在体素级空间重叠,对单变量分析构成挑战;选择性 EBA 损伤的临床病例极为罕见,脑卒中患者表现出的姿态、语义与结构性身体表征三重分离主要定位于左颞叶,尚未能精确归因于 EBA 或 FBA;面孔失认症患者罕有合并身体知觉缺陷的报告,其原因尚不明确(可能涉及 FFA 损伤范围差异、临床检测缺失或未受损区域代偿);自主运动激活 EBA 的机制(本体感觉反馈、伴随放电或注意混淆)仍无定论;儿童发育数据尚不充分,负责运动与知觉加工的 EBA 神经元亚群关系仍待验证。
一句话总结
这篇综述系统梳理了 EBA 与 FBA 的神经生理与功能成像证据,借助多体素模式分析(MVPA)明确了身体选择性与面孔、运动系统的分离,并提出了身体表征向情绪与镜像网络提供视觉快照输入的功能框架,同时指出了因果与病损证据的早期局限。