该研究将功能磁共振定位、靶向微电极记录与电微刺激 fMRI 相结合,系统探索了猕猴颞叶的场景加工神经回路。作者在猕猴枕颞沟内定位了外侧位置斑块(lateral place patch, LPP),通过单细胞记录证实其内部高度富集场景选择性神经元,并借助微刺激技术揭示了 LPP 与海马旁回内侧位置斑块(medial place patch, MPP)等区域组成的皮层场景网络。研究为探讨人类海马旁位置区(PPA)的灵长类同源结构及场景表征的细胞级计算机制提供了重要实验证据。
研究背景
场景视觉连接着物体识别与空间导航,却不能简单由两者中的任一套已知机制代替。啮齿类研究发现,位置、网格和头朝向等空间信号受到视觉输入影响,但这些输入如何被加工后送入内嗅皮层和海马,仍缺少细胞层面的说明。主动导航又同时带来视觉、前庭、触觉及运动信息,使视觉表征难以单独辨认。灵长类具有发达的视觉系统,因此一个自然的问题是:在形成空间记忆之前,颞叶是否已存在专门组织场景信息的神经群体,它们编码的究竟是环境布局,还是场景中常见的形状与表面特征?
人类功能成像已定位出海马旁、压后及枕叶的场景选择性区域,为寻找这样的系统提供了参照。海马旁位置区对场景的偏好,以及视角改变或镜像变换影响适应的结果,促成了空间边界和布局编码的解释;但其对纹理、材料及物体配置的敏感性,又表明单一几何描述可能不够。更根本的测量限制在于,一个体素对场景反应强,不能直接说明其中每个神经元都检测完整场景;适应或多体素模式的差异,也未必能唯一反推出单细胞选择性。猕猴面孔斑块研究已经展示了另一条路径:先用成像定位功能区域,再以单细胞记录检查其组成,并通过刺激观察相关区域的响应。这为场景加工提供了可借用的实验框架。
本文将这一框架用于猕猴颞叶,先寻找场景相对于物体和纹理的响应热点,再记录神经元,并以微刺激结合成像寻找可能关联的区域。自然场景、线画、合成房间及部件组合分别用于区分空间布局、纹理、物体内容和局部轮廓的贡献,使“场景区”成为可拆解的编码问题。研究并不预设场景细胞必须具有海马位置细胞那样的性质,也不以宏观激活相似直接认定人猴同源。尤其需要保留的是,微刺激诱发远处活动本身不确定单突触连接,静态图片下的选择性也不证明这些区域对真实导航必不可少。本文能建立的是视觉场景网络的候选节点及其表征特性;它们与海马空间编码、人类场景区以及主动寻路行为的关系,仍需独立证据衔接。
研究思路
研究采用三阶段递进的方法体系:先用 fMRI 在猕猴脑里定位场景选择性区域;再在定位区内做单细胞记录,验证该区域是否真由场景选择性细胞组成(而不只是血氧信号的巧合);最后用微刺激 fMRI 探查该区域的解剖连接,画出网络。该设计的优势在于,fMRI 定位给出的"热点"必须经过单细胞层面的独立验证,而连接问题则用微刺激给出功能连接而非仅凭追踪剂推断。刺激设计上还有一个刻意的保守:由于实验猴从不出户外,场景刺激只用室内场景(熟悉与不熟悉各半),避免把"没见过的东西"误判为不偏好场景。
方法
三只雄性恒河猴。MRI 在 3T 水平孔磁体中进行:解剖像在右美托咪定麻醉下采集(0.5 mm 各向同性体素),功能像在清醒注视状态下用 EPI 序列采集,注射氧化铁纳米颗粒对比剂 ferumoxytol(8 mg/kg)以提升信噪比。场景定位器采用 24 秒块设计交替呈现场景块、非场景块(物体、纹理)与网格打乱刺激,另有碎裂场景(fractured scenes)与房间线画块;每块 16 图,刺激约 23×15 度。
单细胞记录 targeted 到 fMRI 激活区:电极以非垂直角度进入灰质,在灰白质边界以远 2–3 mm 范围内记录,所有隔离出的单元不论响应特性一律记录(避免选择偏倚)。记录时刺激呈现 100 ms、间隔 100 ms,随机顺序,刺激约 55×39 度以营造沉浸式视野(对照实验显示缩小到 35×24 度不改变场景选择性)。微刺激用 300 μA、300 Hz 电荷平衡双相脉冲,每秒一个 200 ms 脉冲串,同时采集 EPI,微刺激开/关块每 24 秒交替。分析窗口:LPP 取刺激后 100–250 ms,MPP 取 75–150 ms;场景选择性指数(scene selectivity index, SSI)定义为场景均值与非场景均值之差除以两者之和;群体解码用朴素贝叶斯分类器(每组 25 个视觉响应细胞,1,000 次子集抽样)。
主要结果
(1) fMRI 在全部三只猴中定位到 LPP:枕颞沟内、V4 前方的一个边界清晰区域,对场景的响应显著强于物体和纹理(图 1),且与人类 PPA 的定位逻辑形成直接对照(同一批刺激在人类被试中激活 PPA,时间曲线相似)。此外还观察到 LIP、推测的 V3A/DP 的一致激活,以及两只猴在顶枕沟前部(anterior parieto-occipital sulcus, APOS)的场景选择性激活。
(2) LPP 内部确实充满场景选择性单元(图 2)。共记录 294 个单元,其中 275 个(94%)有视觉响应;46%(127/275)的 SSI ≥ 1/3,即对场景的平均响应至少是非场景的两倍(中位数 0.304)。这些细胞像猕猴中层面孔斑块的细胞一样对多种刺激都有响应,这与啮齿类海马"位置细胞"的风格截然不同。而 LPP 后方 3 mm 的对照区(41 个单元、90% 有视觉响应)只有 1 个达到该阈值(中位数 −0.01),显著少于 LPP(p<10⁻⁷)。
(3) 微刺激揭示出网络(图 3、图 4)。刺激 LPP 时,除了同侧枕颞沟内的激活,还在解剖上不连续的海马旁回内侧引发强激活,作者命名为 MPP;V4V、推测的 DP 和颞中沟下支也被激活。在 MPP 记录到 113/228(50%)的单元有视觉响应(远低于 LPP 的 94%,p<10⁻³⁰),其中 27%(31/113)的 SSI > 1/3(中位数 0.16);LPP 与 MPP 的响应潜伏期几乎相同(120 对 123 ms),但 LPP 的响应时程几乎是 MPP 的两倍(155 对 90 ms,p<10⁻¹⁴)。MPP 旁侧 24 个单元无一有视觉响应,说明两个斑块是功能上分立的区域。一个有趣的插曲:MPP 在被动注视的场景定位器 fMRI 中并不稳定激活,作者认为这与 MPP 中大量非视觉响应细胞有关——单细胞与微刺激结合才把这个"隐身"的斑块挖了出来。
(4) 群体编码偏向场景(图 5、图 6)。朴素贝叶斯分类器显示,LPP 群体区分"场景 vs 场景"与"场景 vs 非场景"的精度一样高(均 92%),但区分"非场景 vs 非场景"显著更差(80%);MPP 略偏向场景与非场景的区分(85% 对 79%);两区识别单个场景远好于单个非场景(LPP 44% 对 16%;MPP 16% 对 4%)。HMAX C1 模型控制表明这不是低层相似度差异。更进一步,场景选择性单元对含"长直轮廓"的非场景(如纵向排列的轮胎纹)响应很强、对短弯轮廓刺激(如鹅卵石拼图)响应弱,人工排序的轮廓数量与群体平均响应相关(LPP r=0.82,MPP r=0.82);但用"七张最直的非场景"作对照(SSItop)分析发现,MPP 的场景选择性被明显削弱(27% 降到 14%),LPP 几乎不动(46% 对 42%)——直长轮廓是重要驱动因素,尤其对 MPP,但不足以解释全部选择性。
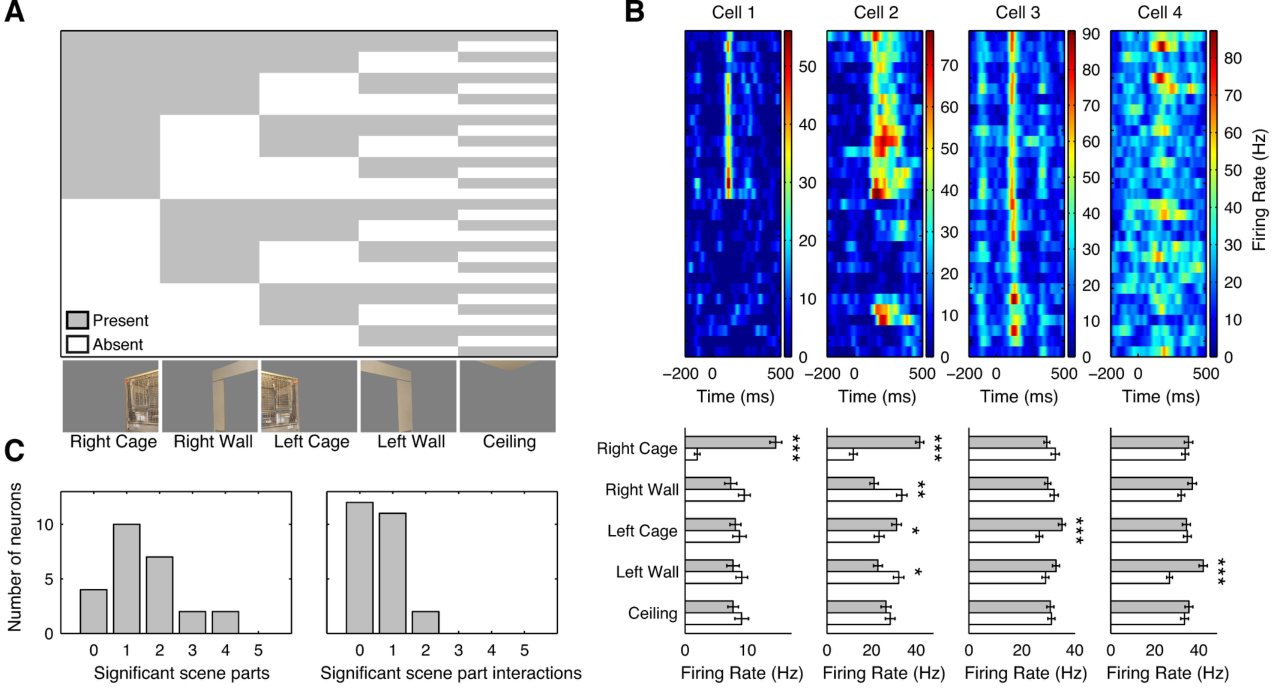
(5) 空间与非空间信息复用,单个细胞编码场景部件(图 7、图 8)。用合成房间刺激(5 视点 × 3 深度 × 3 纹理或 3 物体,立体呈现)做四因素方差分析:两区没有任何细胞单独被视点或深度调制;纹理是两区中主效应比例最高的因素(LPP 92%、MPP 80%),物体与视点/深度的调制在 LPP 显著更强(物体主效应或其交互:LPP 23/38 对 MPP 6/30,p=1×10⁻⁴)。对 26 种布局的照片与对应线画(只保留空间边界),LPP 细胞的响应显著相关(p<10⁻⁹),分类器可跨"照片训练→线画测试"以 16%–17% 精度迁移(机会 3.6%),说明存在部分内容不变的布局信息,但远非完全不变。最后,把 11 个场景分解为 3–5 个部件、呈现全部 2ᴺ−1 种组合:以"双笼子"场景为例,84% 被调制的细胞中超过一半对多个部件有主效应,62% 还对部件两两交互有调谐(主效应解释 79% 的刺激相关方差);68% 的细胞响应对侧笼子,44% 被两个笼子的交互调制,且对侧与同侧部件的调谐群体大量重叠——单个 LPP 细胞编码的是特定场景部件及其组合,信息整合跨越垂直中线。
图注解读
图 1 · 定位 LPP:猕猴与人类的场景激活对照
原文图注:Figure 1: A, Examples of stimuli shown. B, Coronal, sagittal, and horizontal slices indicating regions that exhibited a significantly greater response to scenes as compared to objects and textures in three monkeys. Fuchsia arrows indicate the location of the lateral place patch. Inset text indicates the AP coordinates of the coronal slice. C, Same as A, in a human subject. Fuchsia arrows indicate the location of the parahippocampal place area. D, Time course of the response to the localizer, averaged across the occipitotemporal place area of all monkeys in both hemispheres, and in the parahippocampal place area of a human subject. Regions of interest were defined on a separate set of runs from those from which the time courses were derived. Because blocks were shown in the same order on every run, with intervening blocks of scrambles to allow the hemodynamic signal to return to baseline, adaptation-related effects may confound comparison of the relative signal intensity among scene blocks. See also Figure S1.
A 先展示刺激样例(室内场景、物体、纹理、打乱刺激),B 用冠状、矢状与水平三个切面给出三只猴中"场景 > 物体/纹理"对比显著激活的脑区,紫红色箭头标出 LPP 在枕颞沟中的位置,切面角标注前后坐标。C 用人类被试做同样的对比并标出 PPA,D 把猕猴 OTS 区与人类 PPA 对定位器的时间响应曲线并排画出,使读者能直观比较两物种响应的形态。图注末尾的提醒值得注意:各运行块序固定,块间以打乱刺激间隔让血氧信号回基线,但场景块之间的适应效应仍可能混淆不同场景块信号强度的比较。这张图支撑结果 (1) 与"猕猴存在对应人类 PPA 的候选区"这一基本主张。
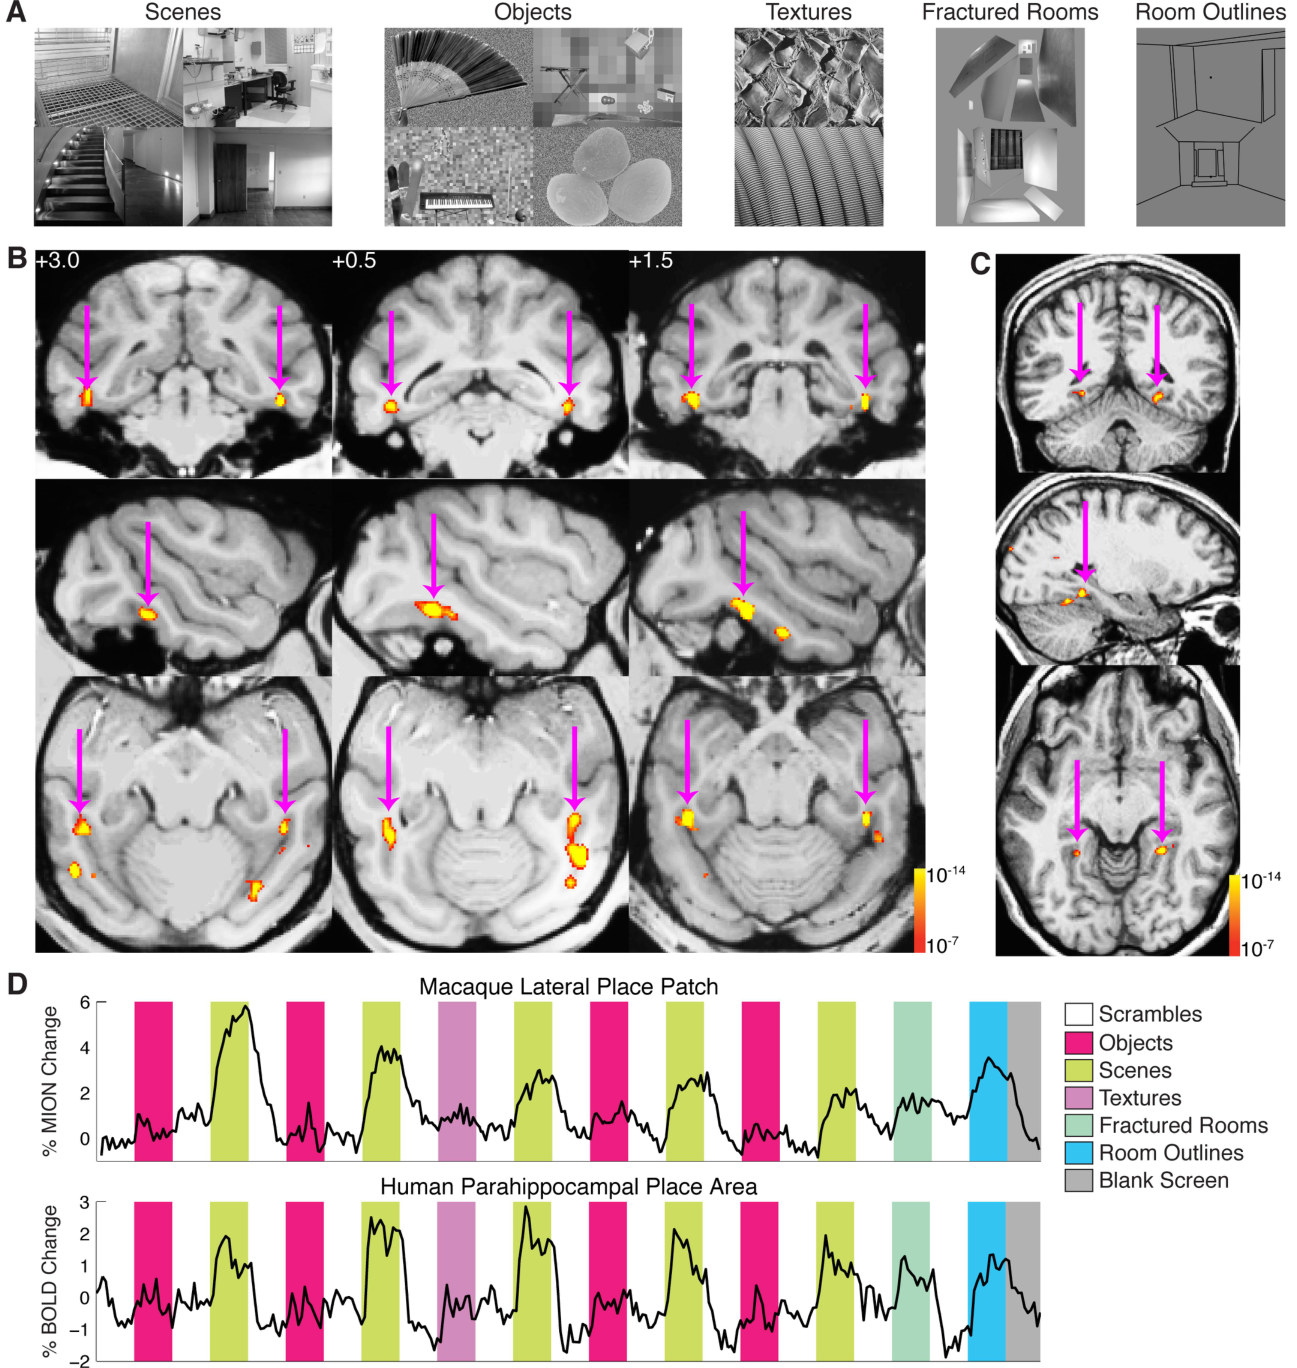
图 2 · LPP 单细胞响应档案
原文图注:Figure 2: A, Response histograms for four example LPP single units. Cells 1 and 2 were recorded from M1; cells 3 and 4 were recorded from M2. B, Response profiles of visually responsive cells in LPP in M1 (left) and M2 (right), sorted by scene selectivity index. Each row represents one cell and each column one image. c, Histogram of scene selectivity indices for individual cells in M1 and M2. In both monkeys, the distribution was skewed toward positive values, indicating greater scene selectivity than would be expected by chance. D, Mean normalized response to each stimulus, averaged across all visually responsive cells. Scene stimuli evoked stronger activity than non-scene stimuli. Error bars are SEM. See also Figure S2.
A 给出四个示例细胞的刺激后直方图,读者可以先感受单个 LPP 细胞"什么都响应、但场景响应更强"的典型形态。B 是关键面板:每行一个细胞、每列一张图片,按 SSI 从高到低排序,两个猴的数据各占一半,肉眼即可见上半部分(高 SSI 细胞)在场景列上的条纹更亮。C 是全部细胞的 SSI 直方图,分布右偏(正偏好场景),中位数 0.304;D 把所有视觉响应细胞对每张图的归一化响应取平均,场景刺激那条明显高于非场景。这张图支撑结果 (2):LPP 的高浓度场景选择性不是平均值假象,而是大量个体细胞都具有的真实偏好。
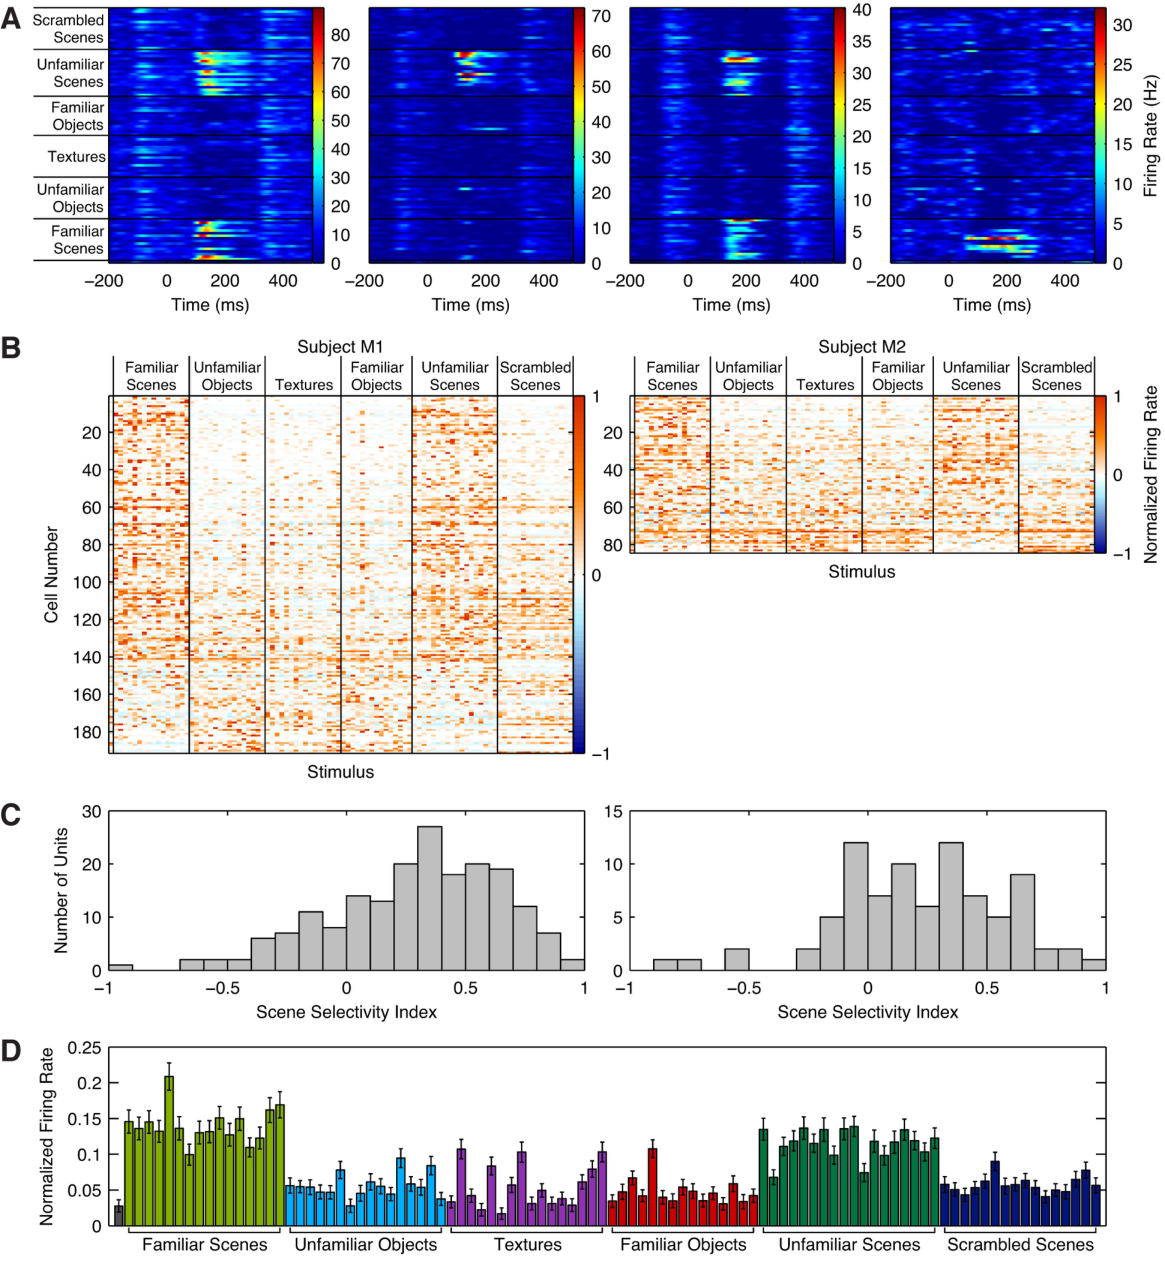
图 3 · 微刺激 LPP 照亮网络
原文图注:Figure 3: Areas showing significantly greater activation during microstimulation in the occipitotemporal place area as compared to baseline in subjects M1 (A) and M2 (B). Time courses for activated regions of interest are shown below the slice mosaic for each monkey. Shaded bars indicate time points during which microstimulation was active. Regions of interest were defined on one third of the data, while time courses were calculated from the remaining two thirds. See also Figure S3.
这张图把"电"变成"光":在 LPP 内送入 300 μA 的脉冲串,同时做 fMRI,比较刺激块与基线块的 BOLD 激活。A、B 分别是两只猴的切面拼图,激活区包括整条枕颞沟、海马旁回内侧的 MPP、V4V、推测的 DP 等;下方的 ROI 时间曲线中阴影条标出微刺激开启的时段,可以看到 MPP 等远隔区域的信号随刺激开关起伏。方法上值得一提:ROI 用三分之一数据定义、时间曲线用其余三分之二计算,避免循环分析。这张图是结果 (3) 的连接证据核心——MPP 之所以被发现,正是因为它被从 LPP "点亮"。
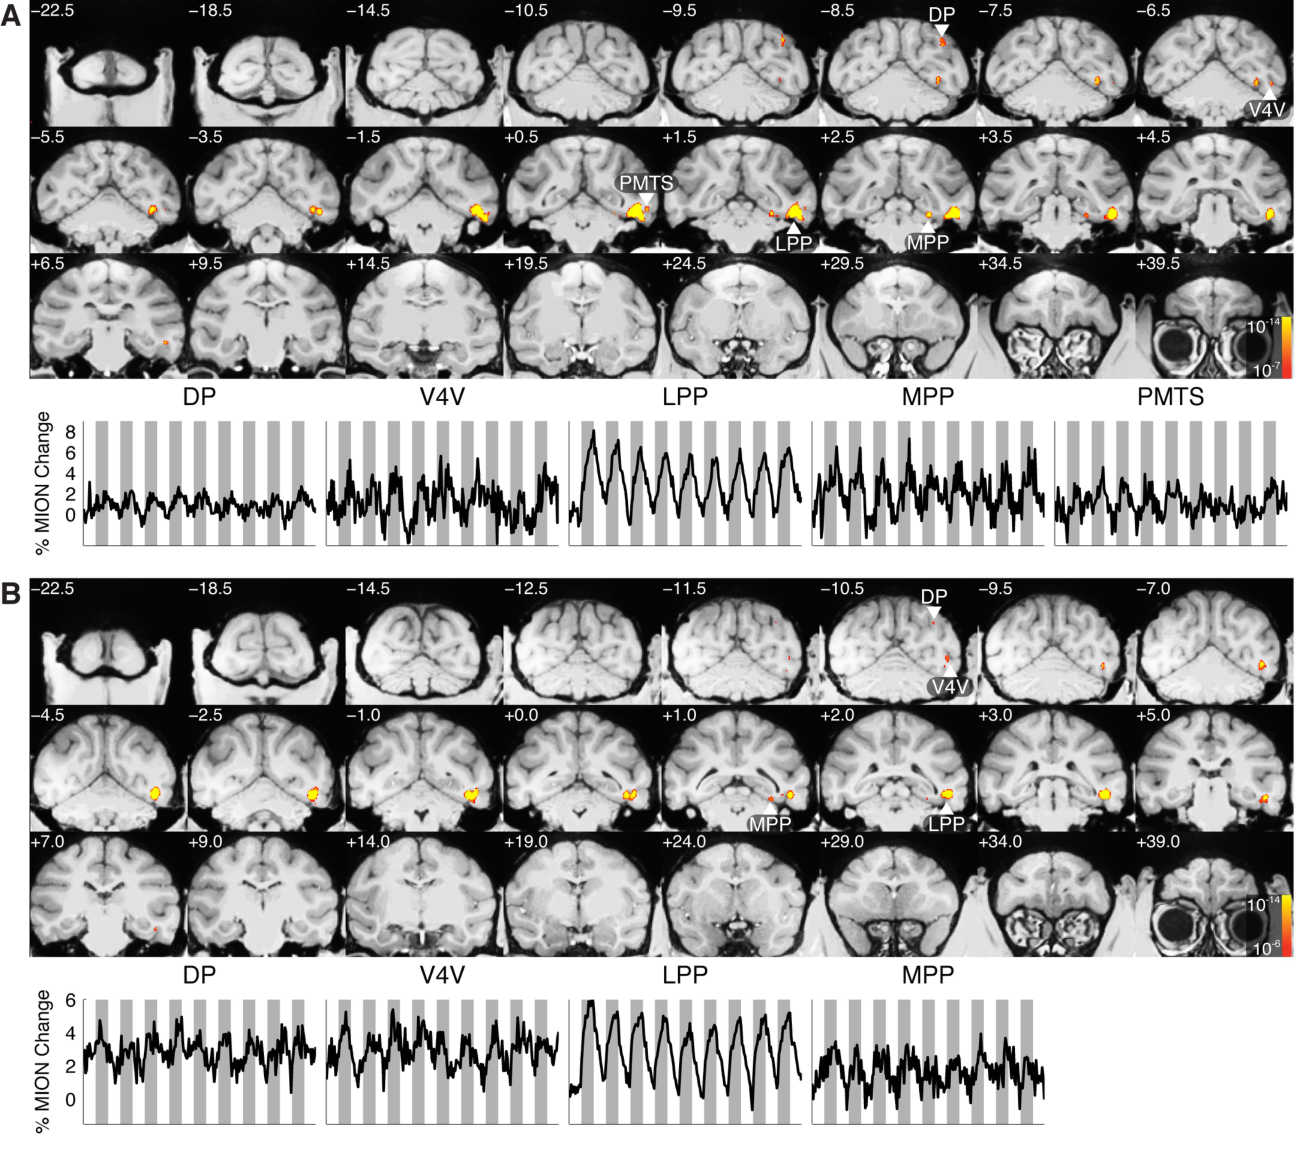
图 4 · MPP 与对照区的单细胞检验
原文图注:Figure 4: Single unit responses to scenes and non-scenes in MPP (left) and a control region posterior to LPP (right). A, Response profiles of recorded cells. Each row represents one cell and each column one image. B, Mean normalized response to each stimulus, averaged across all visually responsive cells. Scene stimuli evoked stronger activity than non-scene stimuli in MPP, but not the control region posterior to LPP. Error bars are SEM. C, Histogram of scene selectivity indices.
与图 2 同构,但左边换成 MPP、右边换成 LPP 后方 3 mm 的对照区。读法上重点比较三处:MPP 的细胞-图像矩阵中场景列整体更亮,但对照区矩阵里场景与非场景几乎无差别;B 面板的平均响应曲线只在 MPP 分开;C 的 SSI 直方图里 MPP 右偏而对照区中位数接近零(−0.01,仅 1/41 达标)。这张图完成两件事:证明微刺激找到的 MPP 确实由场景选择性单元构成(结果 3),并证明场景选择性并非 ITC 的普遍属性而是斑块化分布的(结果 2 的反面控制)。
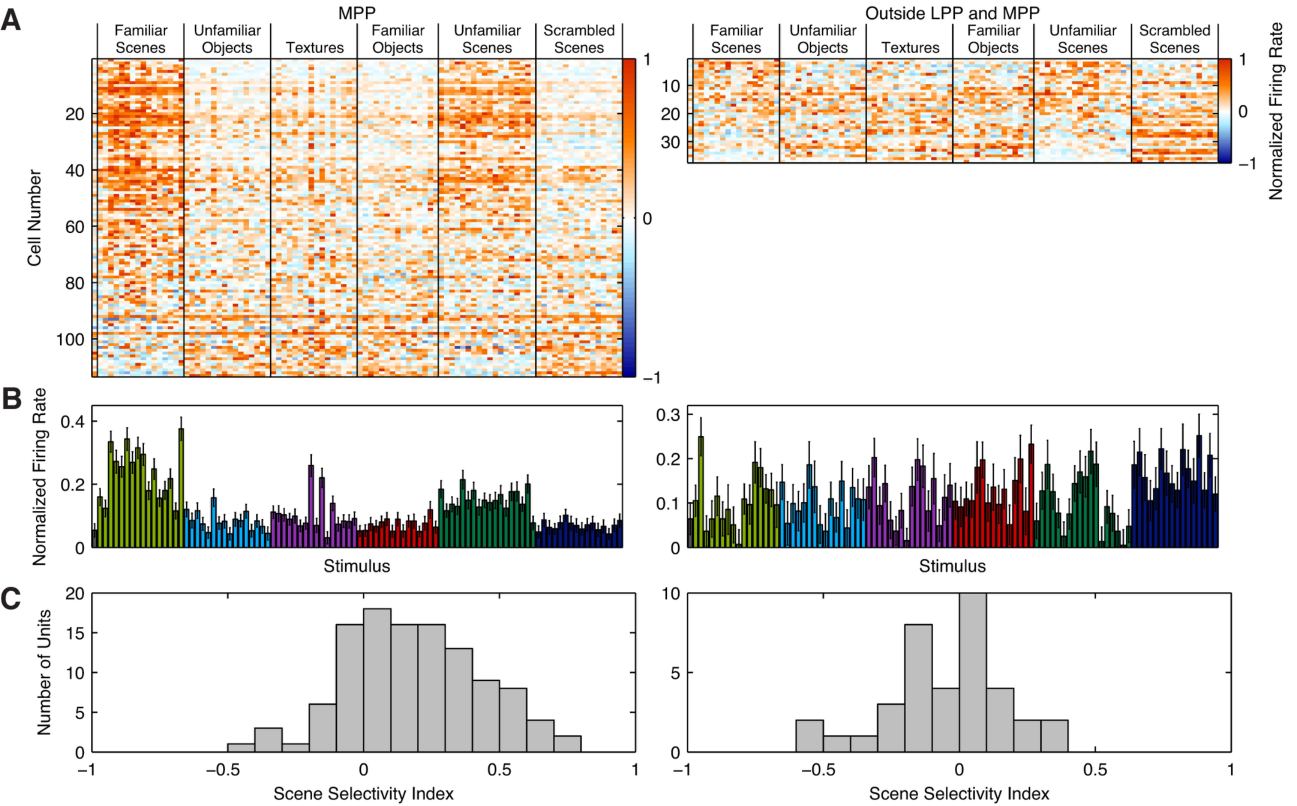
图 5 · 群体解码:区域读出偏向场景
原文图注:Figure 5: Performance of naïve Bayes classifiers in discriminating pairs of stimuli and identifying individual stimuli based on responses of 25 visually responsive single units in LPP (left), MPP (middle), and a control region posterior to LPP (right). A, Performance of classifier in distinguishing between pairs of stimuli. B, Average pairwise discrimination performance in each region for scenes versus scenes, non-scenes versus non-scenes, and scenes versus non-scenes. Chance performance is 50%. Error bars are SEM. C, Classifier accuracy in identifying individual stimuli from the full set of 98. Chance performance is 1%. Error bars are SEM.
A 面板是三个区域中两两刺激判别的混淆矩阵样式图,B 提炼成三种比较的柱状:场景对场景、非场景对非场景、场景对非场景,机会水平 50%。核心读法是 LPP/MPP 两根柱内部"场景 vs 场景"不输于"场景 vs 非场景",而"非场景 vs 非场景"显著塌陷——对照区则相反(判非场景最好),说明这种偏向是斑块特异的,不是低层图像差异造成的(HMAX 距离控制已排除)。C 面板是"从 98 张图中认出是哪一张"的识别精度,机会 1%,LPP 达 44%(场景)对 16%(非场景)。这张图支撑结果 (4) 的前半段:这些区域的神经元群体携带的信息量对场景成员是超额的。
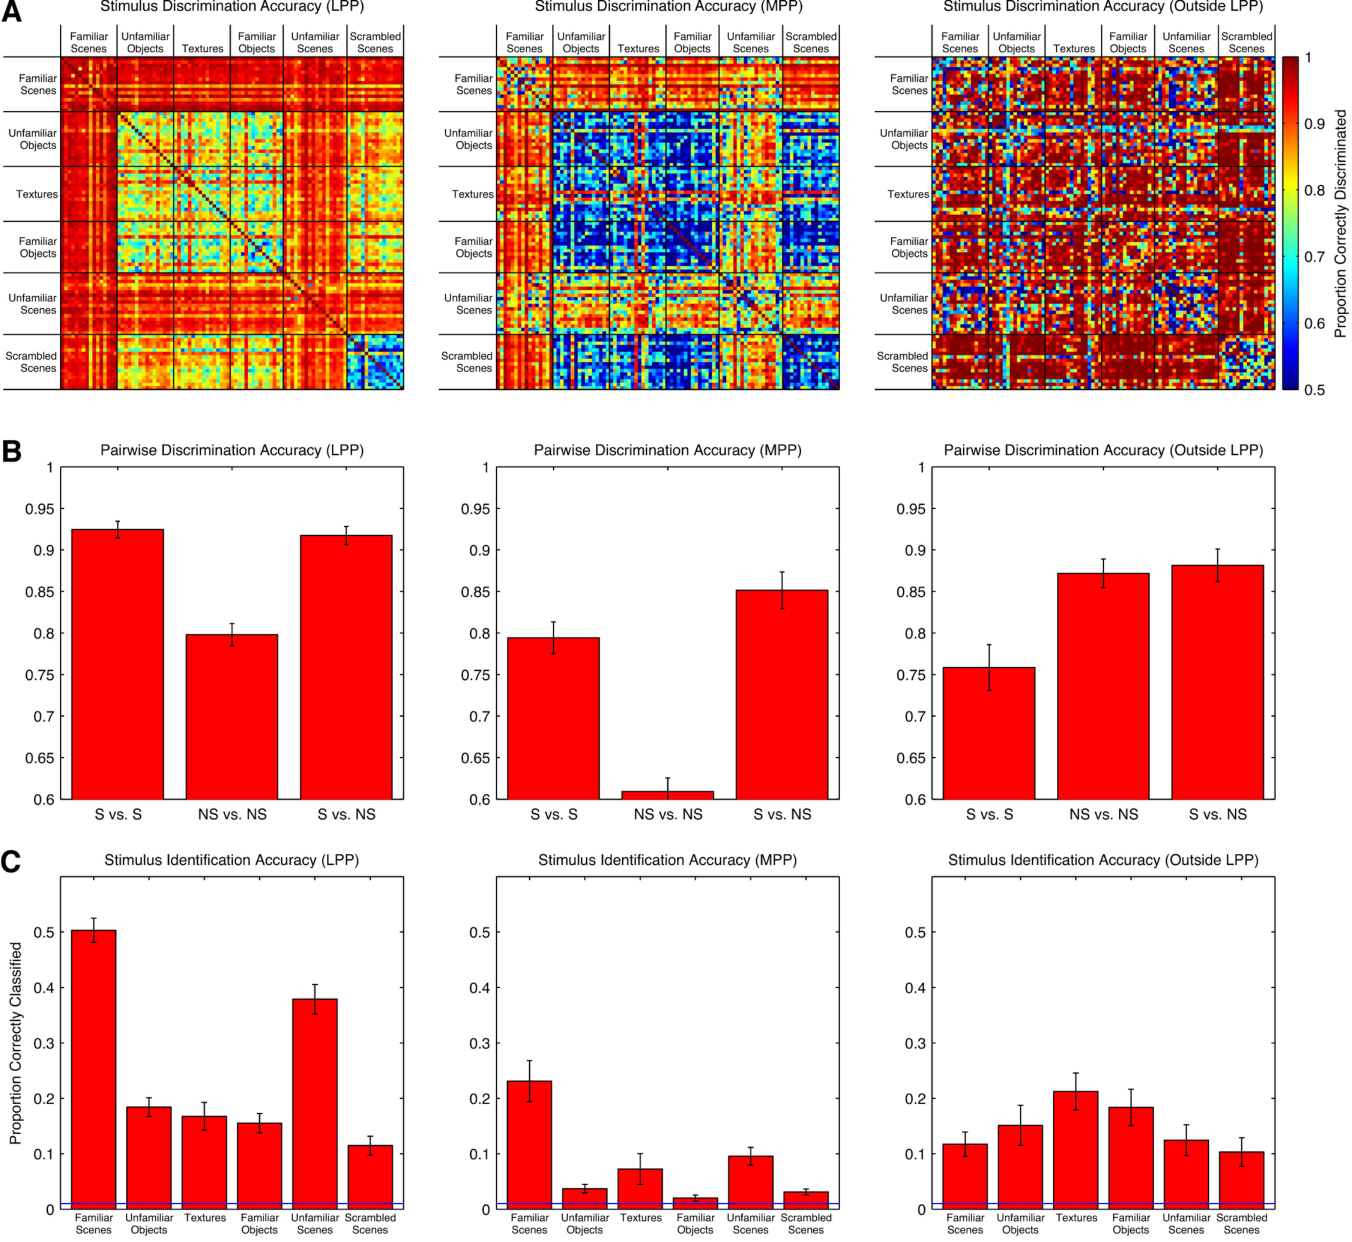
图 6 · 直长轮廓:被"非场景"激活的偏好特征
原文图注:Figure 6: A and B, Mean normalized firing rate of visually responsive cells with scene selectivity index > ⅓ to each stimulus in the electrophysiology localizer in LPP (A) and MPP (B). Significant variance is visible in the magnitude of the mean response for non-scene stimuli. The four non-scene stimuli eliciting the strongest responses are shown above the graph; the four non-scene stimuli eliciting the weakest responses are shown below. C and D, Average LFP (top) and analytic amplitude in 63-100 Hz frequency band (bottom) to all scenes, top 4 non-scenes (shown to the left), and all non-scenes, averaged across 86 channels recorded from LPP (C) and 184 channels recorded from MPP (D). Error bars are 95% confidence intervals. Black strips at the top of each graph indicate significant differences between scenes and non-scenes; cyan strips indicate significant differences between the top and bottom four non-scenes (α = 0.001, t-test).
A、B 把 SSI > 1/3 的细胞对每张局部izer 刺激的平均归一化响应排成条形,刺激顺序按响应强弱排列,并在图上方/下方直接贴出响应最强与最弱的四张非场景图片——最强的一排几乎都是含长直轮廓的图像(轮胎纹、直条栅栏一类),最弱的一排是鹅卵石、弯曲纹理。C、D 用局部场电位(local field potential, LFP)与 63–100 Hz 解析幅度做独立验证:对场景及"高直轮廓"非场景,刺激后约 100 ms 出现特征性的响应谷,而在其他非场景中减弱或缺席。黑色/青色横条分别标注场景与非场景、最强与最弱非场景之间的显著差异。这张图支撑结果 (4) 的后半段:直长轮廓是驱动这两个斑块的显性特征。
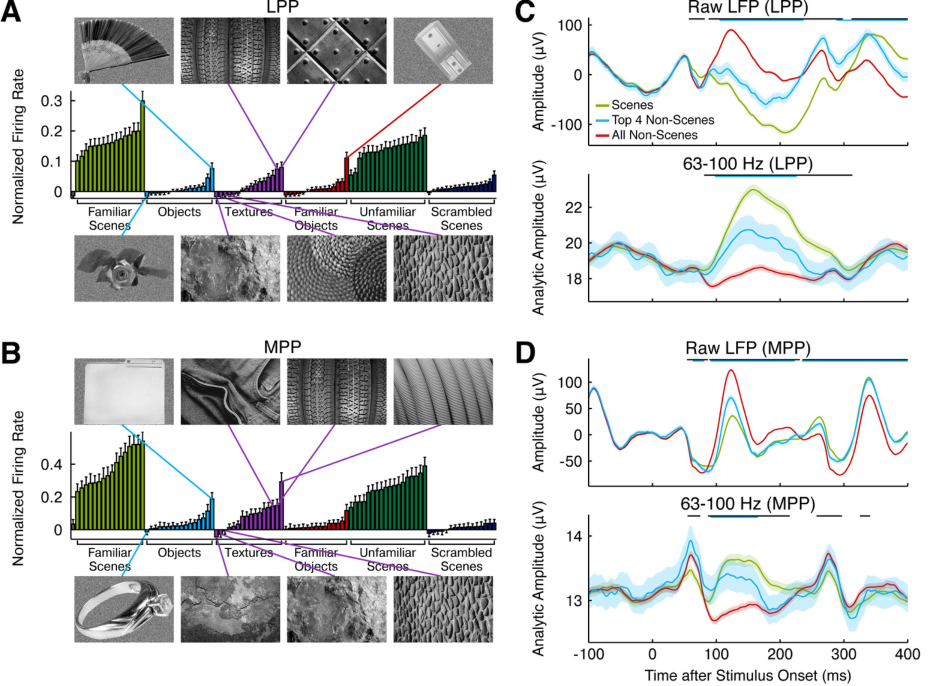
图 7 · 布局与内容:线画迁移与参数化房间
原文图注:Figure 7: A, Examples of scene photographs (top) and corresponding line drawings (bottom) used. B, Histogram of the average correlation between photographs of scenes and line drawings of the same scenes. C, Two cells showing selectivity for images of top and bottom room corners (one cell/row). The top group of rasters show these cells responding to indoor scene images. The bottom group show the same two cells as in responding to top and bottom corners of a synthetic stimulus consisting of a 3D-rendered sequence panning from top to bottom to top of an empty room. D, Left: parameterized synthetic room stimuli. LF = front left; RF = front right; F = front; LC = left corner; RC = right corner; R = empty rooms; O = object; T = texture. Right: Three example cells from M1 demonstrating an interaction between response for texture and spatial viewpoint in parameterized synthetic room stimuli. Object and texture are shown on the x-axis, while viewpoint and depth are shown on the y-axis. E and F, Left: Response of scene-selective cells from M1 to the parameterized room stimuli from b in LPP (e) and MPP (f), sorted by the first principal component. Right: responses of the same cells to the place localizer stimuli. See also Figure S6.
这张图承担两章内容。A、B 是照片-线画迁移实验:A 展示 26 种布局的照片与只保留边界线的对应线画,B 画出同一细胞对两种版本的响应相关直方图——显著高于打乱布局标签的对照(p<10⁻⁹),证明 LPP 携带部分内容不变的布局信息。C 是两个互补调谐的示例细胞:一个偏爱房间顶角、一个偏爱底角,在真实场景图片与 3D 渲染房间俯仰平移序列上保持一致的偏好。D、E、F 是合成房间主实验:D 的参数化刺激矩阵(视点 × 深度 × 纹理或物体),右侧示例细胞显示纹理与视点的交互;E、F 把 LPP 与 MPP 的场景选择性细胞按第一主成分排序的热图,右列为同一批细胞对局部izer 的响应以供对照。这张图支撑结果 (5) 的"空间与非空间复用"结论。
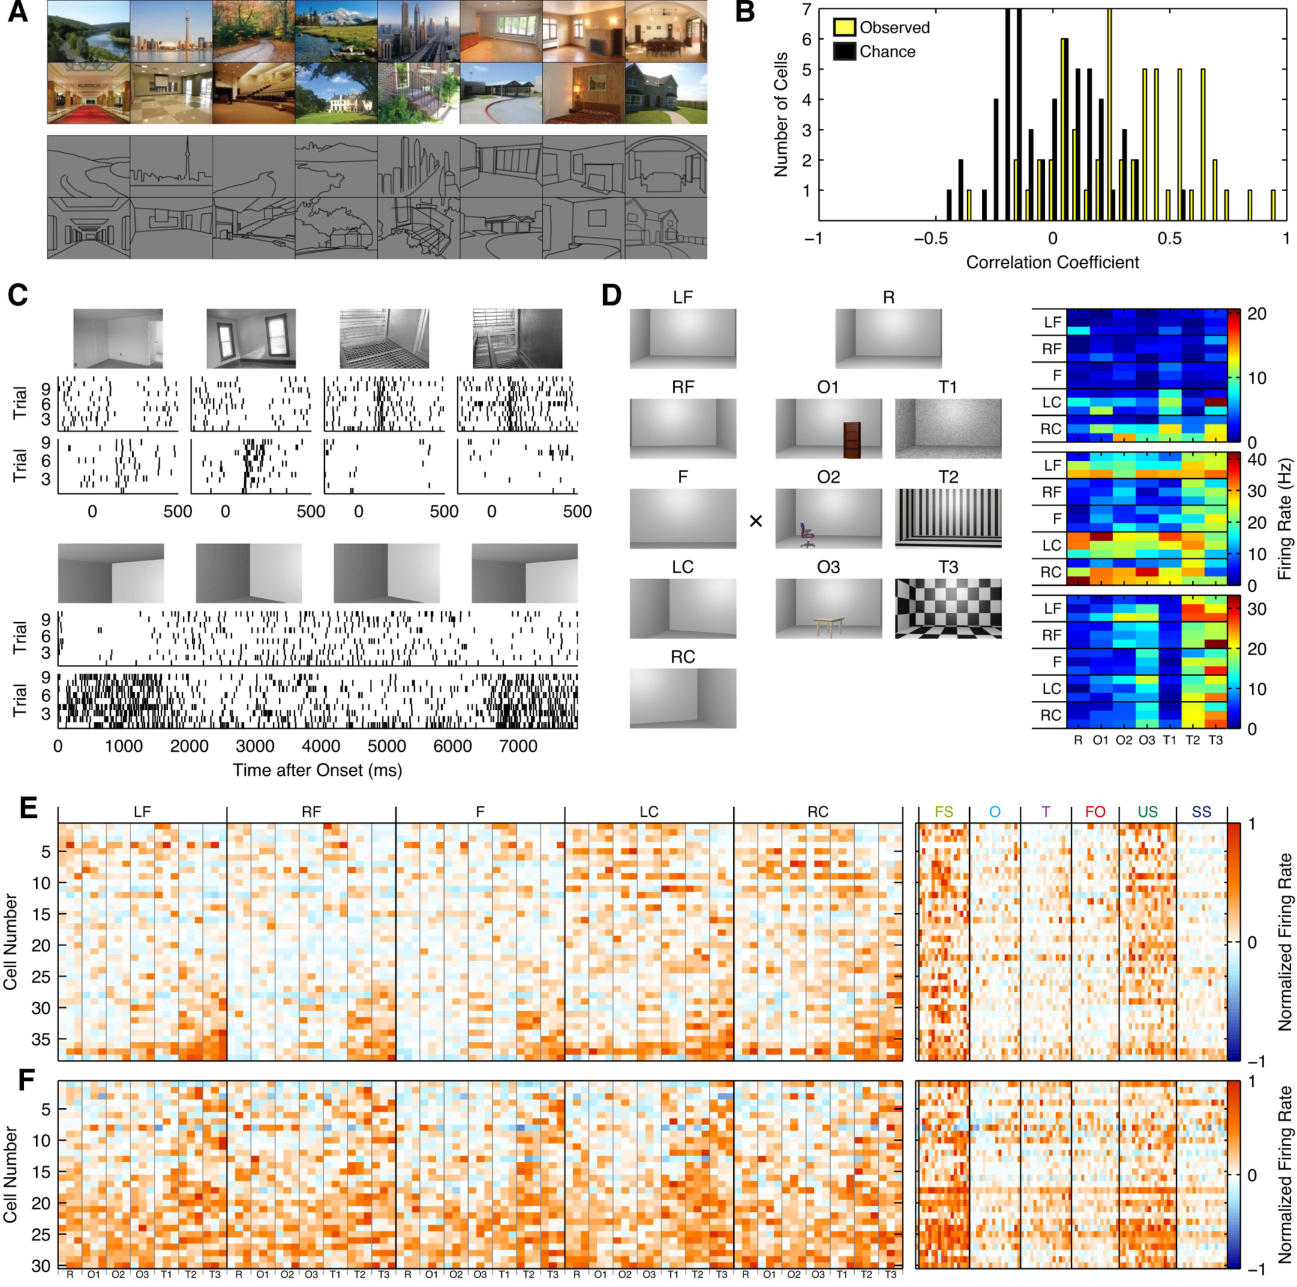
图 8 · 场景部件分解:细胞对部件组合的调谐
原文图注:Figure 8: A, Stimulus conditions. An image of two sets of cages was separated into the right (contralateral) cage, right wall, left (ipsilateral) cage, left wall, and ceiling. All 31 combinations of five scene parts were shown. B, Top, average responses of four example cells to each combination of scene parts. Bottom, average responses in the presence (green bars) or absence (white bars) of a given scene parts. * = p < 0.05, ** = p < 0.01, *** = p < 0.001. Cell 1 responded only to the right cage. Cell 2 responded strongly to the right cage and weakly to the left cage when presented alone. Its response was inhibited by the presence of the left and right walls. Cell 3 responded to all stimulus parts except for the ceiling, but fired more strongly when the left cage was present. Cell 4 responded to the left wall. C, Distributions of the number of scene parts (left) and the number of pairwise interactions (right) that exerted a significant influence on cell firing for the cage scene for 25 cells (p < 0.05, Holm-corrected).
A 面板展示分解逻辑:一张"两侧笼子"的照片被拆成对侧笼、对侧墙、同侧笼、同侧墙、天花板五个部件,再生成全部 31 种组合(缺省部件填中性灰底)。B 上排是四个示例细胞对每种组合的平均响应,下排把同样的响应按"某部件在场/缺席"折叠成绿白两色柱——读者可以从细胞 1(只认对侧笼)、细胞 2(对侧笼驱动但被墙抑制)、细胞 3(对除天花板外都有响应)看出调谐的多样性与非线性。C 用直方图总结 25 个细胞中显著主效应部件数与显著两两交互数的分布。这张图支撑结果 (5) 的部件编码结论:单个 LPP 细胞编码特定场景部件及其组合,与面孔斑块"特征空间"式群体编码形成呼应。
讨论
作者的立场相当克制而清晰:LPP 和 MPP 的细胞很可能像其他 IT 神经元一样调谐于一组复杂形状与视觉特征,两者与其他 IT 区的区别不在表征方式,而在组织形式——它们是"对场景中出现的形状与特征有选择性的神经元"在宏观尺度上的聚簇。直长轮廓(具体构型)被点名为可能的关键特征,作者同时承认并不知道这些特征的最终复杂度:SSItop 分析与线画实验都表明选择性超出简单直线,但上限未知。这一立场与人类 PPA 的"空间布局假说"(Epstein & Kanwisher, 1998)形成对话——照片与线画的相关支持该假说,但合成房间实验表明它是"不完整的解释";他们也明确否定了"PPA 偏好高频空间频率"的解释(Rajimehr 等 2011),并指出两种方法学的差异使得这不算决定性的分裂。
局限方面作者交代得坦率:因为没有系统变化房间几何,无法排除部分视角不变性;LPP 与 MPP 的层级关系不明——MPP 场景选择性更低、对低层特征更敏感(暗示更靠下流),但位置更靠内侧、物体敏感性更低(又暗示更靠上流);LPP/MPP 与人类 PPA 的同源性未被证明(猕猴解剖分区标签本身就有 TFO/TEO/TEpv/V4V 之争,Nasr 等 2011 提出的颞中沟后部激活也是候选同源区);整个网络被推测终止于海马(猕猴海马神经元以非中心式、刺激不变的方式表征空间),LPP/MPP 为其提供输入这一点只是预期而非验证。最后作者把 LPP/MPP 类比于猕猴中层面孔斑块:可能包含视角与身份的群体表征,本身可支持简单熟悉环境中的寻路,也可能在下游生成更完整的非中心式表征。
一句话总结
该研究展示了多模态神经生理技术在高级视觉通路解析中的互补价值:单靠被动观看态下的 fMRI 容易遗漏 MPP 等深部或弱激活区域,而微刺激结合单细胞记录能够有效揭示隐匿的功能连接。单细胞记录揭示的空间与非空间特征复用机制,表明场景选择区并非单纯的空间几何布局检测器,而是由调谐于复杂构型与环境部件的神经元聚集而成。LPP 与 MPP 作为人类 PPA 的同源候选区,为跨物种场景加工研究奠定了生理学基础。