两只猕猴经过数月至一年的反复暴露熟悉了 125 张物体图像,研究者随后在下颞叶皮层(inferior temporal cortex, ITC)记录单个神经元反应,并根据细胞外记录的动作电位波形将神经元区分为宽锋与窄锋两类。结果显示:长期视觉经验使推定兴奋性神经元对最优熟悉刺激的放电率提升约 50%,但使推定抑制性神经元的放电反应大幅下降。这一按细胞类型细分的分析处理调和了既往文献中关于“经验增强反应”与“经验减弱反应”的长期分歧,为理解成年灵长类高级视觉皮层的可塑性机制提供了直接电生理证据。
研究背景
早期视觉皮层的感受野特征在发育关键期后趋于稳定,而腹侧视觉通路终末端的下颞叶皮层(ITC)终身维持显著的可塑性。作为物体识别的核心神经中枢,ITC 神经元的调谐特性可随外界统计规律及行为任务需求发生动态调整。然而,关于长期视觉经验究竟如何塑造 ITC 单个神经元的放电特性,此前文献存在明显矛盾。早期研究(Logothetis 等 1995;Kobatake 等 1998;Miyashita 与 Sakai 等工作)报告,经过系统训练或暴露后,神经元对部分习得刺激会产生强烈放电,最大反应显著高于未训练的新异刺激;而后期的若干研究(Baker 等 2002;Freedman 等 2006;Op de Beeck 等 2007;Anderson 等 2008)却发现,熟悉刺激诱发的最大放电率并未增加甚至有所降低,全刺激平均放电呈下降趋势,调制幅度仅为每秒数个动作电位,由此引发了“ITC 经验可塑性较为微弱”的观点。由于行为层面表现出强烈的经验依赖性识别优势,这种神经生理数据与行为表现之间存在明显脱节。
作者分析指出,既往研究的分歧主要源于两方面的方法学局限。其一,刺激采样偏倚:单个 ITC 神经元的特征调谐高度特异,若测试刺激集规模过小或特征维度不足,极难覆盖特定神经元的最优熟悉刺激,从而造成反应未发生改变的假象。其二,细胞类型混杂:皮层内包含多种不同功能的神经元,细胞外记录中窄波形细胞主要对应快放电抑制性中间神经元,宽波形细胞主要对应兴奋性锥体细胞;以往研究普遍将所有记录单位混合平均,可能导致方向相反的神经调节效应在群体统计中相互抵消。此前未有研究系统检验过长期视觉经验对这两类神经元反应的差异化影响。
研究思路
为解决上述局限,研究者采取了针对性的实验设计。在刺激端扩充样本容量:实验使猕猴对 125 张真实彩色物体图像建立充分熟悉,测试时配以同等规模(125 张)来自同一图像库且经特征过滤的新异刺激,以确保有足够概率覆盖每个神经元的最优熟悉刺激与最优新异刺激。在细胞端,依据动作电位波谷至波峰时程(trough-to-peak)对神经元进行聚类分组,分别考察两类神经元的反应变化。在时序维度上,将刺激诱发的视觉反应拆分为早期窗口(75–200 ms)与晚期窗口(200–325 ms)独立分析,以评估增强与抑制效应的动态演进。实验采用被动注视范式,排除了任务执行动机的干扰,直接比较熟悉性、细胞类型与时间窗三个维度的交互作用。
方法
实验对象为两只成年雄性恒河猴(猴 I 与猴 D)。熟悉化训练持续 3 个月(猴 I)至 12 个月(猴 D),图像在被动注视任务与延迟匹配任务中反复呈现,每张熟悉图像累计获得约 1,000 至 3,000 次暴露。电生理记录在被动注视任务中完成:屏幕中央连续呈现 10 个刺激,每个呈现 200 ms、间隔 50 ms,眼动轨迹限制在 1° 窗口内。每个记录日随机选取 125 张新异图像,利用尺度不变特征变换(SIFT)和颜色直方图算法剔除与熟悉集或彼此间相似度过高的刺激。记录位点位于 ITC 侧凸面(上颞沟下岸腹侧、嗅周皮层外侧),使用钨丝微电极共记录到 88 个隔离良好的视觉反应单单元(猴 D 50 个、猴 I 38 个);为避免采样偏倚,大部分单元在线分离时使用的是一套独立的中性搜索刺激。
离线分析中,动作电位波谷至波峰的时程呈现显著的双峰分布,采用 k-means 聚类将其明确划分为宽锋(推定兴奋性)与窄锋(推定抑制性)两组。核心评估指标包含:最大反应(125 个刺激中的最高平均放电率)、平均反应(全部刺激的平均放电率)、稀疏度指数(sparseness,度量总放电集中在少数刺激上的偏置程度,取值 0 至 1)以及成对 AUC(计算刺激集中所有图像两两配对的 ROC 曲线下面积,度量单细胞动作电位数区分任意两个刺激的平均辨别力)。组间比较采用配对 t 检验、Mann-Whitney U 检验或置换检验,滑动窗时序分析使用多重比较校正的置换检验。
主要结果
-
最大反应在两类细胞中呈现相反方向的经验调制(图 3)。 推定兴奋性神经元对最优熟悉刺激的群体平均放电率比最优新异刺激高 16.55±2.22 Hz(p < 0.001),增幅达 45.8%(52.69 对 36.14 Hz),该差异在视觉反应初期即已确立(滑动窗最早显著时间点为 120 ms);而在晚期窗口该优势缩减为 4.40±2.41 Hz(p = 0.07)。相反,推定抑制性神经元对最优新异刺激的反应显著更强,早窗差异达 27.63±7.97 Hz(p = 0.004),晚窗差异扩大至 53.65±12.11 Hz(p < 0.001),且在两只猕猴中均表现一致。
-
刺激诱发的平均反应在两类细胞中均下降,但抑制性细胞降幅显著更大(图 4)。 推定抑制性神经元的自发活动(15.01 对 5.20 Hz)与刺激驱动放电(如新异刺激晚窗 44.00 对 7.79 Hz)显著高于兴奋性神经元。视觉经验导致平均放电率下降:在晚期窗口,兴奋性细胞平均放电下降 1.90±0.67 Hz(p = 0.006),而抑制性细胞平均放电下降 21.04±4.01 Hz(p < 0.001),两类神经元的抑制幅度差异具有统计学显著性。
-
长期经验提高了表征选择性(图 5、图 6)。 稀疏度度量显示,兴奋性细胞对熟悉刺激集的稀疏度在早窗与晚窗均显著升高(分别提升 +0.11 与 +0.08,p < 0.001);抑制性细胞仅在晚窗表现出轻微升高。图 6 的机制分析表明,在早期窗口,兴奋性细胞“最优熟悉刺激放电增量”能够高度预测其“稀疏度增量”(皮尔逊 r = 0.77,p < 0.001)。这表明熟悉性带来的高稀疏表征主要源于对偏好刺激放电幅度的显著放大,而非对多数非偏好刺激的普遍抑制。
-
神经元群体的辨别敏感性保持稳定(图 7)。 成对 AUC 分析表明,神经元对新异刺激集的辨别力与熟悉集持平甚至略高(仅兴奋性早窗出现边际差异:0.673 对 0.665,p = 0.046,单只猕猴内未达显著);抑制性神经元在两类刺激集上的辨别力均高于兴奋性细胞。此外,稀疏度与成对 AUC 呈强负相关(早窗 r = −0.51/−0.61,晚窗 r = −0.83/−0.78)。这表明单个神经元对更少数量的熟悉刺激保持高响应,属于表征调谐的精确化而非编码功能受损。
-
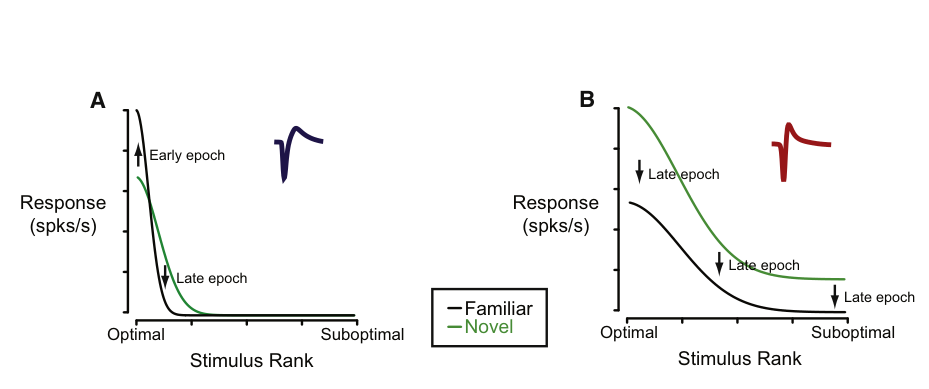
整体效应模式总结于图 8: 兴奋性神经元主要在早期窗口增强对偏好刺激的反应,晚期对中等偏好刺激产生轻微抑制;抑制性神经元则表现为广泛且显著的放电率下降,该效应在晚期时段尤为突出。
图注解读
图 1 · 实验范式与锋形聚类
原文图注:Figure 1. Experimental Paradigm and Spike Waveform Clustering (A) Passive fixation task during which ten stimuli were presented for 200 ms each with a 50 ms interstimulus interval. Familiar and novel stimuli were interleaved. (B) All recorded spike waveforms, aligned by their troughs and labeled according to their cluster membership. Waveform amplitudes have been normalized by their heights. a.u., arbitrary units. (C) Distribution of spike widths (trough-to-peak durations) and the two clusters that emerged from the k-means algorithm. The bars above the distributions show mean ± SD of the respective distributions.
该图展示了基础实验流程与神经元分类方法。图 A 为记录时采用的被动注视任务示意图:10 个刺激按每个 200 ms 呈现、50 ms 间隔串行输入,熟悉与新异刺激交替出现,被试只需维持中心注视。图 B 与 C 为神经元波形分类依据:图 B 将全部记录到的动作电位按波谷对齐并归一化幅值,按聚类结果分别标注;图 C 展示了动作电位时程(波谷至波峰)的双峰直方图,k-means 算法据此将神经元划分为宽锋与窄锋两簇,柱状上方标明各簇的均值与标准差。该图构成了后续区分推定兴奋性与抑制性亚群的方法学基础。
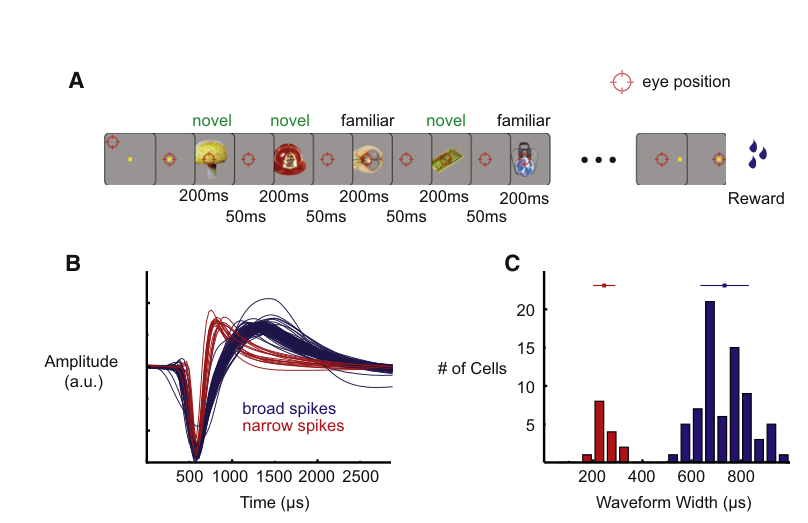
图 2 · 七个示例细胞的熟悉/新异响应
原文图注:Figure 2. Example Neuronal Responses to Familiar and Novel Stimuli (A–E) Five representative putative excitatory cells. (F and G) Two representative putative inhibitory cells. In all rows the column on the far left shows both the mean spike waveform of each cell and the cluster to which the waveform was assigned (blue, broad spike; red, narrow spike). In the middle-five columns are plotted the spike density functions (SDFs, spike times convolved with a Gaussian kernel with s = 20 ms) for the top five stimuli from the familiar set (black) and the top five stimuli from the novel set (green). These rankings were determined not on the basis of the peak value of the SDF but rather from the spike counts in the interval 75–200 ms after stimulus onset, which is shown as a light-gray bar abutting the time axis. The column on the far right shows each neuron's entire distribution of mean firing rates, sorted according to rank. Again, the mean firing rates were computed from the spike counts in the interval 75–200 ms after stimulus onset, and the rankings were done independently for the familiar and novel sets. The numbers in the top right of the rank plots show the magnitude of the sparseness metric that was used to quantify single-cell selectivity.
图 A–E 展示了 5 个代表性推定兴奋性神经元,图 F 与 G 展示了 2 个代表性推定抑制性神经元。最左列为平均动作电位波形及聚类标识(蓝色为宽波形,红色为窄波形);中间列对比了熟悉刺激集(黑线)与新异刺激集(绿线)中排名前五位刺激诱发的放电密度函数(基于 75–200 ms 动作电位数排序,灰底指示统计窗口);最右列展示了按放电强度降序排列的全刺激反应分布曲线,右上角标注对应稀疏度数值。兴奋性细胞对最优熟悉刺激的放电率明显高于新异刺激,且熟悉集的稀疏度更高;抑制性细胞则在新异刺激下表现出更高的最优反应与全刺激放电水平。该图直观展现了结果 1 与结果 3 的核心趋势。
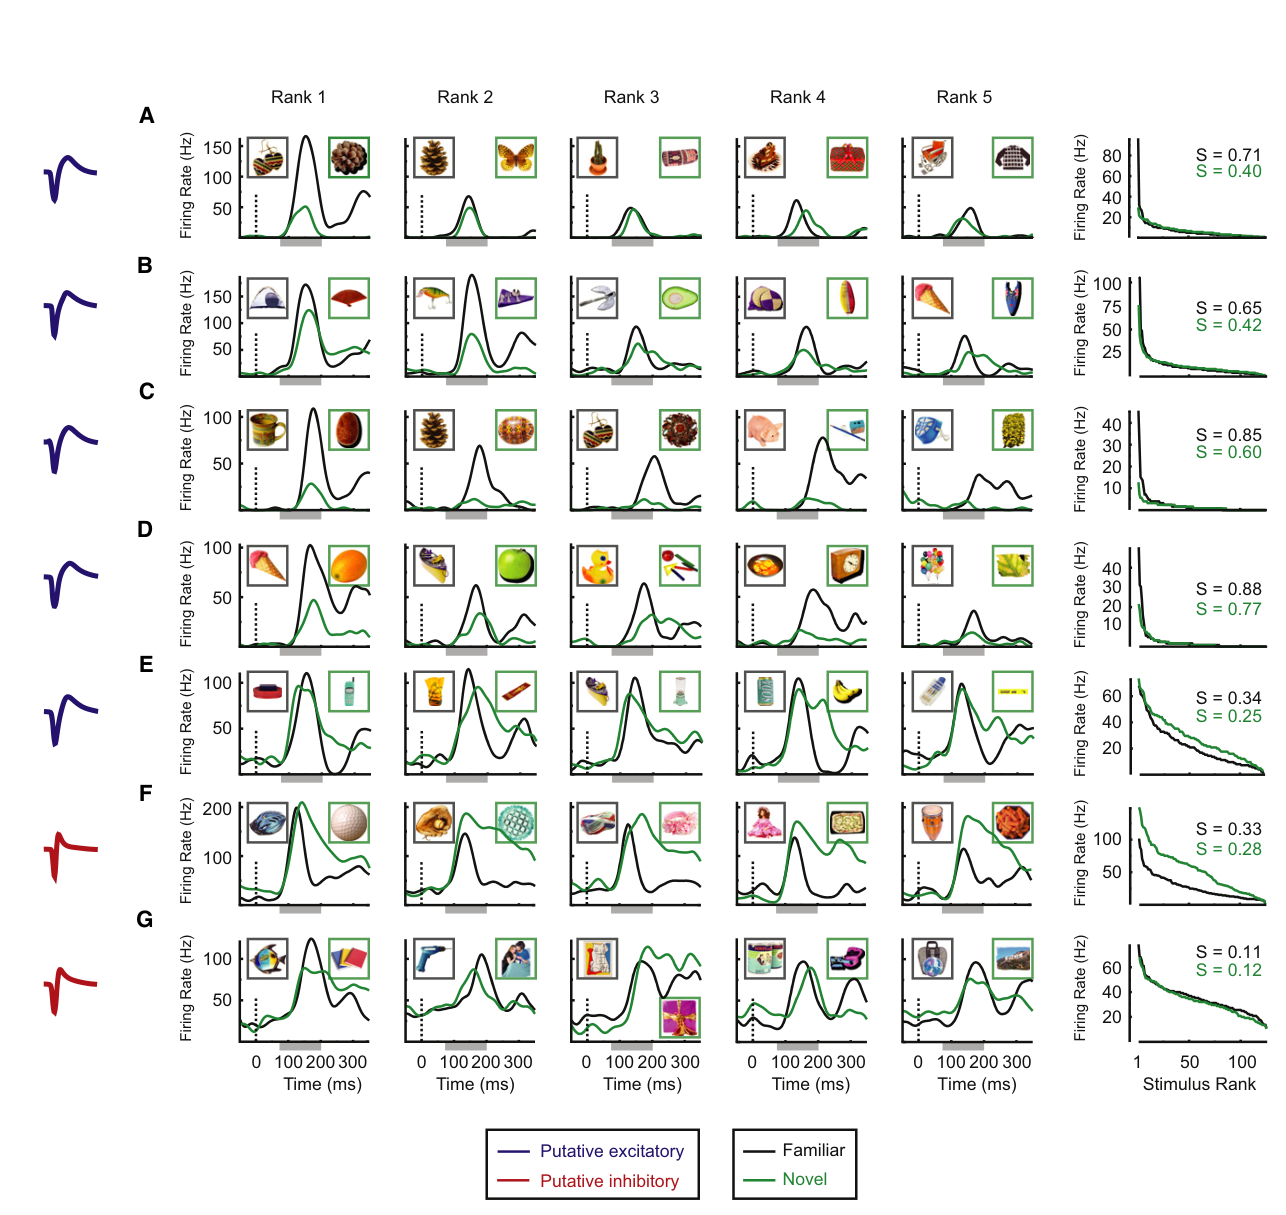
图 3 · 最大响应:兴奋性受益、抑制性受损
原文图注:Figure 3. Visual Experience Increases Maximum Responses of Putative Excitatory Cells but Decreases Maximum Responses of Putative Inhibitory Cells (A and B) Sliding window analyses (step size = 5 ms, window size = 50 ms) of maximum firing rates to familiar (black) and novel (green) stimulus sets, averaged separately for the putative excitatory (A) and putative inhibitory (B) cells. Shaded regions indicate ± SEM. Tick marks denote the time points at which the differences between the maximum familiar responses and maximum novel responses achieved statistical significance according to a permutation test (p < 0.05). (C) Distribution of individual cells' responses to the best familiar (x axis) and best novel (y axis) stimulus during the early epoch (75–200 ms). Each data point represents the activity of a single unit. Cells are color labeled according to cluster membership (blue, putative excitatory; red, putative inhibitory). Error bars represent mean ± SEM across individual repetitions of the best familiar or best novel stimulus. Histogram in the top right shows the distribution of differences for both subpopulations. Shaded bars show individually significant cases (p < 0.05, Mann-Whitney U test). Arrows denote mean maximum response differences across either the putative excitatory (blue) or inhibitory (red) cells. (D) A magnified view of the plot in (C), emphasizing the distribution of effects in the putative excitatory cells. (E and F) Same as in (C) and (D) but for the late epoch (200–325 ms).
图 A 与 B 为滑动窗(步长 5 ms,窗宽 50 ms)下最大放电率的群体平均变化曲线,坐标轴刻度指示置换检验(p < 0.05)达显著的时刻:兴奋性细胞在约 120 ms 处即表现出熟悉优势,抑制性细胞则在约 170 ms 后呈现新异优势。图 C 与 D 为早期时段(75–200 ms)单细胞水平最优熟悉反应(横轴)与最优新异反应(纵轴)的散点图,对角线下方代表熟悉占优:蓝色兴奋性细胞多数分布于对角线下方,红色抑制性细胞主要聚集于线上方,右上角直方图统计了差值分布。图 E 与 F 展示晚期时段(200–325 ms)数据,显示兴奋性细胞的熟悉增益趋于平缓,而抑制性细胞的新异偏好进一步扩大。图表完整支撑了结果 1 的统计推论。
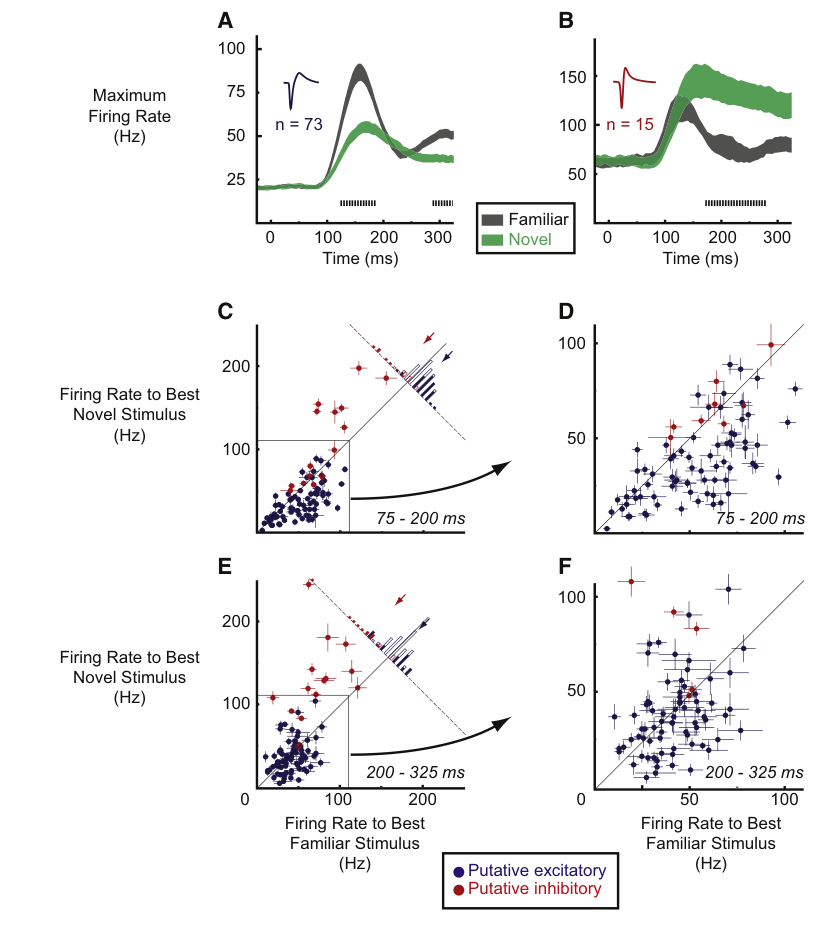
图 4 · 平均响应:两类细胞都降,抑制性降得猛
原文图注:Figure 4. Visual Experience Decreases Average Stimulus-Evoked Responses of Putative Excitatory and Inhibitory Cells Conventions same as in Figure 3 with the notable exception that the metric of interest is the average, not maximum, response across the 125 familiar or 125 novel stimuli. Error bars in (C) and (D) represent mean ± SEM across the 125 familiar or 125 novel (mean) firing rates. Individually significant cases in histograms of (C) and (D) were determined with a t test (p < 0.05).
该图延续图 3 的排布方式,评估指标替换为 125 个刺激的平均放电率。图 A 与 B 的滑动窗曲线显示,新异刺激(绿线)诱发的群体平均放电整体高于熟悉刺激(黑线),分歧出现在初始瞬态反应之后。图 C 与 D 展示早晚两期的逐细胞散点分布及差值直方图:红色箭头(抑制性)的负向偏移幅度远超蓝色箭头(兴奋性),表明熟悉性引起的平均放电衰减在抑制性神经元中显著更为剧烈。该图为结果 2 提供了直接证据。
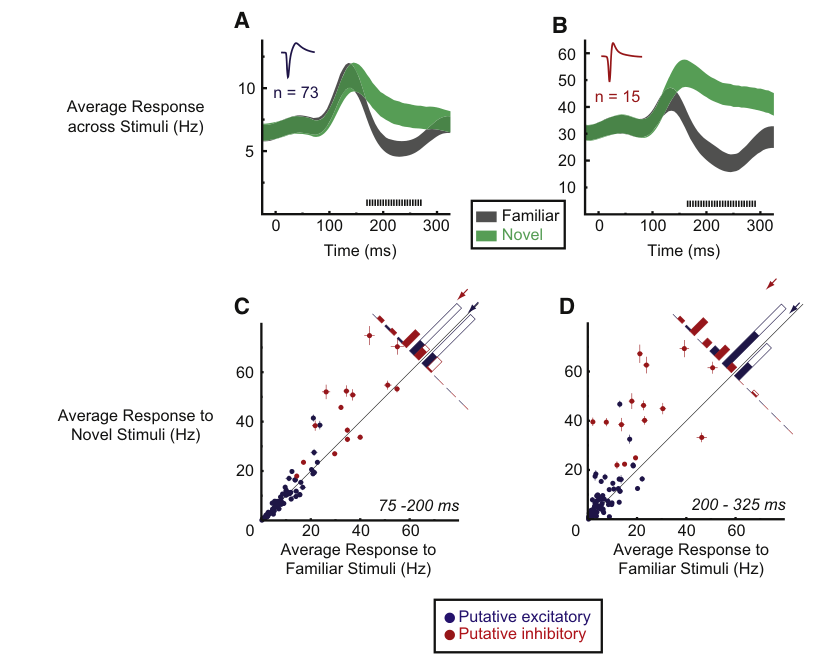
图 5 · 选择性:熟悉刺激的表征更稀疏
原文图注:Figure 5. Visual Experience Increases Selectivity of Putative Excitatory and Inhibitory Cells Same conventions as in Figures 3 and 4, except that the metric investigated is sparseness across the 125 familiar or 125 novel stimuli. Individually significant cases in histograms of (C) and (D) were determined with a permutation test (p < 0.05).
该图检验了两类细胞对 125 个刺激的稀疏度分布(取值 0 至 1)。红色数据点代表的抑制性细胞稀疏度普遍较低,表明其调谐较为宽泛。蓝色兴奋性细胞群体对熟悉刺激的稀疏度显著高于新异刺激(早窗增量 +0.11、晚窗增量 +0.08,均 p < 0.001);而抑制性神经元仅在晚期呈现微弱且不稳定的上升趋势。该图支持结果 3 中关于长期经验提升表征选择性的结论。
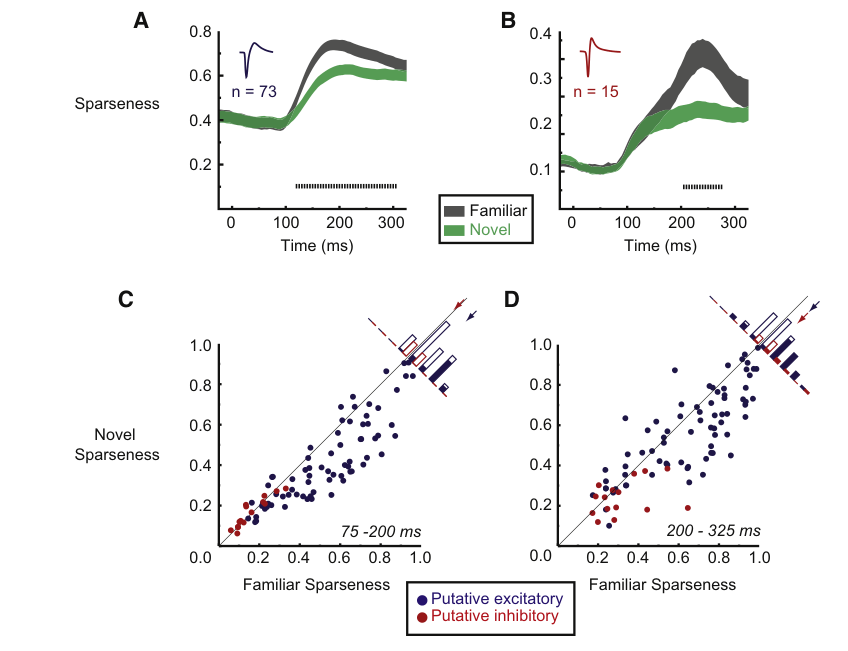
图 6 · 最大响应的增量预测稀疏性的增量
原文图注:Figure 6. For Putative Excitatory Cells the Experience-Dependent Increase in Maximum Response Predicts the Experience-Dependent Increase in Selectivity The difference between familiar and novel sparseness is plotted as a function of the difference between maximum familiar and maximum novel responses. Each point represents a single putative excitatory unit. Maximum responses and sparseness values were taken from the early epoch (75–200 ms).
散点图横轴为早期窗口“最优熟悉刺激响应与最优新异刺激响应之差”,纵轴为“熟悉集与新异集稀疏度之差”,每个数据点对应一个推定兴奋性单单元。点阵分布呈显著正相关(r = 0.77,p < 0.001),即最优反应增强幅度越大的细胞,其表征稀疏度增幅越大。该图证实表征稀疏化主要依赖偏好刺激反应的放大,构成了结果 3 的关键机制支撑。
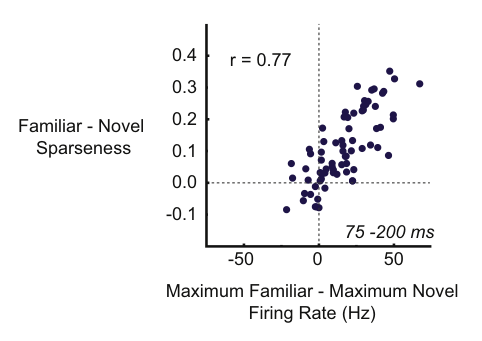
图 7 · 判别力:经验没有让细胞"变笨"
原文图注:Figure 7. Putative Excitatory and Inhibitory Units Can Discriminate between Stimuli within the Familiar and Novel Sets (A) Distribution of individual cells' familiar (x axis) and novel (y axis) mean pairwise AUC values during the early epoch (75–200 ms). Each data point represents the mean pairwise AUC value of a single unit. Cells are color labeled according to cluster membership (blue, putative excitatory; red, putative inhibitory). Histogram in the top right shows the distribution of AUC differences for both subpopulations. For clarity all bars are shaded, but this does not indicate significance. Arrows denote mean differences across either the putative excitatory (blue) or inhibitory (red) cell class. (B) Same as in (A) but for the late epoch (200–325 ms). (C) Relationship between sparseness and mean pairwise AUC value for familiar (black) and novel (green) stimuli during the early epoch (75–200 ms). Putative inhibitory units are indicated by open circles. (D) Same as in (C) but for the late epoch (200–325 ms).
图 A 与 B 对比了各神经元在早期和晚期窗口内对熟悉集(横轴)与新异集(纵轴)的平均成对 AUC 指标:数据点基本均匀分布于等值线两侧,红色抑制性单元整体辨别力高于蓝色兴奋性单元。图 C 与 D 展示了稀疏度与平均成对 AUC 之间的散点关系,二者呈显著负相关(早窗 r = −0.51/−0.61,晚窗 r = −0.83/−0.78)。该图支持结果 4,表明经验促使单个神经元对更少量的熟悉刺激保持特异反应,而群体辨别能力保持稳健。
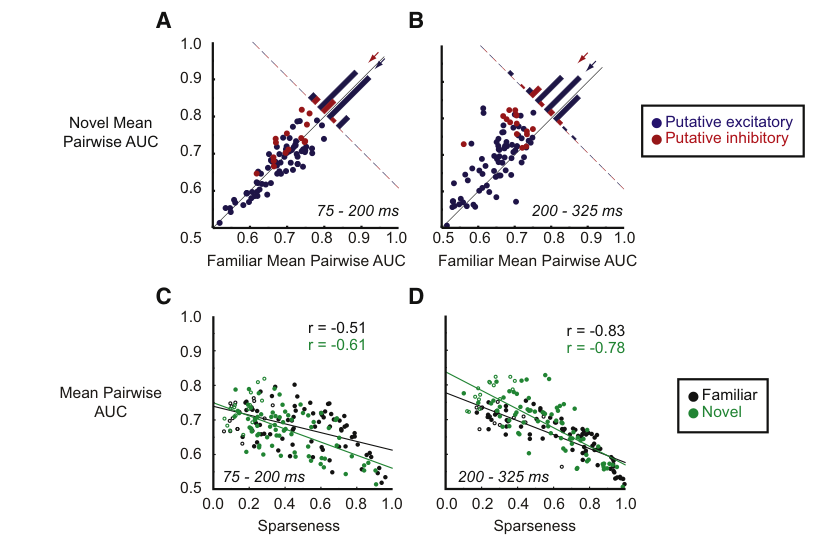
图 8 · 两类细胞变化的示意总结
原文图注:Figure 8. Schematic Representation of Experience-Dependent Firing Rate Changes in Putative Excitatory and Putative Inhibitory Units (A) Firing rates of putative excitatory neurons are arranged in descending order of effectiveness. In this cell class, visual experience increased responses to the most effective stimuli, particularly in the early epoch, and decreased responses to moderately effective stimuli, especially in the late epoch. spks, spikes. (B) Same as in (A) but for putative inhibitory units. Visual experience caused a much more widespread and noticeable decline in firing rates of these neurons. This change was most prominent in the late epoch.
模式图将神经元按刺激有效性从高到低排列,对比了熟悉与新异刺激在两类神经元中的调节方向。图 A 展示兴奋性神经元在顶端(最优刺激,尤其是早期窗口)放电受熟悉性提升,在中段(中等有效刺激,特别是晚期窗口)放电被压低;图 B 展示抑制性神经元在整个刺激序列上普遍表现出放电减弱,以晚期窗口最为明显。该图概括了结果 1 至 3 的主要发现,解释了未细分细胞类型与时段的整体平均易得出中性效应的原因。
讨论
作者在讨论中对既往方法学矛盾做出了重新解释:当将当前数据按照传统口径处理——即合并两类细胞亚群且合并 75–325 ms 全时间窗时,熟悉刺激的最大反应增量缩减至 2.64 Hz(p = 0.40),复现了前期部分研究的微弱变化结果;同样,当通过下采样将刺激集缩减至早期研究常用的 ≤20 张规模时,群体差异也随之消失。这表明早期文献的分歧可能并非实验现象本身冲突,而是分析粒度与刺激库规模差异造成的假象。
在突触环路机制层面,兴奋性神经元反应的快速增益与初始视觉诱发电位同步,更符合上游前馈输入(如 V4 投射)发生突触增强的特征,可能由 Hebbian 可塑性及 NMDA 受体介导的长时程增强(LTP)驱动;晚期窗口出现的放电抑制则提示 ITC 内部侧向连接的弱化或重塑。对于抑制性神经元,作者提出其接收周边广泛兴奋性输入的池化信号,对未熟悉的新异刺激表现出强反应,提示其可能作为新异性检测信号参与皮层可塑性的诱发。作者同时指出该分类存在的局限性,例如部分运动皮层下行锥体神经元也可呈现窄波形,但在灵长类 ITC 区域区分宽波形与窄波形仍提供了有效的功能分析维度。
一句话总结
该研究表明长期视觉经验对下颞叶皮层不同亚型神经元具有解离性调节作用:显著增强推定兴奋性神经元的最优反应并提升表征稀疏度,同时抑制推定抑制性神经元的整体放电,阐明了细胞亚型细分与充足刺激采样对解析高级皮层可塑性的关键作用。