该研究是探讨猕猴颞叶“面孔细胞”(face cells)的早期系统性实验之一:在 3 只清醒猕猴的上颞沟(superior temporal sulcus, STS)沟底记录了 497 个单细胞,分离出至少 48 个对面孔特异性放电的神经元,并通过几何图形、多样三维物体、唤醒/厌恶刺激、面孔视角变换以及遮蔽五官等对照实验,逐一检验并排除了唤醒、情绪及简单特征感受野等替代解释。研究展示了单细胞电生理对神经元具体编码属性的界定方式,其对面孔构型敏感性(正常排布反应显著强于打乱排布)的发现,为后续面孔知觉神经机制的研究提供了基础范式。
研究背景
在这一研究开展前,行为学与临床观察已经提示面孔可能属于一种特殊的视觉刺激。婴儿很早便会对面孔图案表现出特异反应,而部分局灶脑损伤患者会出现面容失认症,但其他物体知觉相对保留。这些现象提示面孔加工可能具有相对独立的神经基础,但尚未阐明单个神经元究竟提取何种视觉信息。与此同时,非人灵长类颞叶的单细胞研究逐渐揭示出复杂的视觉选择性。作者团队在视觉辨别学习实验中观察到,上颞沟沟底部分细胞对面孔出现强烈放电,而对训练用的辨别刺激缺乏反应,这为将相关临床与行为现象转化为受控的电生理实验提供了切入点。
核心问题在于,神经元在呈现面孔时放电并不等同于其专门编码面孔的视觉结构。真实面孔伴随社会学意义,可能诱发唤醒、威胁感、预期或表情动作;神经元也可能仅对某种普遍存在的局部特征反应,而非响应面孔的空间组织构型。若未严格控制这些变量,所观察到的选择性放电可能只是整体唤醒状态或行为反应的伴随现象。此外,即使确认放电属于视觉反应,仍需进一步确定该反应依赖于整体面孔、个别五官还是五官之间的相对空间排布,以及在改变尺寸、颜色、平面旋转和视角变换时能否保持恒常性。对这些特征的耐受程度与敏感性,构成了界定该区域神经元是否参与高级复杂模式识别的关键。
本研究在清醒猕猴的上颞沟记录神经元活动,通过非面孔物体、简单几何图形及唤醒性刺激建立对照,并借助照片呈现、视距改变、五官遮蔽与构型打乱等实验操纵检验反应选择性的来源。实验结合皮肤电反应与行为观察以排除一般性唤醒或动作诱发的影响,利用刺激变换区分局部特征与整体空间构型的贡献。研究重点在于明确面孔反应细胞的编码属性并检验具体的替代解释,而非单纯列举偏好面孔的神经元案例。同时,该研究具有明确的解释边界:不同细胞依赖的五官组合存在异质性,多数细胞对熟悉与陌生面孔均有反应,不能由此推断单个神经元表征特定个体;对部分二维变换的耐受性也不等同于完全的视角不变性。研究中关于人类面容失认或社会行为障碍的探讨,属于基于解剖联系和生理证据提出的推测性解释。
研究思路
实验的整体策略是将可能的非视觉解释逐一转化为可检验的对照条件。刺激材料包含高对比方波光栅、条纹与斑点等简单几何图形,1000 余件尺寸、形状、颜色和表面纹理各异的三维物体,真人面孔、照片与投影面孔,以及用于诱发唤醒的听觉、触觉和视觉厌恶刺激(气吹、羽掸、逼近物体、蛇与蜘蛛模型、食物、手和白大褂等线索)。研究通过系统变换检验神经元反应的不变性特征:调整呈现时长、观察距离(20 cm 至 2 m 以上)、颜色滤片(红、绿、蓝等 Wratten 滤片)、同构旋转(水平翻转与倒置)及转向侧脸(profile);采用局部遮蔽与单独呈现五官检验反应依赖于局部特征还是整体;最后利用线描面孔与照片剪贴特征对比正常排布与打乱排布(jumbled),系统评估细胞在各类变换下是否仍保持对面孔的选择性放电。
方法
实验选用 3 只清醒雄性猕猴(体重 4.5–6.5 kg),固定于灵长类实验椅中,使用玻璃绝缘钨丝微电极记录单细胞电活动,经由 PDP11 计算机在线分析;电极轨迹通过 X 射线定位,并在记录末期实施微电损毁以进行组织学重建——其中 5 个面孔选择性神经元的记录位点经组织学确认位于 STS 沟底皮层。实验过程中,动物首先训练视觉辨别任务:对 S+ 刺激产生舔吮动作可获得果汁奖励,对 S- 刺激停止舔吮以避免摄入高渗盐水;辨别刺激在快门开启(开启时间小于 15 ms)后呈伪随机呈现,快门于 700 Hz 提示音后 0.5 s 开启并持续 1.0 s,测试刺激随机穿插其中且不给予强化。通过贴于足底的银/氯化银电极记录皮肤电反应(GSR)以评估自主神经唤醒程度,利用眼电图(EOG)监测注视状态,注视不良的试次予以剔除。分析时间窗取快门开启后 0.1 s 至 0.6 s(共 0.5 s),直方图显示 4–10 次呈现的平均放电率与标准误。刺激变换条件包括颜色滤片、观察距离/视网膜尺寸、水平翻转或倒置同构旋转,以及将实验者头部或玩具黑猩猩头部旋转 90°呈现侧脸(凝视方向保持正前)。遮蔽实验使用 1 cm 遮挡杆、1 cm 狭缝、2 cm 方孔及直径 6 cm 半圆孔等遮光板限制可见区域;构型实验使用透明胶片上的线描五官(三角与三点鼻、双圆眼、同心圆瞳孔、细栅格头发、带弧线牙齿)进行正常排布或旋转 90°/180°/270°的打乱排布,并利用黑白照片剪切下的真实五官粘贴于正常或错位坐标进行对照测试。
主要结果
- 记录位点与细胞构成:在 STS 沟底及上壁 2-3 mm 内共记录 497 个细胞(位于耳间平面前方 5-11 mm),其中至少 48 个为面孔选择性细胞,另有 49 个对面孔有反应但数据不足以确认选择性基础;其余 207 个有视觉反应的细胞多数(98 个)偏好运动刺激(图 1)。面孔细胞以兴奋性放电为主,潜伏期 80-180 ms(图 2),92%(44/48)呈持续性放电;对 100-300 ms 的短呈现,放电精确锁定刺激的起始、时长与结束(图 3)。
- 反应一致且不习惯化:面孔反应在长达 1-3 小时的记录期内稳定可重复(图 4);快速连续重复呈现时,23 个测试细胞中仅 5 个出现反应下降倾向。
- 非面孔解释被系统性排除:面孔反应比光栅、几何图形或复杂三维物体大 2-10 倍(图 5);对听觉(22 个测试细胞中仅 2 个短暂反应)、触觉(21 个中 5 个弱短暂反应)基本无反应,对厌恶性视觉刺激(44 个测试)虽 GSR 更大却反应更弱(图 6);面孔奖励化或惩罚化不改变反应大小;行为反应(咂嘴、龇牙等)的类型与强度和神经元放电无对应关系(12 个细胞检验)。
- 变换视角下反应高度耐受(图 7):76%(26/37)的细胞对面孔照片呈强烈反应,颜色滤片仅使 18 个测试细胞中的 1 个略降;14 个细胞在 20 cm 至 2 m 以上观察距离(图像尺寸相差约 10 倍)下反应恒定;21 个细胞对水平/倒置旋转反应等同。唯一大幅影响反应的变换是转向侧面——32 个测试细胞中 21 个被明显削减或消除(图 8),部分细胞甚至转 10-20°即显著下降。
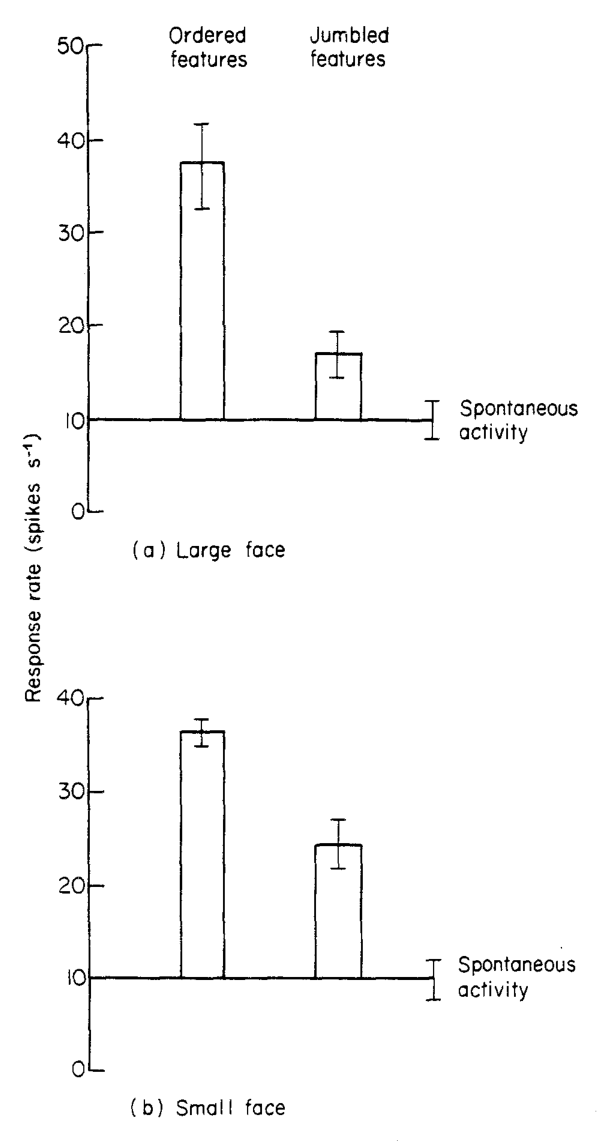
- 五官部分与构型敏感性:多数细胞在遮住部分或半张脸时仍能反应,但 35 个细胞中眼睛对 23 个(测试 31 个)、头发对 21 个(测试 41 个)、嘴部对 18 个(测试 25 个)有效;不同细胞的特征组合互不相同,多数细胞对整脸的反应大于任何单独部分(图 9、10)。构型上,一个细胞对"同心圆+点"的眼刺激反应良好、对结构被破坏的两个圆或两个点不反应(图 11 上);另一细胞对正常排布线描面孔的反应显著大于打乱排布(t=5.3, df=13, P<0.001,图 11 下);照片剪贴特征实验中 3/4 的细胞偏好正确排布,其中一个细胞正常对打乱 t=3.98, df=19, P<0.001,1/4 尺寸的面孔上仍成立(t=4.03, df=4, P<0.02,图 12)。多数细胞对人和猴、熟悉与陌生面孔都反应。
图注解读
图 1 · 面孔反应细胞的解剖定位
原文图注:Fig. 1. Anatomical location of cells responding to faces. Left Outline drawing of lateral view of left hemisphere of rhesus monkey brain. The stippling along the superior (sup) temporal sulcus indicates the range in anterior/posterior position (5-11 mm anterior to the interaural plane) over which cells responsive to the sight of faces were recorded. Right Outline drawing of brain structures evident in a coronal section of the brain of one monkey taken 8 mm anterior to the interaural plane. The positions of 18 cells recorded in this monkey within 1 mm of the plane of the section are reconstructed
左图为猕猴左半球外侧面轮廓,沿上颞沟的点状阴影标出记录到面孔反应细胞的前后范围(位于耳间平面前方 5–11 mm);右图为一只猕猴在耳间平面前方 8 mm 处的脑冠状切面,重建了该切面 1 mm 范围内记录到的 18 个面孔反应细胞的解剖位置。该图确立了面孔选择性细胞主要分布于 STS 沟底、靠近 von Bonin 与 Bailey 分区的 TA 与 TE 交界区域,为后续细胞电生理特性的分析提供了空间解剖依据,对应结果第 1 条。
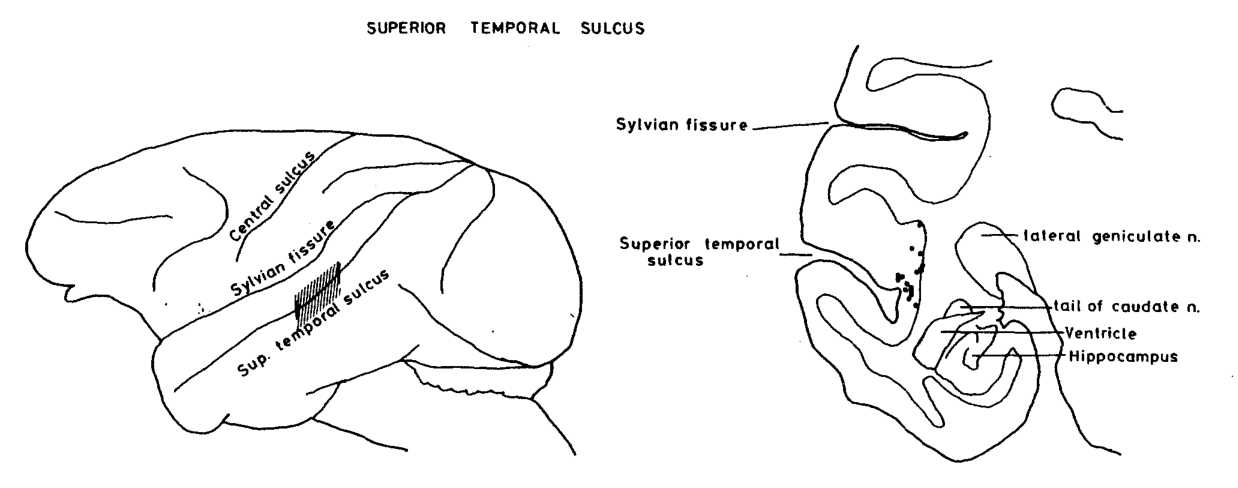
图 2 · 反应潜伏期分布
原文图注:Fig. 2. Response latencies of the neurones in the cortex in the fundus of the STS which responded selectively to faces
直方图展示了面孔选择性细胞的视觉反应潜伏期分布,横轴为潜伏期(标尺 80–160 ms),纵轴为细胞数量。所有细胞均表现为兴奋性反应,潜伏期集中在 80–180 ms(正文统计值),与 STS 内其他视觉反应神经元相当。该潜伏期特征一方面排除了通常反应更慢且不稳定的运动控制或自主情绪反应,另一方面提示面孔视觉信号在该皮层区域已完成一定程度的加工整合,对应结果第 1 条及讨论中的论证 (1)。
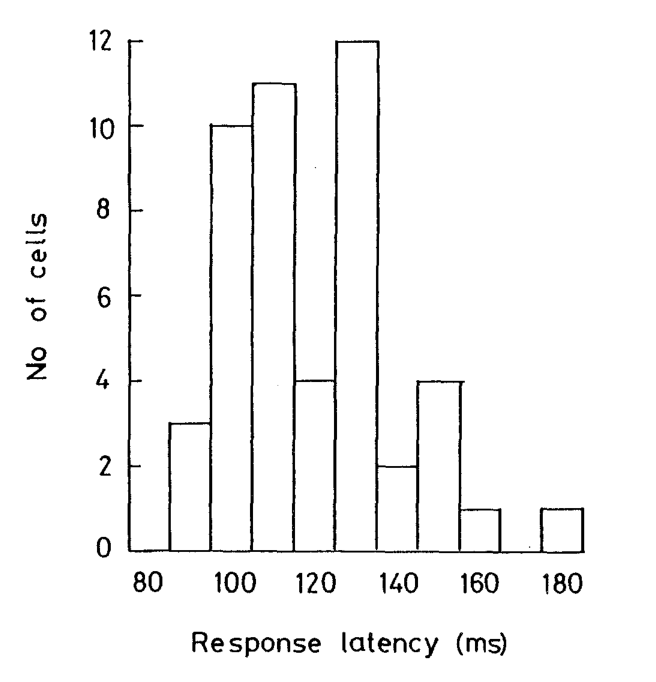
图 3 · 不同呈现时长的反应栅格图
原文图注:Fig. 3. Visual responses of an STS cell to faces presented for different lengths of time. Each dot represents the occurrence of one or more action potentials in a 10-ms time bin. Each horizontal row of dots represents data from a single trial. Data from different trials which originally occurred in random order have been rearranged for the display. During visual discrimination trials, the monkeys gave a lick (L) response to one of two stimuli, which were presented from behind a shutter at time zero after a 0.5-s signal tone. Time relative to the opening of the shutter is shown along the horizontal axis. The cell recorded was unresponsive to the sight of the discriminative stimuli but gave a large sustained excitatory discharge when the shutter opened to reveal the face of the experimenter
逐试次放电栅格图(raster)中,每个点代表 10 ms 时间仓内发生的动作电位,每一横行对应单个试次,横轴表示相对快门开启(0 时刻)的时间。数据按测试条件归类:在视觉辨别试次中,细胞对辨别刺激(标注 L 的舔吮反应)无反应;当快门开启呈现实验者面孔时,细胞出现显著的持续性兴奋放电。下方各行进一步显示,当面孔分别呈现 1.0 s、0.3 s 和 0.1 s 时,细胞放电持续时间严格跟随刺激时长变化。该结果提供了神经元放电与视觉刺激在时间上紧密锁定、且随刺激时长变化的电生理记录,支持排除非特异性运动或情绪解释,对应结果第 1 条及讨论中的论证 (1)。
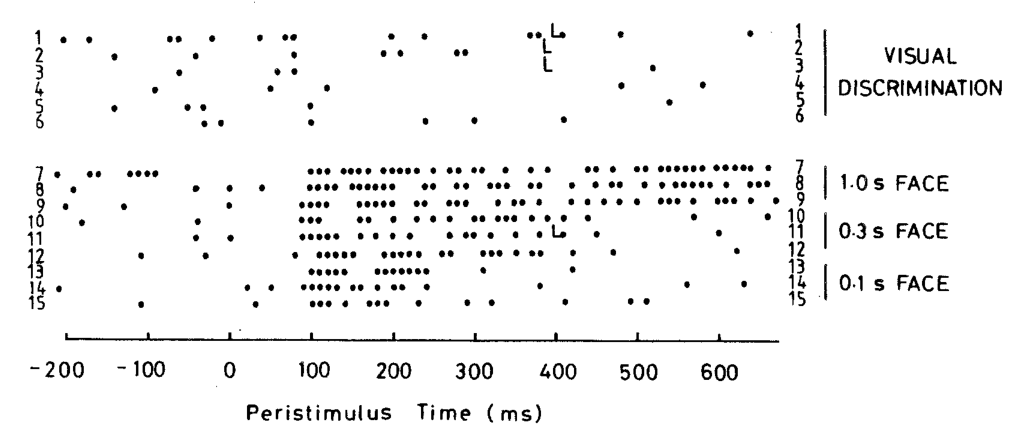
图 4 · 3 小时内反应的一致性
原文图注:Fig. 4. Consistency of responses to a face over the testing period. Format is as for Fig. 3. Columns at the right side give the total number of spikes occurring on each trial in the time periods 100-300 ms and 100-600 ms after shutter opening. All rows of dots represent activity from trials (over a 3-h period) on which the face of the experimenter was presented
该栅格图汇总了 3 小时记录期间呈现实验者面孔的所有试次放电,格式与图 3 相同;右侧各列列出了每个试次在快门开启后 100–300 ms 及 100–600 ms 时间窗内的动作电位总数。记录显示各试次放电量虽有一定起伏(如 49、24、50、37 等),但在数小时内均维持稳定水平,表明面孔引起的神经元反应具有可重复性,且未发生明显习惯化,排除了偶然放电或动物状态短暂波动的解释,支持结果第 2 条。
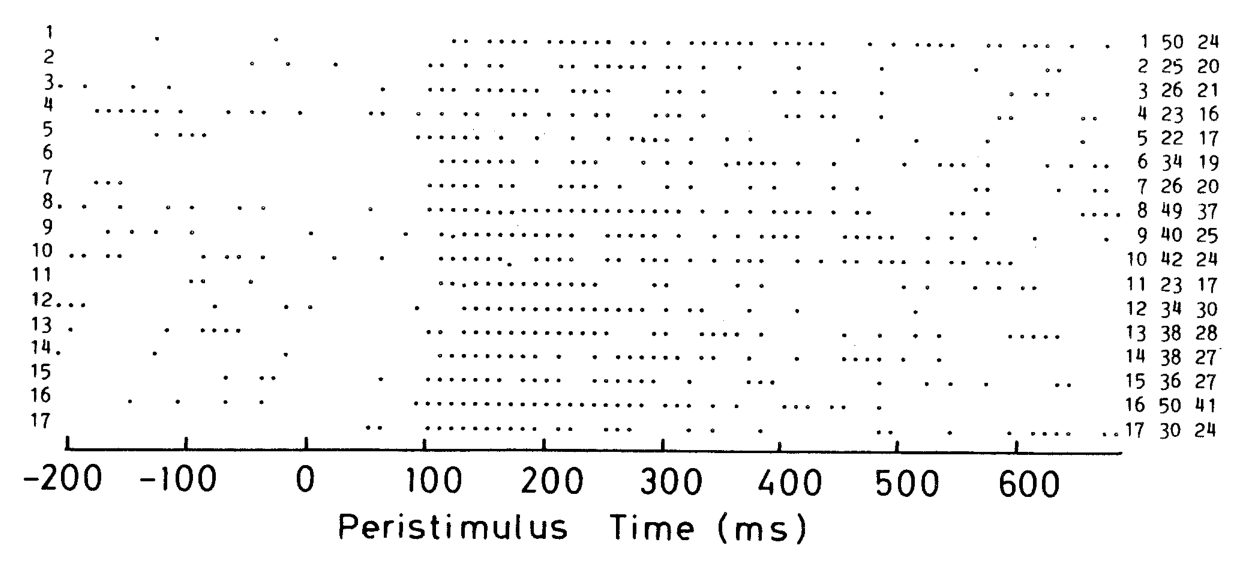
图 5 · 视觉选择性直方图
原文图注:Fig. 5. Visual selectivity. Histogram of the mean (+/- the standard error) of the responses (spikes/s) for one cell are given for different stimuli relative to the cell's spontaneous firing rate. This cell gave large excitatory responses to the sight of faces but did not respond to the sight of simple geometrical stimuli such as bars and square wave gratings or to more complex three-dimensional objects. The cell was unresponsive during somatosensory stimulation (stroking the legs) and to auditory stimuli (loud noises made out of sight)
单细胞直方图展示了各刺激类别下的平均放电率(spikes/s,附标准误,已扣除基线自发放电率),横轴依次列出面孔、几何图形、三维物体、躯体感觉刺激及声音刺激。数据显示仅面孔刺激引发了显著高于自发放电水平的兴奋反应,其余各刺激条件的反应均接近基线水平。该图量化展示了面孔选择性神经元的代表性放电特征,反应幅度高出其他刺激 2–10 倍,对应结果第 3 条。
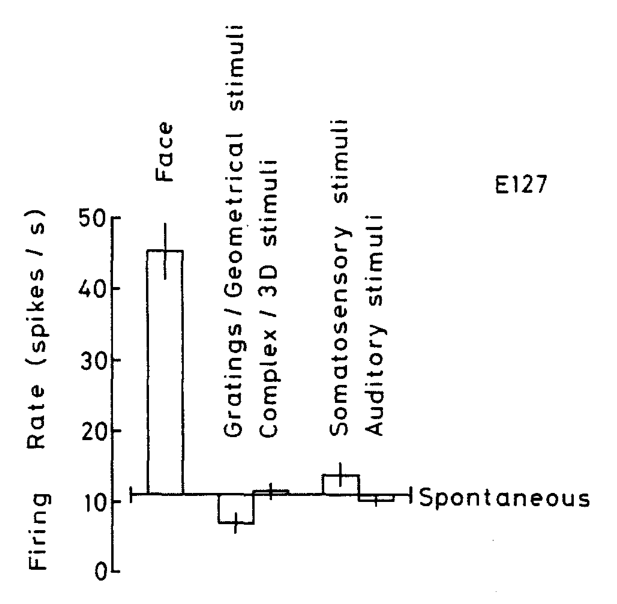
图 6 · 唤醒性刺激不诱发反应
原文图注:Fig. 6. Arousing stimuli. A comparison of the responses of one cell to the sight of faces and arousing or interesting visual stimuli. The mean and standard error of the responses (spikes/s) are given for the different stimuli relative to the cell's spontaneous firing rate. The cell responded well to the face, but not to the sight of aversive stimuli (such as an air puffer) or to stimuli moving towards the monkey (looming stimuli). The cell also did not respond to stimuli with human meaning (such as a hand) or to the sight of food
该直方图对比了单个神经元对面孔刺激与各类唤醒性或显著视觉刺激的反应,包括厌恶性刺激(气吹)、逼近物体(looming)、带有生物学意义的刺激(人手)以及食物等。结果显示该神经元仅对面孔表现出高放电率,而诱发了显著皮肤电反应(GSR)的其他唤醒刺激仅引起微弱或无反应。该对照表明自主生理唤醒水平的升高并不伴随神经元放电的增加,支持排除一般性唤醒解释,对应结果第 3 条与讨论中的论证 (2)。
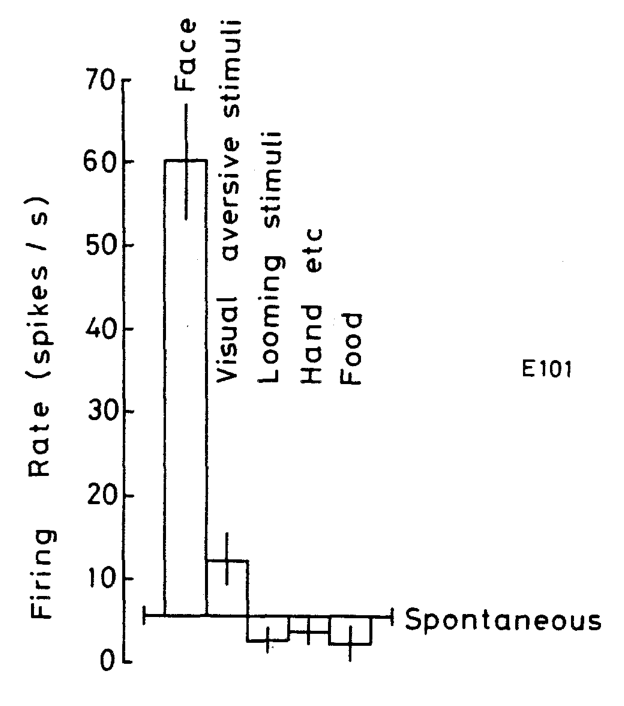
图 7 · 变换视角下面孔反应的耐受性
原文图注:Fig. 7. Transformed faces. The mean and standard error of the firing rate (spike/s) for one STS cell are given relative to spontaneous activity for different views of faces. From top to bottom: experimenter's face at a distance of 2 m, experimenter's face viewed through red, green and blue colour filters, experimenter's face upside down, experimenter's face in profile
单细胞直方图自上而下显示了不同面孔变换条件下的放电率(spikes/s,附标准误):2 m 距离观察、红/绿/蓝滤色镜下观察、倒置面孔以及侧脸(profile)。结果表明,神经元在 2 m 视距、三色滤片及倒置条件下仍保持与常规面孔相当的强反应,但转向侧脸时放电率显著下降。这一现象界定了该神经元对低级特征变化的耐受范围与对头部朝向的敏感性边界,对应结果第 4 条。
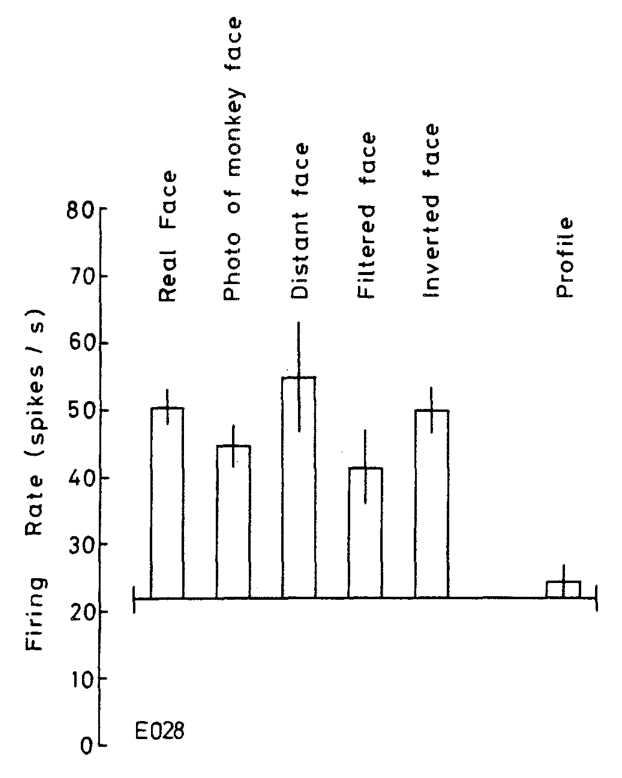
图 8 · 侧脸旋转的逐试次栅格图
原文图注:Fig. 8. Responses to face profile. Format as Fig. 3. Activity of one STS cell on individual trials (originally occurring in random order) is displayed on separate lines. For each trial the angle (to the left or right) of the stimulus face toward profile, away from full face, is given in the column on the right
放电栅格图展示了单个 STS 细胞在不同头部偏角下的逐试次反应,右侧列出面孔偏离正脸转向左侧或右侧的角度。在正脸状态(接近 0°)时神经元放电密集,随着偏转角度增加,放电活动迅速衰减,表现出明显的角度依赖性。该例证具体呈现了侧脸旋转对细胞反应的抑制效应(在 32 个测试细胞中 21 个出现类似削弱或消除),对应结果第 4 条及讨论中关于正脸社会交流信号意义的推测。
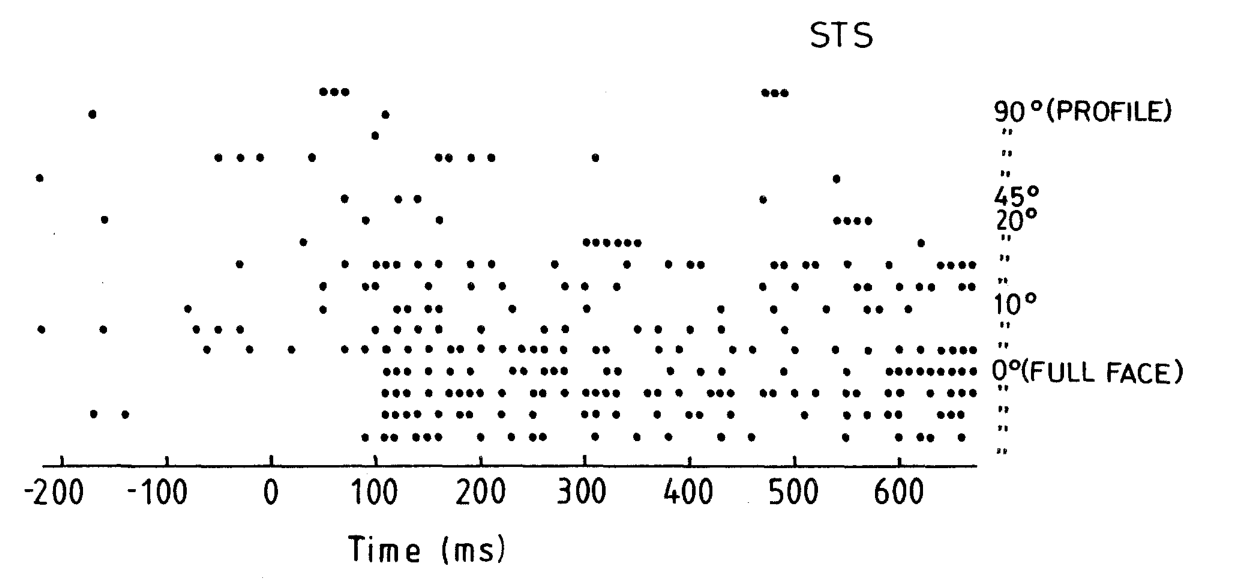
图 9 · 眼睛:必要还是充分?两个细胞的相反行为
原文图注:Figure 9 illustrates the effects of covering up the eyes or covering the rest of the face for two cells. For the cell on the right side, the presence of the eyes was necessary, and responses were reduced when a bar was placed over them. Consistent with this, presentation of the eyes alone in a slit view elicited a good response from the cell. Thus, for this cell, the eyes were a sufficient and necessary stimulus for the cell to respond. This behaviour is opposite to that of the cell on the left side which responded equivalently to the whole face and to the face with the eyes obscured, and failed to respond when only the eyes were viewed through the slit. Thus, for the left, the eyes were neither a necessary nor a sufficient part of the face to produce the response found to the whole face.(截断)
该图并列对比了两个神经元(E127 与 E122)在整脸、眼睛遮挡以及仅呈现眼睛狭缝条件下的放电情况,纵轴为高于基线自发率的平均放电率。右侧细胞(E122)在遮挡眼睛后放电消失,单独呈现眼睛时反应恢复,表明眼睛是其反应的充分且必要刺激;左侧细胞(E127)在遮挡眼睛时反应保持不变,单独呈现眼睛则无反应(主要对嘴部和头发反应)。该对比说明不同面孔细胞对特定五官特征的依赖具有异质性,对应结果第 5 条。
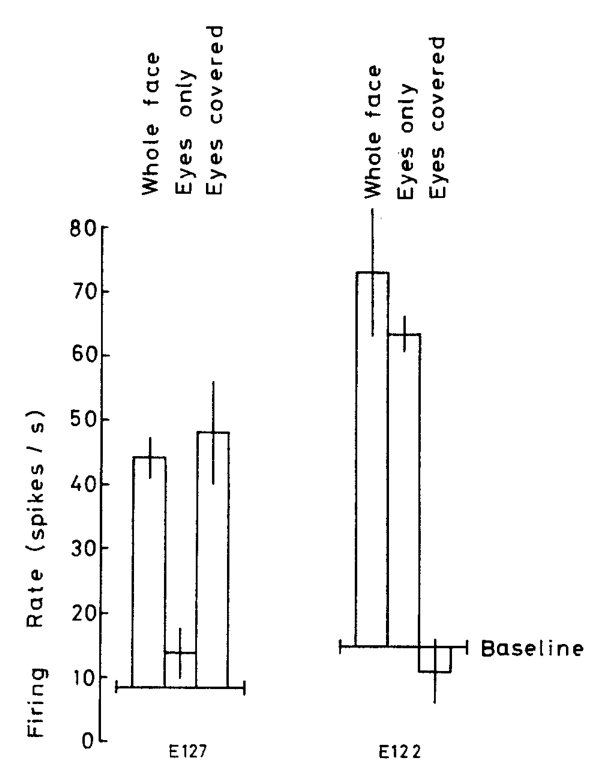
图 10 · 四个细胞对整脸与五官的反应剖面
原文图注:Figure 10 illustrates the different behaviour of four cells to face parts. For the cell at the top, a single eye, hair and mouth were ineffective individually in producing responses; the cell did, however, give a good response to the whole face. Cells on the second and third lines responded mainly to one of the facial features tested. The cell on the second line responded quite well to the mouth, whereas the cell on the third line responded more to the eye. The cell on the bottom line responded well to several of the features tested.
四行直方图分别对应四个不同神经元的反应剖面,横轴包括整脸、单独的眼睛、头发、嘴部以及非面孔对照刺激,纵轴为高于基线的平均放电率(刻度经归一化处理以便比对)。数据显示:第一行细胞仅对完整面孔产生反应,单独呈现各五官均无效;第二行细胞主要偏好嘴部,第三行偏好眼睛,第四行细胞则对多个单独特征均表现出显著放电。这表明群体中同时存在依赖整体构型、偏好单一特征以及响应多种特征的神经元类型,支持结果第 5 条关于特征依赖异质性的推断。
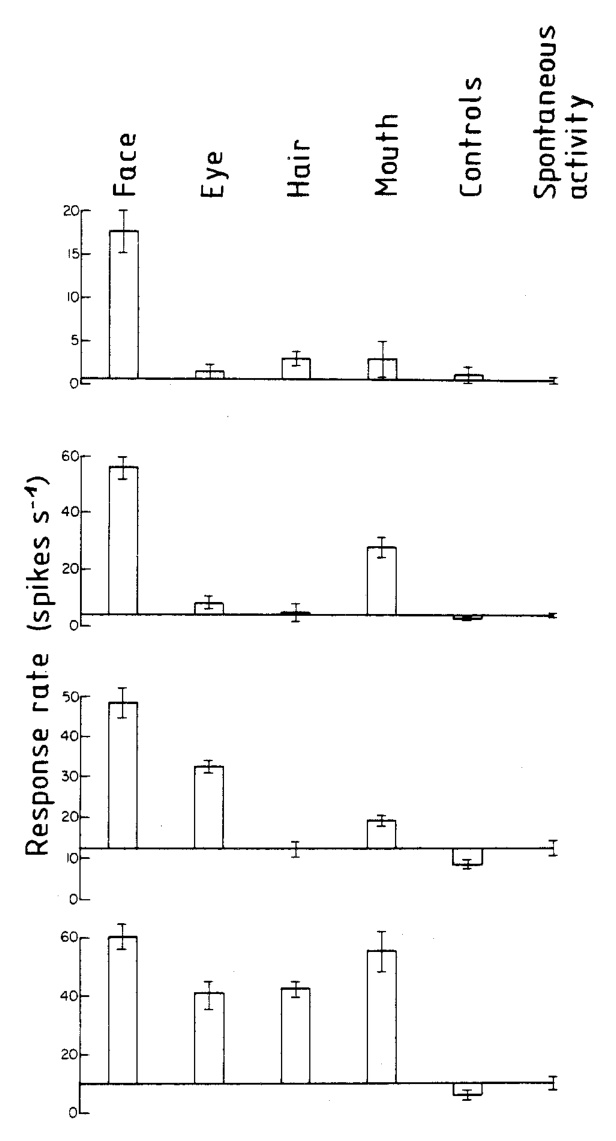
图 11 · 线描面孔:局部结构与整体构型
原文图注:Fig. 11. The effects of the local structure and general organization of line drawn face stimuli. Upper part. Format as Fig. 3. The right-hand columns give for each trial the total number of spikes occurring in the 250-ms and 500-ms time periods, commencing 100 ms after shutter opening. The responses of one cell to a line drawn face are compared to the responses of individual line drawn features. This cell responded well to the eye stimuli, a horizontal pair of concentric circles and dots, but failed to respond when the concentric structure was destroyed and two circles or two dots were presented alone. Lower part. The responses of a different cell to a line drawn face are compared to the responses to the same lines jumbled into three disorganized patterns (A, B and C). When the lines were organized into a face pattern, responses were significantly larger. The last two lines of the figure illustrate the larger responses of this cell to the sight of a real face or a real eye
栅格图呈现了两个神经元在线描刺激下的放电特征(右侧记录快门开启后 100–500 ms 的脉冲计数)。上半部分显示,该细胞对包含成对同心圆与中心点的线描眼睛刺激反应强烈,但当同心构型被破坏、仅呈现单纯圆圈或点状图案时反应消失;下半部分中,另一神经元对组织为面孔图案的线条反应显著高于相同线段构成的三种打乱图案(正常对比打乱排布:t=5.3, df=13, P<0.001),且对真实面孔与真实眼睛的放电幅度进一步高于线描图。该图表明神经元对刺激的选择性不仅依赖局部几何特征,更取决于特征间的整体空间构型,对应结果第 5 条。
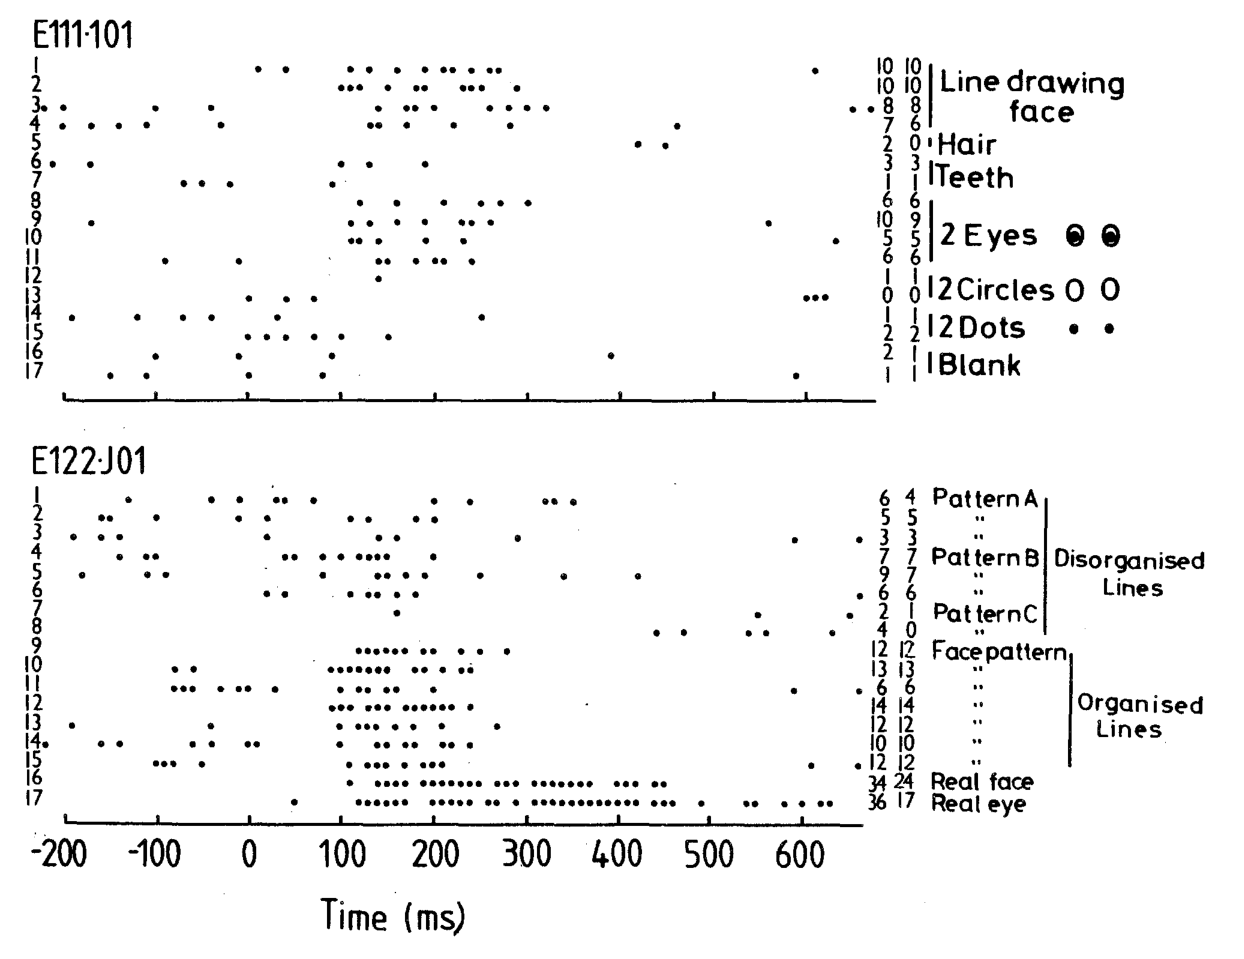
图 12 · 正常排布对打乱排布(照片剪贴特征)
原文图注:Fig. 12. The mean and standard error of the responses (spikes/s) to the normal and jumbled arrays of face features for two faces. The upper figure gives the mean responses for several different jumbles including jumbles symmetrical about the vertical axis. The lower figure compares responses to one jumbled array for a face one quarter of the size of that used in the upper figure
两组直方图记录了剪贴五官照片实验中的平均放电率与标准误:上图针对标准尺寸面孔,对比正常排布与包括垂直对称在内的多种打乱排布;下图针对 1/4 缩放尺寸的面孔,对比正常排布与打乱排布。结果显示,各类打乱排布的放电反应均显著低于正常五官构型(标准尺寸下 t=3.98, df=19, P<0.001;缩小尺寸下 t=4.03, df=4, P<0.02)。这一结果排除了线条局部密度或单纯视觉复杂度的解释,证实了神经元对面孔整体构型关系的敏感性,对应结果第 5 条。
讨论
作者从三个层面组织论证。首先排除非视觉解释:(1) 细胞放电与视觉刺激在时间上紧密锁定,并随刺激呈现时长缩放,符合感觉加工特性;若属于运动或情绪反应,潜伏期通常更长、更不稳定,且往往超出刺激呈现的时间范围;(2) 唤醒刺激虽诱发更大幅度的皮肤电反应,但神经元放电明显更弱,且动物的各类行为反应与放电量之间未发现直接对应;(3) 不同细胞对不同特征组合表现出选择性异质,这种特异性无法由普遍的唤醒或情绪激活解释。其次是编码属性的刻画:该区域细胞对面孔的多种低级成像变换(包括颜色变化、观察距离与尺寸、二维照片呈现及倒置)表现出耐受性,其选择性基于表征面孔存在的复杂视觉模式;与此形成对照的是,为 STS 沟底提供输入的下颞叶其他皮层区域神经元多表现为对朝向、颜色或纹理的选择性(Gross 等 1972;Rolls 等 1977)。倒置耐受性与人类心理物理学中的面孔倒置效应(Yin 1969)并不冲突:倒置并不妨碍识别其为面孔,单个细胞主要编码面孔特征的存在而非个体身份识别,个体特异信息更可能由群体放电表征。侧脸敏感性则可能与社会交互信号相关,因为正面对视在猕猴群体中具有直接的社会与威胁含义(Hinde 与 Rowell 1962)。最后在脑网络功能关联方面,STS 沟底接收来自下颞皮层的输入,并投射至杏仁核、顶叶与额叶;作者提出人类枕颞下部损伤引起的面容失认症,以及 Klüver-Bucy 综合征中伴随的社交识别缺陷,可能与该面孔处理系统及其传出通路的受损有关。研究局限包括未在清醒动物中完整测定感受野(依据麻醉动物数据推测感受野较大且涵盖双侧视野),由于记录位点主要位于左半球,功能偏侧化问题尚不明确;此外,与 Bruce 等(1981)在 STS 背侧壁记录到的多感觉面孔细胞相比,本实验沟底细胞的反应潜伏期更短(80–180 ms 对 200–300 ms),且未表现出多感觉会聚特性。
一句话总结
该研究通过严格的实验对照逐一排除了唤醒、情绪、运动和简单特征等替代解释,确立了猕猴上颞沟神经元对面孔构型与特征组合的选择性编码,将面孔识别特异性推进为可实测的单细胞生理问题。