该综述系统梳理了非人灵长类腹侧视觉通路的皮层中枢颜色加工机制:从外侧膝状体(LGN)的色拮抗通道出发,经 V1 的视锥信号线性组合、V1 与 V2 的非线性变换(形成窄谱色调与饱和度选择性),再到 V4 整合照明信息实现色恒常性(color constancy),最终汇聚至下颞叶皮层(TE 区)参与颜色范畴辨别。作者以视锥信号组合的线性与非线性判据为核心线索,提出了颜色信息逐级变换的五阶段计算假说。
研究背景
颜色视觉的机制研究起于一个基本区分:到达眼睛的是光谱能量,人所体验的却是表面的色调、饱和度与相对稳定的颜色。灵长类三种视锥对光谱的敏感范围不同,视网膜及外侧膝状体通过比较这些信号形成色拮抗通道。红绿方向主要涉及长、中波视锥的对抗,黄蓝方向则涉及短波视锥与其余视锥输入的比较。心理物理中的颜色适应也支持这些早期通道的重要性,但知觉中的独特色方向并不简单等同于这些基轴。因而,找到早期色拮抗信号,只解决了颜色信息如何开始被分解的问题,尚未解释丰富的色调选择和日常表面颜色判断如何形成。
到这篇综述写作时,解剖与生理证据正在修正一条单一路线的想象。短波视锥相关信号可经小双分层节细胞和膝状体层间通路进入皮层,提示颜色输入本身具有多路来源。进入皮层后,不同区域的神经元又呈现不同形式的颜色调谐:有些反应仍可由视锥信号的线性组合描述,有些则显示窄范围色调或饱和度选择。与此同时,颜色辨别与色恒常并不相同;前者要求区分刺激,后者要求在照明改变时维持对表面颜色的判断。若只根据某区有很多颜色敏感细胞就称其为颜色中枢,便无法解释不同损伤对这些能力产生的不同影响,也会掩盖多个加工环节之间的分工。
Komatsu 因此沿腹侧视觉通路组织证据,以颜色空间中等响应轮廓是否符合线性模型为判据,追踪视锥信号的重新组合与非线性选择,并结合损伤、冷却和成像研究讨论各区的行为贡献。综述把早期皮层的调谐形成、与第四视觉区有关的照明补偿,以及颞叶皮层参与的颜色辨别放入一个分阶段框架。这是对当时证据的机制性整合,并非同一实验逐站测得的完整回路。尤其是照明信息如何进入色恒常计算、下颞叶是否通过颜色模板支持范畴判断,仍含有明确的假设成分;神经元偏好范围与人类颜色名称相近,也不能直接证明猴脑采用相同的语言类别。阅读这一框架,应将已记录的反应性质、干预后的行为缺损与作者提出的计算角色分开。
研究思路
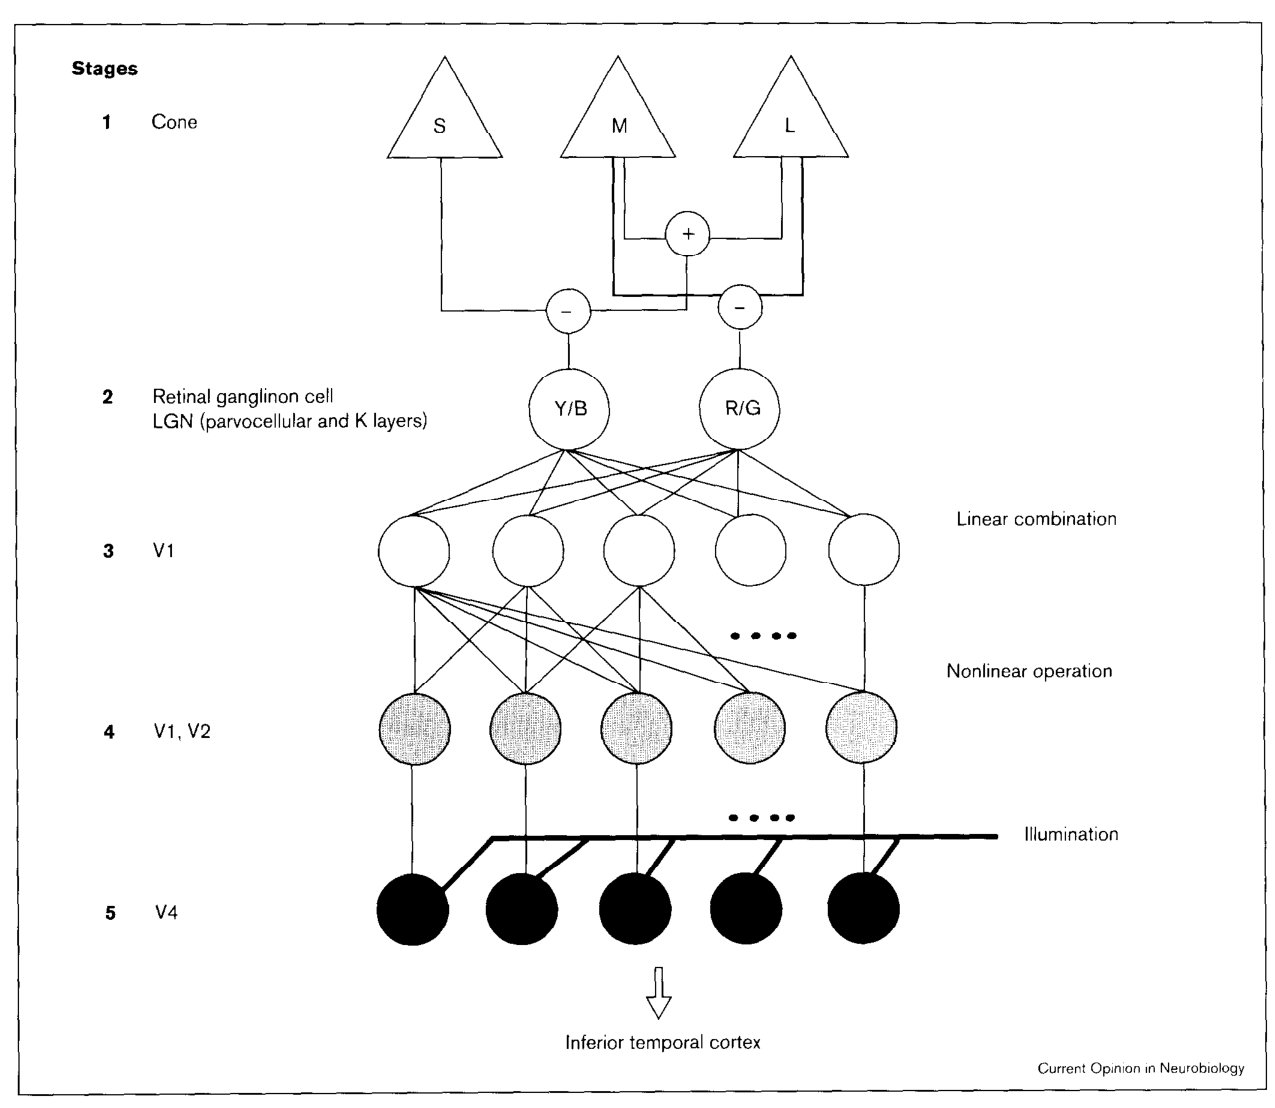
作者的总体策略是一条技术判据贯穿全通路:把神经元的颜色调谐画到色度图(chromaticity diagram,如 CIE xy 图)上,看等响应等高线是直线还是曲线。若刺激色沿颜色空间各方向等亮度调制时神经元响应可以写成锥信号的线性总和,等高线应当是直线(LGN 细胞正是如此);等高线明显弯曲则说明输入经过非线性组合,这恰是形成特定色调或饱和度选择性所必需的。以这条判据为尺,作者沿"视网膜→LGN→V1→V2/V3→V4→IT"逐级检视证据,把每级放进五阶段假想图(Figure 1):线性组合发生在 V1(第 3 阶段),非线性作用始于 V1、在 V2 加剧(第 4 阶段),照明效应的折算发生在 V4(第 5 阶段)。与此同时,用损伤与失活的行为数据交叉检验每一级的功能必要性——单细胞调谐说明"有什么信号",损伤后果说明"缺了它什么崩塌",两线合围得到各级的真实功能。
方法
作为综述,本文没有自己的实验被试,其证据方法是引用式的,但读到结果需要理解这些方法的逻辑。单细胞记录主要在清醒猕猴(以及用于 LGN 层间带分析的普通狨 Callithrix jacchus)上进行,覆盖 LGN、V1、V2、V3、V4 与下颞叶(inferior temporal, IT)皮质;颜色选择性用 Derrington 等(1984)与 Lennie 等(1990)发展的一类方法测定——以白点为中心沿颜色空间各方向做等亮度的正弦色调制刺激,然后记录细胞对各方向的响应;把等亮度色画在色度图上并连接等响应点,即可判断输入是线性还是非线性组合。药理学证据来自对 V1 色选择性神经元的 bicuculline 电泳(解除 GABA 能抑制)看波长调谐是否变宽。皮质功能与行为的联系来自两条线:正电子发射断层扫描(PET)测量猴做颜色/亮度/位置辨别任务时局部脑血流的变化;以及永久性双侧 IT 切除、短暂冷却 TE 皮质等干预下猴在辨色、辨灰度、延迟匹配等任务上的成绩比较。文中把当年度内的关键论文以引文旁注的形式给出办法与结论,摘要式综述由此展开。
主要结果
-
S 锥信号经第三通道(K 层通路)入皮质。 小双分层节细胞接收 S 锥兴奋输入并投射到 LGN 层间 K 层;K 层神经元投射至 V1 第 2/3 层 CO 斑块;在层间细胞与主层分得很开的狨猴上,blue-on(Y/B)色拮抗细胞大体集中在层间带。多条证据线汇聚表明:对 S 锥兴奋敏感的色拮抗信号至少部分经由"K 层→CO 斑块"直达 V1。
-
V1 是锥信号"重新洗牌"的第一站:以线性为主、但权重任意的组合,同时非线性作用已经启动。 Lennie 等(1990)及作者实验室等的新记录显示,V1 多数颜色选择性神经元的响应仍是锥信号的线性总和——但与 LGN 只有限定的组合方式不同,V1 中各锥信号的相对权重细胞之间各不相同,即两类 LGN 色拮抗通道(R/G、Y/B)的输出以各种权重线性组合,形成朝向颜色空间各种方向的调谐(图 1 第 3 阶段);De Valois 等的独特色模型与此一致,只是 V1 的组合并不限于其模型预测的那几种。同时,最近实验确认了一小部分 V1 神经元的等响应轮廓在色度图上弯曲、对特定色调或饱和度有选择(第 4 阶段开始);Sato 等(1994)发现 bicuculline 使 CO 斑块神经元的波长调谐显著变宽,说明尖锐的波长调谐来自皮质内抑制机制的修剪。
-
V2 与 V3 分道:非线性调谐在 V2 集中加剧,V3 仍保持线性。 用同样方法测得,V2 中不符合线性组合模型的神经元比例比 V1 更高,且它们的调谐显著更窄——窄谱色调与饱和度选择性在 V2 继续形成;V3 神经元的反应则与线性模型一致,但相当多细胞对等亮度光栅漂移有方向性反应,提示 V3 中颜色与运动加工有显著相互作用。
-
V4 关联色恒常而非细辨别。 V4 有许多颜色选择性神经元,但损伤研究(Wild et al. 1985; Walsh et al. 1993 等)显示 V4 损伤只造成非常轻微的颜色辨别缺陷,却严重破坏色恒常;V4 神经元的响应对应色恒常后的知觉表面色,而非表面反射光的波长成分(Zeki 1983)。机制上,V4 细胞拥有大的抑制性感受野周边(surround),且当中心与周边被同一光谱成分的光刺激时抑制最有效,这一结构被认为在"折算照明"(discounting the effect of illumination)中起关键作用;照明信息如何被表征尚不清楚——图 1 第 5 阶段只是假想示意,并不主张照明被显式编码。
-
下颞叶皮质(尤其 TE)是颜色辨别的必经要塞,并可能是颜色范畴化之地。 IT 有大量对色调与饱和度选择、等响应轮廓明显弯曲(即非线性输入)的神经元;在延迟匹配样本任务,部分 IT 神经元在颜色保持于记忆期间维持持续发放;PET 显示猴做颜色辨别任务时 IT 被特异性激活(强于亮度或位置辨别任务)。损伤证据在 1997–1998 年集中补齐:Horel(1994)用冷失活 TE 严重破坏(哪怕是很容易的)颜色辨别任务,虽然缺陷是暂时的;Heywood 等(1995)双侧 IT 切除后,猴在色调辨别(8 色中找异色)与色调觉察(8 个灰块中找彩色块)任务上严重受损,而术前反而更难的灰度辨别只轻度受损;Buckley 等(1997)的双重分离最有力——双侧切除 TE 的猴无法再学习"同一绿色与 8 个色调/饱和度不同的刺激作辨别"的任务,鼻周皮质切除则相反(破坏物体记忆任务而不破坏颜色辨别)。此外,IT 存在响应色域与人类 11 个基本颜色名(red、orange、yellow、green、blue、purple、pink、brown、white、black、gray)的类别区对应良好的神经元,基本颜色名的类别范围在不同人种乃至人与黑猩猩之间相似,暗示颜色范畴知觉有生物学基础,Dean 曾提议 IT 正是范畴知觉的责任区。
图注解读
图 1 · 皮质颜色加工的五阶段假想图
原文图注:Figure 1 Hypothetical scheme of color processing at different stages along the visual pathway. Five different stages are shown. The first stage consists of three types of cone photoreceptors (S, M and L). In the second stage, there are two classes of color-opponent cells (Y/B and R/G). The outputs of color-opponent cells are linearly combined in the primary visual cortex (V1) to form neurons tuned to various directions in color space at the third stage. Nonlinear interactions of the signals from these neurons occur at the fourth stage, which involves V1 and V2……(后文说明第 5 阶段在 V4 折算照明、产生响应平行于色恒常后知觉表面色的神经元,皮质各加工阶段以不同灰度标示。)
这张单图就是全文的骨架,纵向是加工阶段、每阶段左侧标注参与 structures(锥细胞、节细胞、LGN、V1/V2、V4、IT 皮质)与关键操作(线性组合、非线性作用、照明折算)。读法是从下往上一级一级对照正文:第 1 阶段三种锥、第 2 阶段 LGN 两类色拮抗通道(R/G 与 Y/B)、第 3 阶段 V1 线性重组合出五花八门的色空间方向调谐、第 4 阶段 V1/V2 内非线性作用造出窄谱色调/饱和度选择、第 5 阶段 V4 折掉照明影响使响应与知觉表面色对应。图中并未画 TE,但正文把 IT 作为通路终点衔接在第 5 阶段之后。需要强调的是作者自己的声明:这是"假想方案"(hypothetical scheme),第 5 阶段"照明信息输入 V4"是一种示意,并不意味着照明被显式表征;图中不同灰度只是提示皮质各阶段加工性质不同。这张图支撑主要结果第 2–4 条的整体框架,也是本文作为综述唯一的一张"论点图"。
讨论
作者的结论是克制的两句话:经过许多研究者的努力,现在已能从视网膜一路追踪颜色加工到高级皮质区,但每一阶段加工的细节与各阶段之间的相互作用仍需进一步研究。具体而言,视网膜回路内锥信号相互作用的机制近年已获细致研究,而"非线性相互作用如何在早期皮质区发生"是下一个前沿;高级皮质方向上,色恒常与颜色范畴化被点名为两大未解问题。就范畴化,作者给出的工作假设是:IT 未必负责色彩选择性本身的形成(非线性加工在 V1 已起步、在 V2 加剧,色调选择不需要到 IT 才出现),更可能 IT 存有对应颜色范畴的模板(templates),并参与把刺激颜色与模板匹配、判定其类别归属的过程——这一思路与其关于 IT 参与视觉刺激原型(prototypes)形成的既有观点一致,也与 IT 神经元色域和人类基本色名类别区的对应关系、以及 IT 损伤选择性破坏辨色而不显著破坏辨灰度(灰不是范畴知觉)的双分离相呼应。对 V4 的讨论则相当清醒地摆出张力:即便人类临床证据把色知觉中枢指向腹内侧纹外皮质(皮质性色盲 achromatopsia),猴 V4 损伤的行为后果却是"辨色几乎无恙、色恒常崩塌",于是在这张五阶段蓝图里,V4 的角色被明确改写为"知觉的常数化平台",颜色精细辨别的重担则移交给了通路尽头的 TE。
一句话总结
该综述将皮层颜色加工划分为阶段性检验节点:V1 重构视锥输入权重、V2 收窄调谐带宽、V4 整合背景照明以实现恒常性、TE 区支持颜色范畴化判别。文章将 V4 重新定位为实现色恒常的计算平台,并将精细辨别功能延伸至下颞叶。所运用的“等响应轮廓曲率判定线性与非线性计算”的方法学判据,为解析神经调谐的转换过程提供了清晰的分析框架。