该篇发表于 Annual Review of Neuroscience 的经典综述由 Buonomano 与 Merzenich 撰写,旨在系统整合突触可塑性(长时程增强/长时程抑制)与大脑皮质地图可塑性(cortical map plasticity)两大学术领域。文章系统评估了“突触可塑性是大脑皮质功能表征重构的细胞基础”这一核心假说的实验与理论模型证据,明确梳理了当前因果链条中的关键缺口,为理解微观突触修饰如何驱动宏观皮层拓扑表征改变提供了规范的论证框架。
研究背景
既往神经生物学观点多认为成年大脑感觉皮质的表征结构相对恒定,但近二十年的研究证实:皮质功能拓扑地图是高度动态的系统,终生受到具有行为重要性的经验修饰。跨物种与感觉模态的电生理映射表明,周围神经输入剥夺、中枢损伤以及主动行为训练均能驱动皮层局部功能连接与感受野特性的重塑。皮层表现出依据输入通道的“使用频率”优先分配表征面积的自适应特征,而这种表征的代偿性重塑被认为是知觉学习与运动技能习得的重要神经基础。本文的核心理论模型提出:皮质宏观表征重塑主要源于兴奋性突触遵循赫布学习规则(Hebbian learning rule,即突触前后关联激活诱导突触强化)的长时程增强(LTP)。在突触层面,赫布规则表现为时空吻合的突触传递强化;在皮质地图层面,由于外周邻近感受器接受在时间上高度相关的物理刺激,赫布机制能够自然地构建出平滑连续的地形表征拓扑。
然而,要严格证明突触可塑性对皮质地图重构具备“必要性与充分性”,面临与验证海马 LTP 介导记忆类似的方法学挑战。作者指出,相较于复杂的认知记忆行为,成年初级感觉皮层由于离体突触反应(EPSP 记录)与宏观表征地图(微电极空间测绘)均具备清晰的定量测量指标,更适合用于解析可塑性的因果关联。综述将分析范围聚焦于成年初级感觉皮质,从微观突触、单细胞条件化到宏观皮质地图三个层次组织现有证据,重点梳理联结各层次的关键实验,并明确指出细胞机制层面的未知空白。
研究思路
作者构建了自微观至宏观的三级证据分析框架:第一级为突触可塑性(synaptic plasticity),主要在急性脑片上利用细胞内记录评估不同刺激模式下兴奋性突触后电位(EPSP)的幅值变化;第二级为细胞级条件化(cellular conditioning),在清醒或麻醉动物在体环境下,通过短时间的刺激配对协议直接诱导单个皮层神经元选择性反应或感受野的重塑;第三级为表征可塑性(representational plasticity),在经历外周去传入、中枢病灶或数周主动行为训练后,测绘大尺度皮层功能地图的拓扑变迁。该逻辑链条提出:若赫布机制在脑片突触、在体单细胞以及大尺度地图三级中均保持一致,则构成了突触机制支撑地图重塑的系统证据。为严谨检验二者的因果对应,作者提出了四项基准判据(详见主要结果第 5 条),并依据这些判据系统评估了分子药理干预、基因敲除模型以及神经网络计算模拟的有效性。
方法
作为综述文章,本文系统评述了三类实验技术方法。突触生理学层面:主要采用急性脑片细胞内电位记录技术,例如在大鼠初级听皮层 L-II/III 锥体神经元上同时记录水平连接通路(L-II/III 内部)与垂直投射通路(深层白质/L-VI),采用间隔配对协议(测试脉冲与突触后去极化电流联合施加)诱导输入特异的联合型 LTP,并评述了强直电刺激与 theta 爆发刺激(TBS)等诱导方式。细胞条件化层面:采用在体细胞外电位记录配合离子微电泳给药或细胞内去极化,将特定特征刺激(如光条朝向或纯音音频)与动作电位放电进行短时程配对训练。宏观表征测绘层面:利用高密度微电极网格阵列,测绘猕猴 3b 区手部表征、大鼠桶状皮层单晶须表征、猫/猴 V1 区朝向地图以及灵长类 A1 区频率拓扑图,辅以人类受试的脑磁图(MEG)空间定位;涉及的行为范式包含接触旋转刻纹盘的触觉辨别任务、振动频率辨别、多指协同刺激、音调频率辨别与经典条件反射等。分子遗传与药理学层面:系统性给予竞争性 NMDA 受体拮抗剂 CPP,以及分析 α-CaMKII 基因敲除小鼠模型。计算神经科学层面:涵盖基于赫布规则与被动突触衰减、突触后权重归一化算法,以及引入滑动修正阈值的 BCM 双向突触可塑性模型。
主要结果
-
周围神经输入剥夺后成年感觉皮质呈现分阶段的拓扑重构(图 2)。在猕猴正中神经切断模型中,3b 区手部表征失去来自 D1–D3 掌侧皮肤的传入。切断后即刻,失支配区并未形成永久沉默的瘢痕,而是迅速表现出对手背皮肤、掌心以及 D3/D4 交界区皮肤的放电响应,该即刻反应源于原先受局部抑制回路掩盖的侧向投射发生“去掩蔽”(unmasking)。在随后数周内,邻近完好皮肤的表征逐渐向失支配皮层扩张,并重建出具有空间拓扑秩序与正常潜伏期的高分辨率功能表征。截肢实验显示皮层扩张通常具有局部性(边界向内延伸约 500–700 µm);但在更大范围的背根神经节切断模型(C2–T4 去传入)中,超过 1 cm² 的皮质区域可在数月后完全被面部与下颌的触觉输入所替代(Pons 等 1991),人类截肢者的 MEG 记录同样证实了大尺度跨区功能代偿的存在。
-
主动行为训练在未破坏外周传入的条件下依据使用频率重塑皮质地图。Jenkins 等 (1990) 训练猕猴利用特定指尖接触旋转刻纹盘完成触觉辨别,数月训练后受训指尖在 3b 区的表征面积成倍增加,同时单个神经元的平均感受野面积显著缩小,表明皮层表征精度与面积分配遵从使用依赖的竞争机制。Recanzone 等 (1992) 在固定位点的振动频率辨别任务中观察到不同模式:受训皮肤位点的感受野面积显著扩大,且受训皮层神经元群体的放电时间相干性明显提高。Wang 等 (1995) 采用横跨 D2–D4 指节的机械棒实施同步触觉刺激,训练后约 40% 的皮层神经元演化为跨越两至三个手指的多指协同感受野(图 3),且受训脑区神经元表现出同步化放电潜伏期。在听觉皮层中,音调频率辨别训练使受训频率在 A1 区的代表面积显著扩展,且面积增幅与动物的行为辨别阈值呈正相关。经典条件反射能够促使最佳特征频率向强化刺激频段发生可逆性偏移。在人类受试者中,盲文熟练使用者的阅读食指表征区(Pascual-Leone & Torres 1993)及弦乐演奏者的左手手指表征区(Elbert 等 1995)均较对照人群显著扩大。
-
突触水平证实了联合型 LTP、双向 LTD 及突触时序调节特性(图 1)。脑片实验证实,刺激配对协议可在特定输入通路诱发持续的 EPSP 增幅(达对照通路的约 150%),且该诱导依赖于 NMDA 受体介导的重合检测机制,具备联合性与输入特异性。在突触效能衰减方面,低频电刺激(1 Hz、900 脉冲)诱发的同突触 LTD 依赖于 NMDA 受体;Artola & Singer (1990) 通过调节 bicuculline 浓度控制突触后去极化幅度,发现钙离子内流处于低水平时表现为 LTD,超出临界阈值时转化为 LTP,支持突触修正阈值假说;Markram 等 (1997) 揭示了动作电位的精确时序依赖可塑性(突触前放电早于突触后 10 ms 诱发 LTP,滞后 10 ms 诱发 LTD)。此外,皮层微回路中的抑制性突触亦表现出可塑性,高频强直刺激可特异性增强 L-V 锥体神经元的 IPSP 幅值。
-
皮层内水平侧向连接是介导感受野重组的早期位点。在多指协同感受野重塑实验中(Wang 等 1995),皮层 3b 区涌现多指感受野的同时,丘脑腹后外侧核记录未发现任何多指感受野表征;在视网膜局灶性损伤两个月后,外侧膝状体对应盲区依然处于电静息状态,而初级视皮层相应位点已通过侧向连接建立起新的感受野。解剖示踪显示,去传入皮层周边的神经元轴突水平侧支呈现向受损区的代偿性出芽(Darian-Smith & Gilbert 1994)。在啮齿类桶状皮层晶须配对实验中,配对刺激 24 小时后 L-IV 感受野尚未改变,而上/下颗粒层已形成双晶须协同感受野(Diamond 等 1994);早期的反应潜伏期符合皮质内水平传导延迟,经历较长周期(约 30 天)后才出现短于 10 ms 的短潜伏期反应,提示丘脑皮质投射的可塑性改变可能晚于皮层内连接(Armstrong-James 等 1994)。
-
确立因果关系的四项检验判据尚未完全闭环。作者系统提出了评估突触可塑性介导地图重构的四项基准判据:① 突触可塑性应在地图发生重组的动物对应神经通路上被实测检出;② 阻断突触可塑性的干预手段应特异性抑制地图重组;③ 在体内诱导突触可塑性应充分诱发对应的感受野及地图改变;④ 基于突触可塑性规则构建的计算模型应能定量重现地图重构数据。现有研究在判据 ② 上取得部分进展:给予 NMDA 受体拮抗剂 CPP 会显著抑制去神经猕猴皮层地图的代偿重组(Garraghty & Muja 1996),α-CaMKII 基因敲除小鼠在拔须后不表现出表征面积扩张(Glaszewski 等 1996);但药物实验在电生理制图时拮抗剂依然在场,难以排除药物对基础神经元兴奋性的非特异性抑制,因果闭环仍不充分。在计算模型方面,虽然引入突触权重归一化与被动衰减算法能够定性模拟去传入后的边界扩张,但相关归一化机制在生理突触水平仍缺乏直接实验证据,判据 ④ 尚未得到完整验证。
图注解读
图 1 · 大鼠听皮质的联合型 LTP
原文图注:Figure 1 Associative long-term potentiation (LTP) in rat auditory cortex. (A) Intracellular recordings from a L-II/III pyramidal neuron while stimulating horizontal (L-II/III) and vertical (WM/L-VI) pathways. Traces show the postsynaptic response to paired-pulse stimulation (100-ms interpulse interval) before, during, and after the induction of associative LTP. LTP was induced by pairing stimulation of the horizontal pathway with a 250 ms, 1 nA depolarizing postsynaptic pulse. Both pathways were stimulated every 15 s during testing and training. (B) Time course of the amplitude of the first excitatory postsynaptic potential (EPSP) of both pathways. Pairing of the horizontal pathway produced a long-lasting potentiation without changing the EPSP amplitude of the white matter (WM)/L-VI pathway. Slices were from a rat of 5 weeks of age.
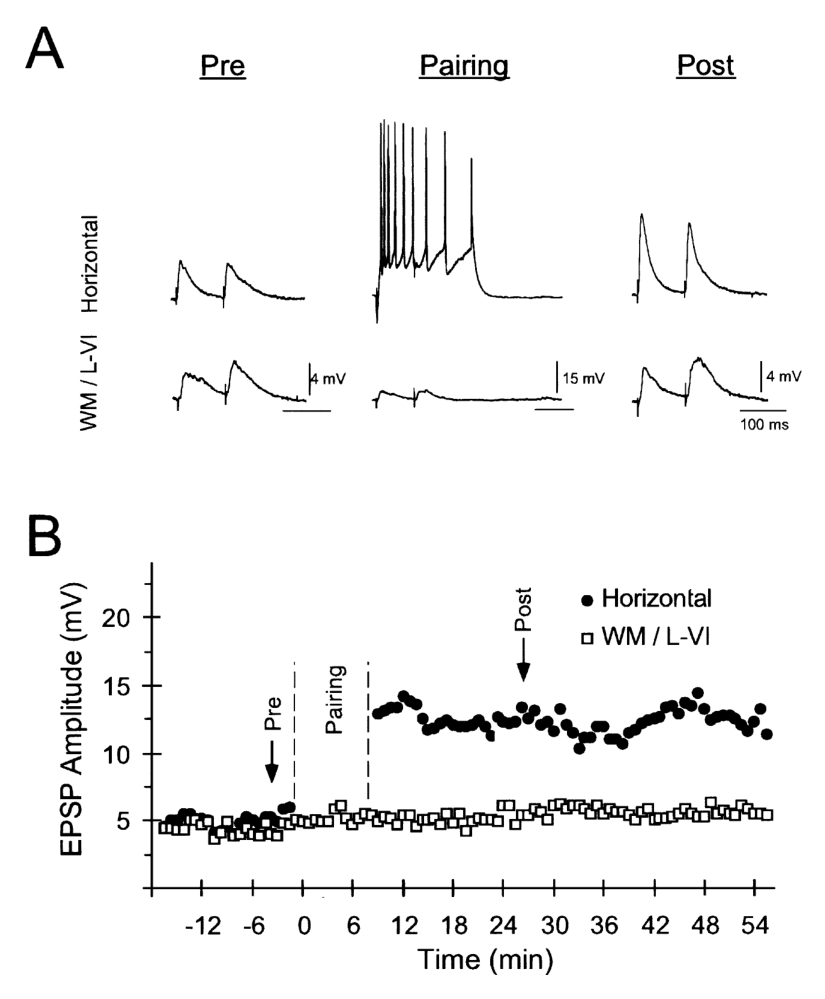
读图说明:(A) 描绘大鼠听皮层 L-II/III 锥体细胞的细胞内电位记录迹线,分别记录水平侧向通路(L-II/III)与垂直上行通路(白质/L-VI)在双脉冲刺激下的 EPSP 波形演变。通过将水平通路电刺激与突触后去极化电流脉冲进行配对训练诱导联合型 LTP;(B) 展示两条刺激通路首个 EPSP 振幅的时间进程曲线。在经过持续配对训练后,水平通路 EPSP 振幅稳定提升至基线的约 150%,而未参与配对的垂直通路突触反应保持恒定。该数据直观证明了皮层突触强化具有严格的联合依赖性与输入通路特异性,为主要结果第 3 条提供了细胞生理学证据。
图 2 · 正中神经切断后皮质地图的重构进程
原文图注:Figure 2 Progression of the reorganization of the cortical map in response to median nerve transection. Somatotopic representation of the hand in area 3b from a single monkey before (A), immediately after (B), and 22 days after (C ) transection of the median nerve. Numbers 1–5 represent the digits; the letters p, m, and d represent the proximal, middle, and distal portion of each finger. Hatched areas represent the dorsal surface of the hand, and black represents silent areas. Transection of the median nerve deprives the cortex of input from the glabrous surface of digits D1–D2. Immediately after transection, much of the cortex remained silent, while some areas exhibited responses to the dorsal surface of D1–D3. A few weeks after transection, very little cortex remained unresponsive, and novel responses to D3 and the dorsal surface of D1–D3 emerged. [Modified from Merzenich et al (1983b).]
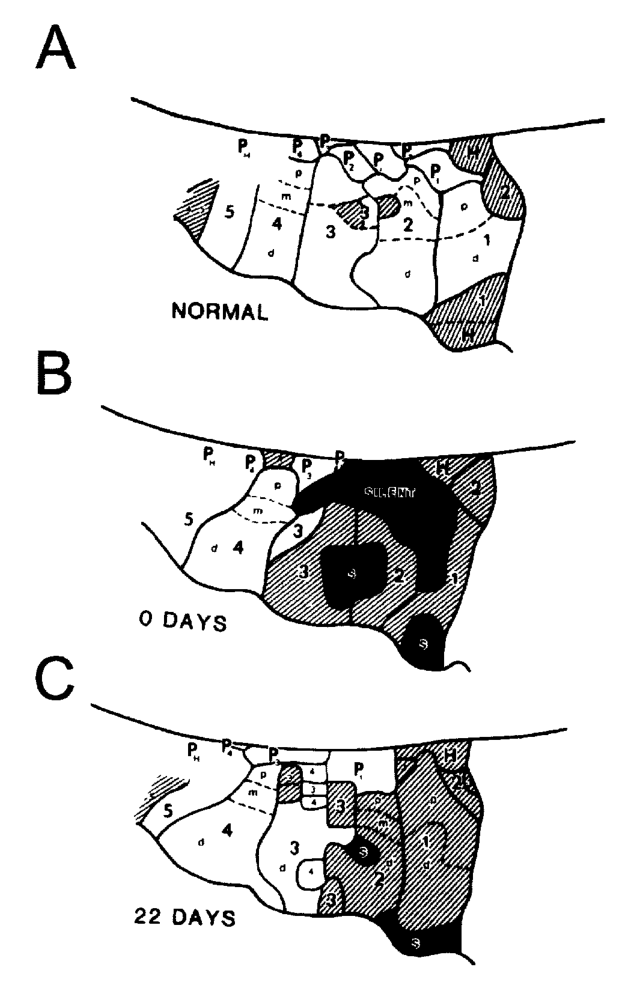
读图说明:该图展示单只猕猴 3b 区手部躯体感觉地图随去传入时间的演进:(A) 为切除正中神经前的生理基线;(B) 为切除后即刻;(C) 为术后第 22 天。数字 1–5 代表不同手指,字母 p、m、d 分别标识近端、中端与远端指节,斜线阴影区表示手背皮肤表征,黑色填充表示无放电反应的静息区。对比显示:手术切除后即刻,大面积皮层处于功能沉默状态,伴有少量手背输入的去掩蔽响应;在经历数周重组后,沉默区基本消除,由 D3 指节及手背侧皮肤输入构成的全新感受野占据了原失支配区域。该图支撑主要结果第 1 条中关于地图重构阶段性时序的论证。
图 3 · 训练诱导的多指感受野
原文图注:Figure 3 Training-dependent cortical map reorganization. Map and receptive fields of the hand representation of area 3b from a monkey that underwent behavioral training. Training involved extensive simultaneous stimulation across the proximal or distal portions of digits D2–D4. (A) The map shows that in contrast to normal maps, there was a significant portion of the map that exhibited multiple digit receptive fields, which were specific to either the proximal (horizontal striping) or distal (vertical striping) phalanges. (B) The receptive fields of the map shown in A, sorted according to the four observed classes: distal multiple-digit, proximal multiple-digit, dorsum, and single-digit receptive fields. [Modified from Wang et al (1995).]
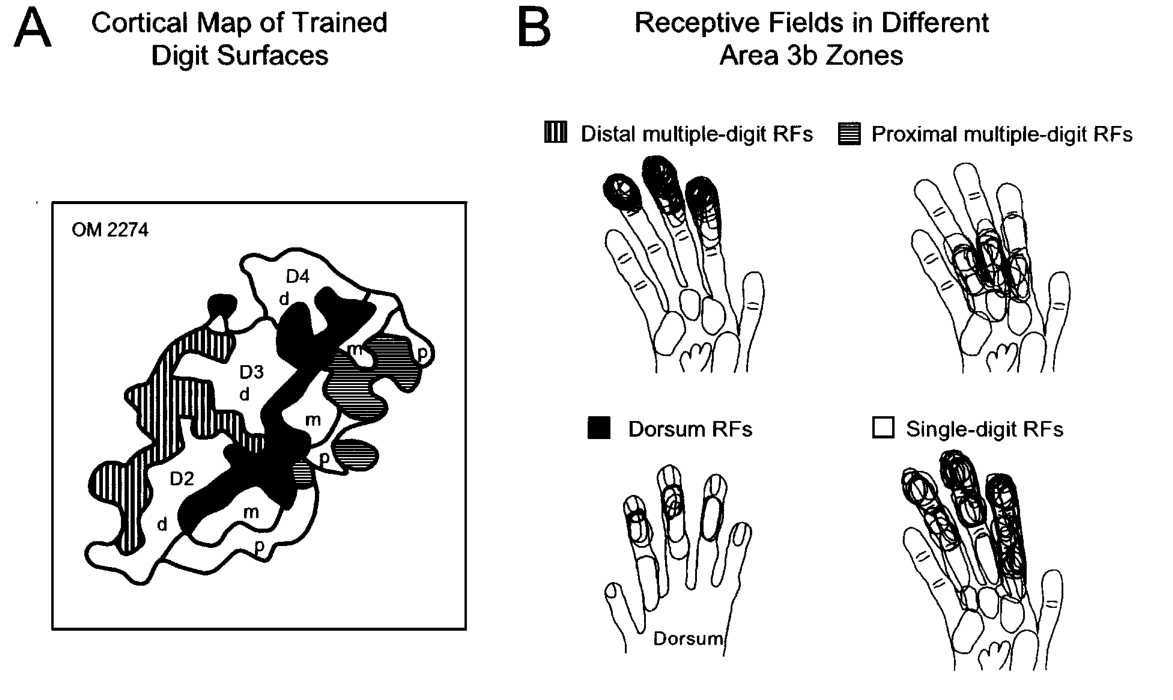
读图说明:该图展示协同触觉训练对猕猴 3b 区手部拓扑图的重塑效应:(A) 为行为训练后的大尺度皮层地图,图中显著区域呈现出非常规的多指协同感受野,且空间分布清晰对应于近端指节(水平条纹区)与远端指节(垂直条纹区);(B) 将记录到的感受野细分为四类(远端多指、近端多指、手背侧及常规单指)。数据表明,跨指节同步机械刺激强化了外周输入的时间相关性,促使约 40% 的神经记录位点演化出跨指表征,且全区放电潜伏期呈现同步化。该图直接支撑主要结果第 2 条。
讨论
作者在讨论中倾向于支持突触可塑性介导皮层地图重构的总体假说:地图重构的早期阶段主要依赖于既有侧向连接的局部去抑制,随后的长时相表征扩张则由依赖神经活动的突触可塑性所驱动;新感受野的构建首先发生在大脑皮层内部的水平网络,随后逆向波及皮层下中继核团。作者同时指出了因果链条中的若干局限:所提出的四项基准判据目前均未获得完全满足;在分子药理学方面,NMDA 受体阻滞剂实验在电生理制图期间维持给药,无法排除对皮质急性反应性的非特异性抑制;在基因修饰小鼠研究中,仍需在相关突触通路直接验证 LTP 缺陷与感受野重组抑制的对应性;在理论计算方面,关于突触权重归一化、突触间被动衰减以及同突触与异突触 LTD 的协同调控规则,目前仍缺乏充分的直接微观实验证据。此外,抑制性中间神经元微回路的可塑性演化亦需深入探讨。这些未解决的方法学与理论缺口,明确界定了将离体突触可塑性机制直接外推为大尺度皮层地图重塑的证据边界。
一句话总结
本综述系统梳理了从微观突触强化到宏观感觉皮质地图重构的多级实验证据,提出了评估二者因果关联的四项基准判据,并阐明了皮层内水平侧向连接在表征可塑性中的关键作用。文章指出了当前证据链在分子干预特异性及计算规则验证上的局限,为感觉经验依赖性皮质可塑性研究构建了系统性的理论与方法学框架。