这是日本冈崎国立生理学研究所 Watanabe、Miki、Kakigi 团队的一篇综述,总结了他们用脑磁图(MEG)与脑电(EEG)同步记录研究人类面孔知觉的系列工作,重点放在两个问题上:面孔倒置效应的时间动态,以及嘴部与眼部运动的皮层加工。它的价值在于示范了一种很干净的记录策略——利用 MEG 对切向偶极子、EEG 对径向偶极子的互补敏感性,把同时激活的两个皮层来源拆开来讲。
研究背景
面孔知觉是人类日常生活中最重要的知觉能力之一。临床上的面孔失认症(prosopagnosia)通常由双侧半球损伤引起,单侧右半球损伤也可致病;在正常被试中,头皮 EEG、皮层表面与颅内记录以及 MEG 都对面孔加工的神经基础做过刻画。面孔特异性神经活动大致出现在刺激后约 170–200 ms(如 N170/M170),神经成像一致报告下颞区与外侧颞区同时参与中央呈现的面孔加工。但已有研究有两个明显的缺口:其一,多数 MEG/EEG 研究采用中央呈现,枕区视觉皮层的活动会与颞下皮层(IT)、外侧颞皮层(LT)的活动混在一起,两半球的活动也可能互相干扰,使波形复杂难解;其二,关于倒置效应(face inversion effect,即识别倒置面孔比正立面孔更慢更差)究竟是"换了脑区加工"还是"同一脑区换了一种时间进程",电生理证据尚不完整。在运动知觉一侧,神经成像显示颞上沟(STS)、颞中回(MTG)以及 MT/V5 都参与加工他人的动作,fMRI 发现 MT/V5 对"眼睛运动"有超出一般运动的反应,于是有推测认为 MT/V5 内可能存在对面孔部件运动特化的区域,但 MEG 层面的时间和空间证据还很少。
研究思路
作者团队围绕面孔知觉做了七条线的工作:静态面孔知觉、眼睛与整脸的知觉差异、倒置效应、注视方向效应、眼部运动知觉、嘴部运动知觉、以及与元音相关的视听交互。本文只浓缩其中三块:倒置效应(对应系列研究之 3)、眼部与嘴部运动知觉(对应 5 与 6)。两个实验共用一条方法学主线:MEG 与 EEG 同步记录,并预设两条解读规则——若 MEG 上出现清晰的相位反转(phase reversal),提示传感器正下方存在切向取向的发生源(在 IT,MEG 信号大而颞部 EEG 可忽略);若刺激对侧颞部 EEG 电极出现清晰响应,则提示 LT 存在径向取向的发生源(EEG 信号大而 MEG 可忽略)。半野呈现则保证两半球活动不混叠,便于比较半球差异。
运动实验的设计更为讲究:作者用似动(apparent motion,即两幅静态图快速替换而被知觉为真实运动)制造"运动起始"事件,并在试次之间插入与主刺激总亮度相等的填充刺激,使 S1 起始反应被最小化;又因为 S1、S2 之间始终有一张面孔在场,面孔起始诱发的梭状回活动也被压低,从而把"对运动本身"的皮层响应尽量单独分离出来。
方法
第一个实验(倒置效应)测了 10 名右利手正常志愿者(4 女 6 男,26–42 岁,平均 32.8 岁)。灰度刺激改编自 Allison 等人的材料,共四类:正立面孔、倒置面孔、蝴蝶(作为对照"物体")、打乱的面孔图像(作为靶刺激,被试默数其出现次数并在每轮结束后报告;靶占 14.3%)。每类非靶有 60 张不同图片,每轮含 60 个靶;刺激伪随机呈现在指定的左或右半野,每次 250 ms,刺激间隔随机 1800–2300 ms,一次实验收集 420 个刺激的响应。记录用 37 通道生物磁强计(Magnes,BTi),探头置于枕颞交界上方,且放在与受刺激半野对侧的半球(左右半球分别独立测量、顺序平衡);EEG 电极按国际 10–20 系统放在 Cz、T5′、T6′(T5/T6 下方 2 cm),下巴置参考电极。同步记录,带通 0.1–50 Hz,采样 1042 Hz,分析窗为刺激后 400 ms、基线 100 ms。统计用重复测量单因素 ANOVA 加 Fisher PLSD 事后检验,配对 t 检验比较视野差异,P<0.05 为显著。
第二个实验(嘴与眼运动)测了 17 名右利手志愿者(4 女 13 男,24–43 岁,平均 32.2 岁)。刺激为彩色面孔图像叠在由三圈黑白灰同心环组成的放射状背景上,共四种图像(闭嘴脸、张嘴脸、眼睛偏转脸、背景环被改色的脸),组合出五种条件:M-OP(嘴张开)、M-CL(嘴闭合)、EYES(眼睛偏转)、RADIAL(面孔不变而背景向内运动的一般运动对照)、CONTROL(同一幅图连放两次,用以确认响应来自运动而非刺激起始)。S1 与 S2 各呈现 800 ms、中间无间隔,各条件间插入随机 1000–1200 ms 的填充图,相邻试次间隔 2600–2800 ms。分析窗 1500 ms,分为 S1 后 800 ms 与 S2 后 700 ms 两段,各配 300 ms 前基线;成分幅度取 37 通道均方根(RMS,单位 fT),峰潜伏期取最大 RMS 处。统计用 ANOVA 加 Fisher PLSD 或配对 t 检验(P<0.05)。发生源定位按 Dumoulin 等的解剖学标志核验是否落在人 MT/V5。
主要结果
- 半野呈现面孔与物体时,MEG 上可辨认出 1M、2M、3M 三个成分(约在刺激后 140–200 ms),EEG 上对应两个颞部峰:第一个正峰约与 1M 同时,第二个负峰 E(T6′) 与 3M 潜伏期几乎相同,而 2M 处没有对应的 EEG 峰。结合两模态的解读规则,可推定 2M 由颞下皮层(IT,集中于梭状回)的切向源产生,3M 主要由外侧颞皮层(LT,近 STS)的径向源产生,两者同时但相互独立地激活(图 2–4)。
- 半球不对称明显:右半球的 IT 与 LT 在所有被试中都激活,左半球的激活比例明显更低(摘要称约半数被试;正文 MEG 结果中有 2/10 人左半球未见 2M 与 3M);受试者 1 的 T5′ 潜伏期比对侧 T6′ 长约 15–20 ms(LHF 时 E(T5′) 比 E(T6′) 显著长约 18–20 ms,P<0.001),被解读为半球间传导时间。运动实验中最强的信号也总是出现在右半球;倒置实验中被试 3 的 E(T6′) 远大于 E(T5′),提示即使在跨半球传导的响应中,右半球"面孔特异"区也占优。
- 倒置效应是"时间性"的而非"部位性"的:倒置与正立面孔的激活区没有显著差异(表 1 中各成分潜伏期对刺激类型均不显著),但倒置使右半球潜伏期延长(如被试 1 右半球的 3M 与 E(T6′) 比正立条件长约 10 ms;群体上倒置面孔在左半野刺激时潜伏期最长、右半野刺激时最短),而左半球对倒置面孔反应反而更快。此外 EEG 对物体的幅度远小于面孔(尤其 LHF 时 E(T5′),P<0.001),但倒置面孔的潜伏期、幅度与源位置都不同于物体,说明倒置面孔并没有被当作普通"物体"来加工。
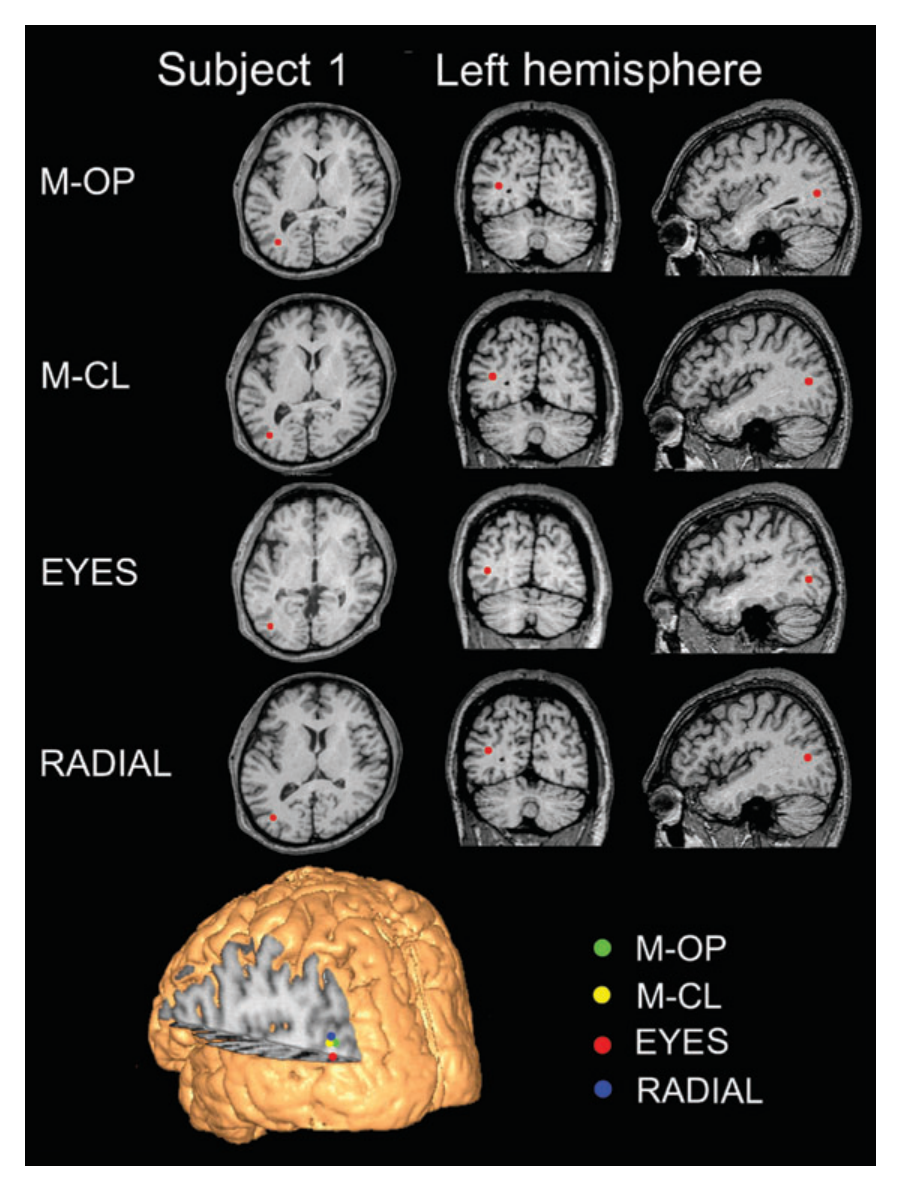
- 运动实验中,S2 运动起始在两半球都诱发出一个大而清晰的 1M 成分(平均峰潜伏期约 160 ms;被试 1 右半球对 M-OP、M-CL、EYES、RADIAL 分别为 154.8、156.7、162.5、148.1 ms),CONTROL 条件在所有被试中均无响应;1M 的源位于枕颞交界的人 MT/V5,按解剖学标志散布在 ITS 后部、ITS 升支(ALITS)与 ITS 后延续(PCITS)三个亚区(右半球各 2、4、3 人,左半球同为 2、4、3 人)。
- 嘴部运动与眼部运动的 1M 在幅度和源位置上均无显著差异,即 MT/V5 对两类面部部件运动的响应方式相似;不过响应参数仍有梯度——RADIAL 的 1M 潜伏期比面部运动条件短约 20 ms(右半球 F=4.35,P<0.05;左半球 F=12.73,事后检验 P<0.01),嘴部运动的幅度小于 EYES 与 RADIAL(左半球均 P<0.01;被试 1 右半球 RMS:M-OP 62.6、M-CL 66.7、EYES 122.0、RADIAL 119.4 fT)。这说明 MT/V5 及其邻近区域具有多重响应特性(图 6–9)。
图注解读
图 1 · 四类刺激与记录布置:半野呈现如何落到传感器上
原文图注:(A). The four categories of visual stimuli: upright faces, inverted faces, objects and scrambled faces. (B). Scheme showing the placement of fixation point and visual stimuli. (C). Placement of the MEG sensor and EEG electrode at T6′ for a right hemisphere study covering temporo-occipital regions. The sensor and EEG electrode at T5′ were placed symmetrically when the left hemisphere was studied (adopted from Watanabe et al.17).
A 部分展示实验一的四种刺激(正立面孔、倒置面孔、蝴蝶、打乱的面孔);B 部分说明注视点与刺激在半野中的相对位置;C 部分示意右半球测量时 MEG 传感器与 T6′ 电极的摆放(覆盖颞枕区),测左半球时在 T5′ 处对称放置。读这张图要抓住两点:刺激只出现在一个半野、探头只覆盖对侧半球,这是后面所有"半球分工"论证的前提。
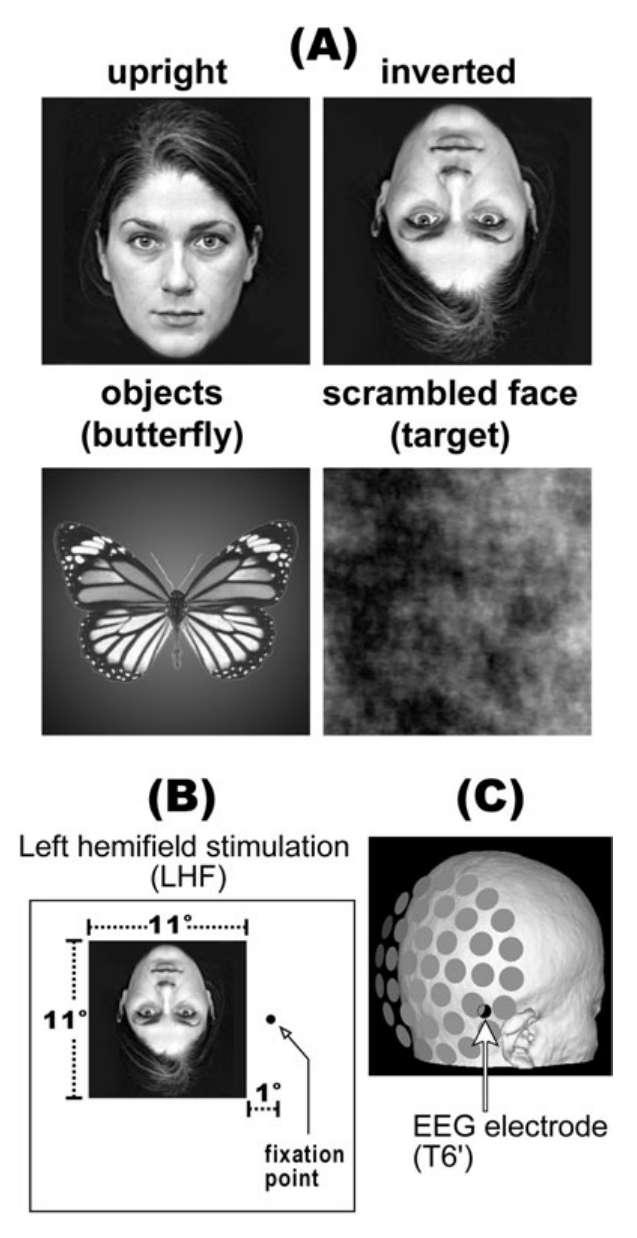
图 2 · 定位逻辑示意:MEG 看切向源,EEG 看径向源
原文图注:Schematic of the relationship between the locations of MEG/EEG recording sensors/electrodes and IT and LT dipole locations and orientations. (A). For a tangentially oriented dipole at IT, the MEG signal is substantial but EEG components (at temporal sites) are negligible. (B). For a radially oriented dipole at LT, MEG signals will be negligible, but the EEG signal will be large in amplitude (adopted from Watanabe et al.17).
这是全篇方法学的钥匙。A 图:IT 内切向取向的偶极子产生可观的 MEG 信号,但在颞部 EEG 位点几乎测不到;B 图:LT 内径向取向的偶极子使 MEG 信号微弱,而颞部 EEG 幅度很大。理解了这张图,就能明白为什么作者敢说"2M 来自 IT、3M 来自 LT"——这不是单个模态的猜测,而是两个模态互相印证的结果。
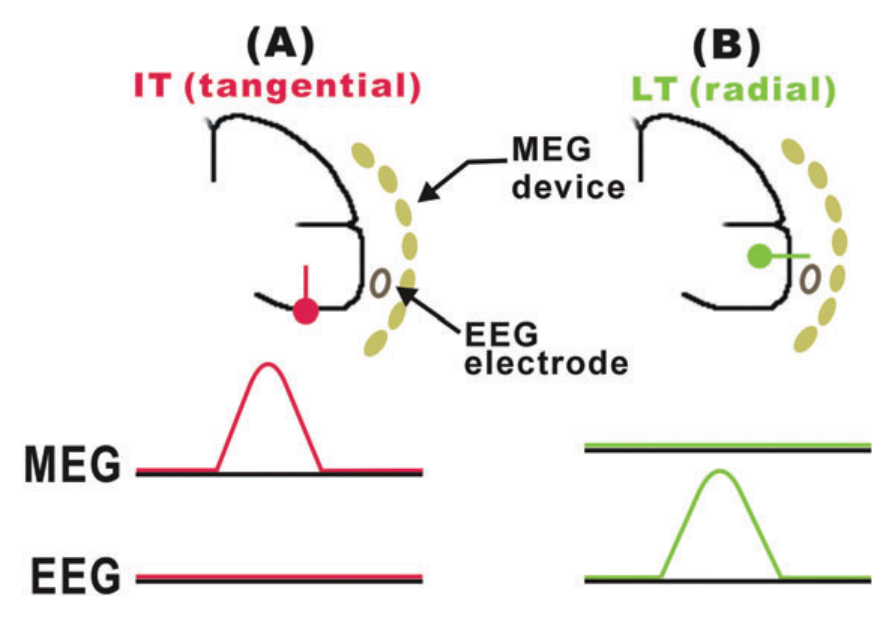
图 3 · 左半野刺激的波形与源:2M 与 3M 各有归属
原文图注:(A). MEG and EEG waveforms to LHF stimulation in Subject 1. MEG components (1M, 2M and 3M) and EEG components (E(T5′) and E(T6′) are clearly seen to upright, inverted, and objects. E(Cz) was not clearly seen with a prolonged latency to all stimuli. The vertical blue and red dotted lines indicate the peak latency of the 2M and 3M, respectively. (B). Anatomical MRI scans depicting the location in the right lateral temporal gyrus in overlapping locations for upright and inverted faces and objects (adopted from Watanabe et al.17).
A 部分给被试 1 在左半野刺激下的 MEG(1M、2M、3M)与 EEG(E(T5′)、E(T6′))波形,蓝、红竖虚线分别标出 2M 与 3M 的峰潜伏期,可以对照读出"2M 无 EEG 对应峰、3M 与 E(T6′) 同步"这一关键关系;B 部分把正立、倒置面孔与物体三种条件的源叠加在同一 MRI 上,位置基本重合。它支撑结论 1 与结论 3:两个源各自独立激活,且倒置并不改变激活部位。
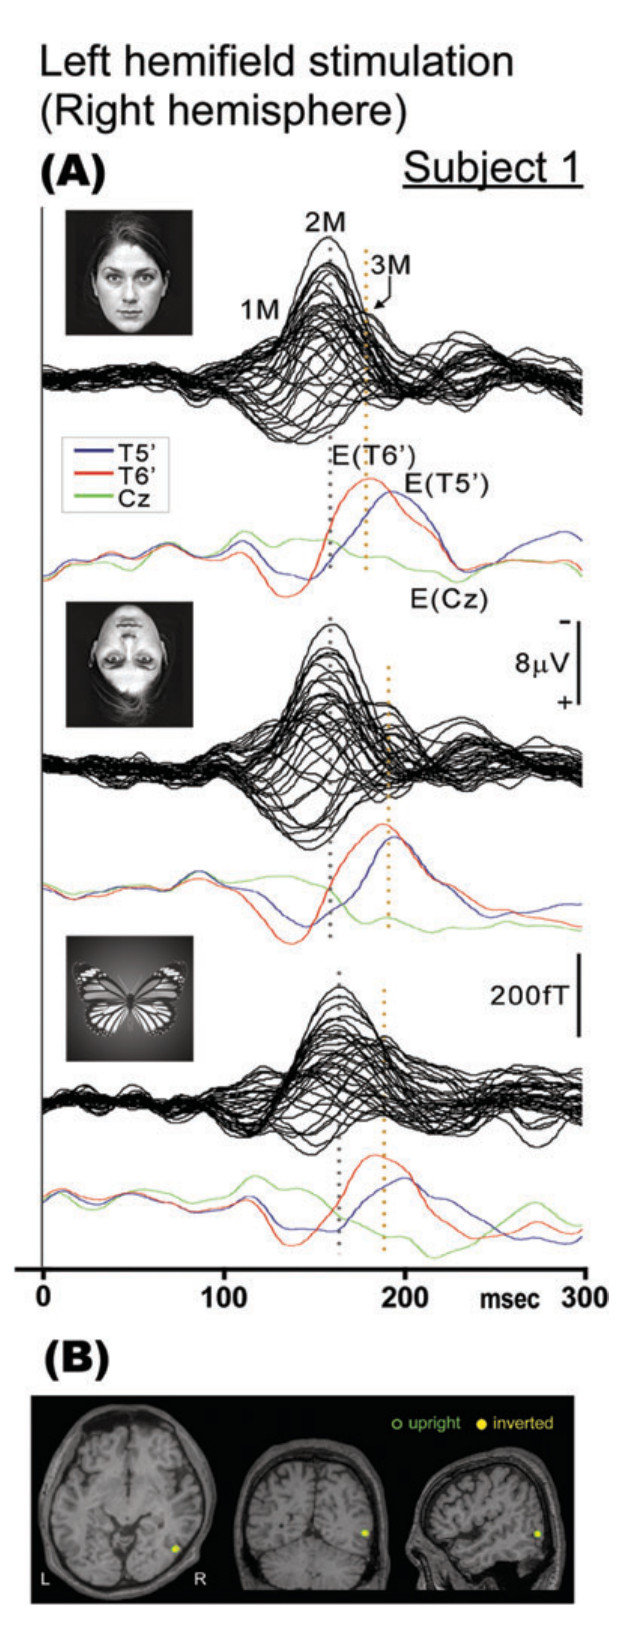
图 4 · 右半野刺激的波形与源:倒置面孔的 2M 落在梭状回附近
原文图注:(A). MEG (1M, 2M, and 3M) and EEG (E(T5′), E(T6′) and E(Cz)) waveforms to RHF stimulation in subject 3. The vertical blue and red dotted lines indicate the peak latency of the 2M and 3M, respectively. (B). Anatomical MRI scans depicting the location of 2M in the left inferior temporal gyrus around fusiform gyrus in overlapping locations for upright and inverted faces and objects. The location to objects was estimated to be at a more posterior site than that to upright and inverted stimuli (adopted from Watanabe et al.17).
与图 3 对称,展示被试 3 在右半野刺激下的波形(A)与 2M 的源定位(B):源位于左侧颞下回、梭状回附近,正立与倒置面孔的源位置重叠,而物体条件的源估计在更靠后的位置。这一"面孔与物体位置分离"的细节支持结论 3 的后半句——倒置面孔未被当作普通物体加工。
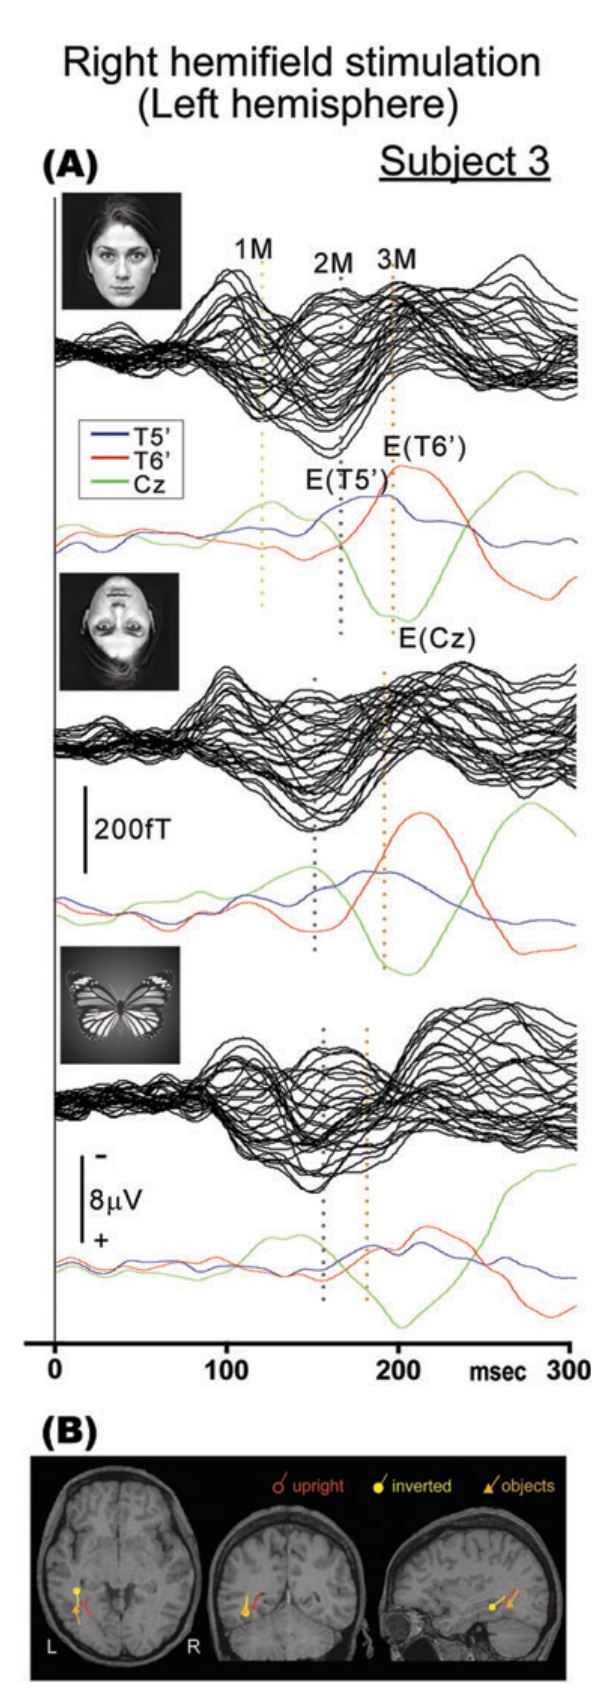
图 5 · 运动实验的五种条件与时间线:如何隔离"运动"本身
原文图注:Examples of five stimulus conditions and their timing during the experiment. Movement was produced by an apparent motion (adopted from Miki et al.20).
图中给出五种条件(M-OP、M-CL、EYES、RADIAL、CONTROL)的示例帧与呈现时序:每试次先 S1 后 S2 各 800 ms、无刺激间隔,运动由两帧之间的似动产生,条件之间插入填充刺激。读图重点在于理解设计的巧妙:S1 与 S2 都含同一张面孔,唯一变化的是嘴、眼或背景,因此响应可归因于"运动"而非图像起始。这是结果 4、5 成立的前提。
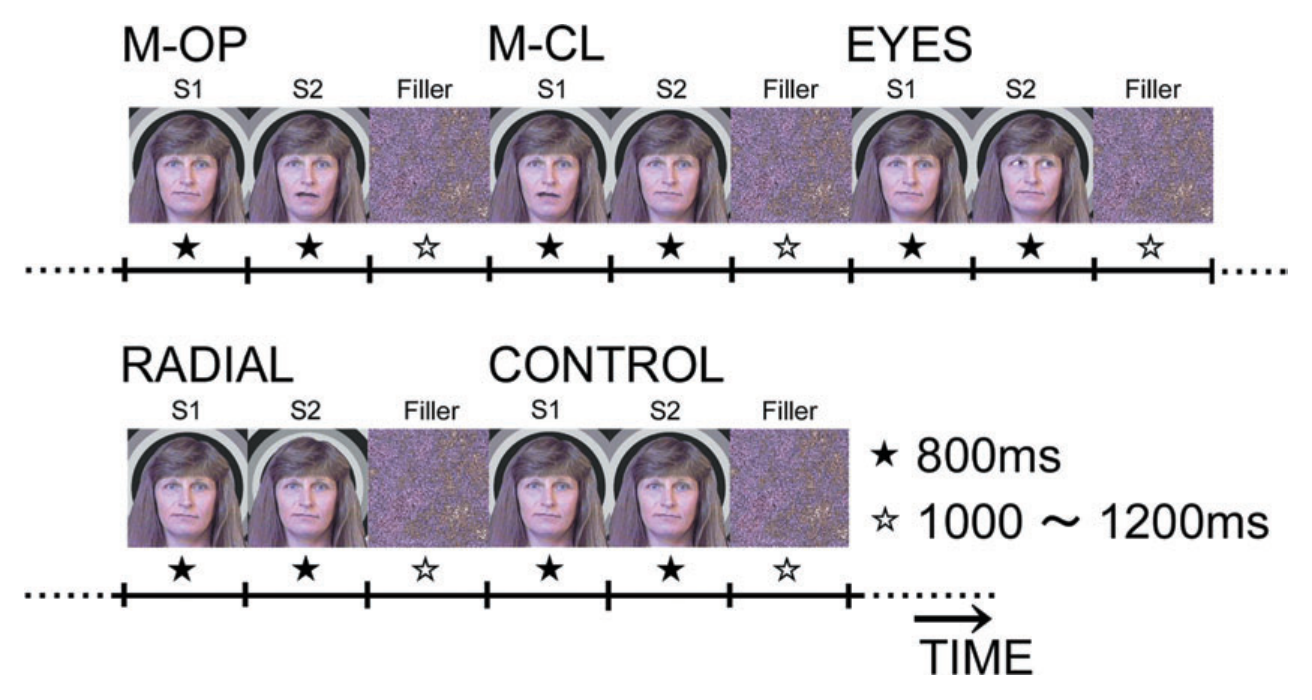
图 6 · 右半球对各种运动的响应:1M 在所有似动条件出现、CONTROL 消失
原文图注:MEG activity shown in a 37 channel superimposed display to all conditions from the right hemisphere in Subject 1. 1M peak latency was 154.8, 156.7, 162.5 and 148.1 ms to M-OP, M-CL, EYES and RADIAL, respectively. Associated maximum RMS values were 62.6, 66.7, 122.0 and 119.4 fT. No response was recorded to CONTROL (adopted from Miki et al.20).
这是 37 通道叠加显示的右半球波形:每个面板一个条件,横轴 0–300 ms,纵标 200 fT。可以逐条件读出 1M 的潜伏期与幅度数字(见括号内),四个似动条件都有清晰的 1M,而 CONTROL 几乎平直——这一正一反两组对照直接支撑结论 4 中"响应来自运动知觉"的部分,也直观显示 EYES/RADIAL 幅度大于嘴部运动。
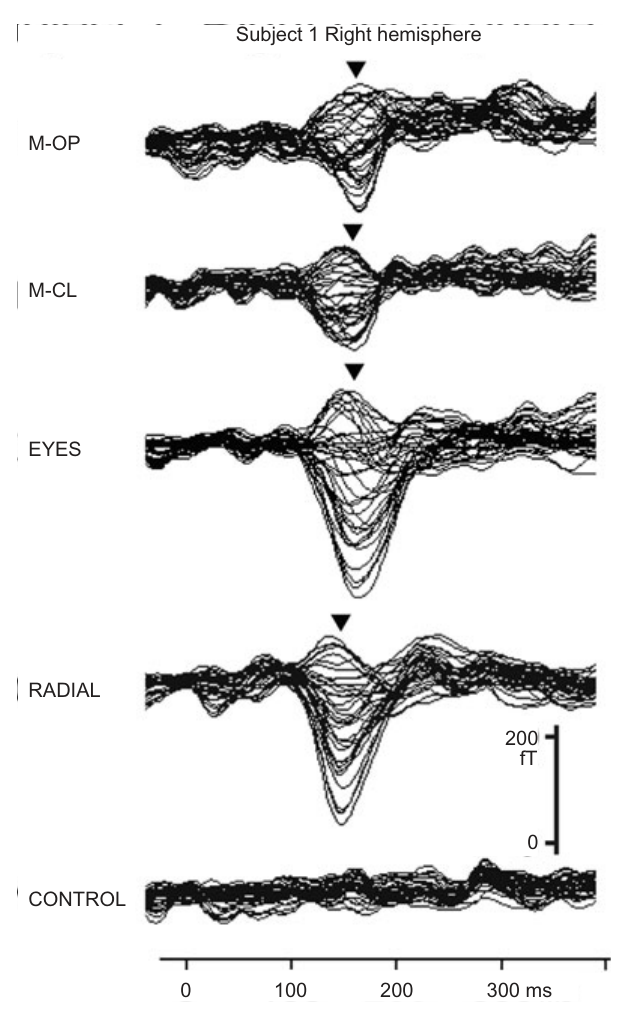
图 7 · 左半球对各种运动的响应:模式与右半球一致
原文图注:MEG activity shown in a 37 channel superimposed display from the left hemisphere in Subject 1. A clear 1M was identified for M-OP, M-CL, EYES, and RADIAL, and was absent for CONTROL. 1M for M-OP and M-CL was relatively longer in latency and smaller in amplitude than EYES and RADIAL, as found in the right hemisphere (adopted from Miki et al.20).
与图 6 镜像的左半球版本。四个似动条件同样出现清晰 1M、CONTROL 无响应,且嘴部运动(M-OP、M-CL)相对 EYES 与 RADIAL 潜伏期更长、幅度更小,与右半球所见一致。这张图支撑结论 4 与 5 中"两半球模式一致、无显著半球间潜伏期差(9 名双半球清晰被试的配对检验)"的判断。
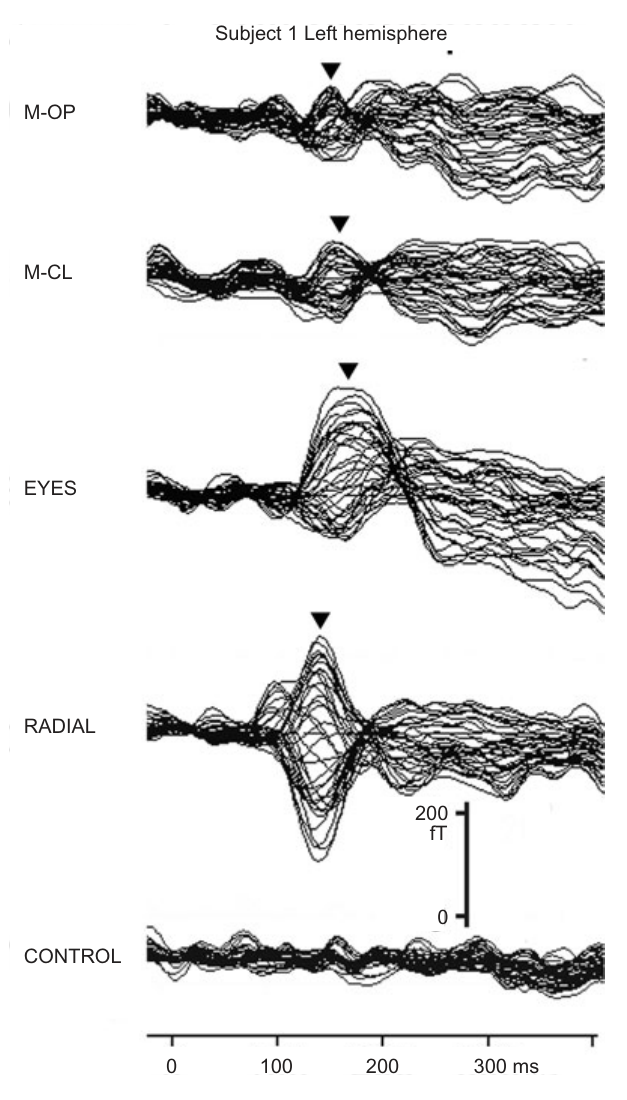
图 8 · 右半球 1M 的源:落在人 MT/V5 的解剖学标志区
原文图注:Right hemisphere locations for 1M for apparent motion conditions overlaid on axial, coronal, and sagittal MRI slices, and the volume rendered brain of Subject 1 (adopted from Miki et al.20).
把被试 1 右半球各似动条件下 1M 的源位置叠加在轴位、冠状、矢状 MRI 切片与三维渲染脑上。读法是检查四类运动条件的源是否聚在同一区域:它们都落在枕颞交界外侧部、对应人 MT/V5(按 Dumoulin 等的 ITS 标志核验),嘴部运动的源相对眼部略偏前上、相对 RADIAL 略偏内,但差异不显著。这支撑结论 4 的定位部分。
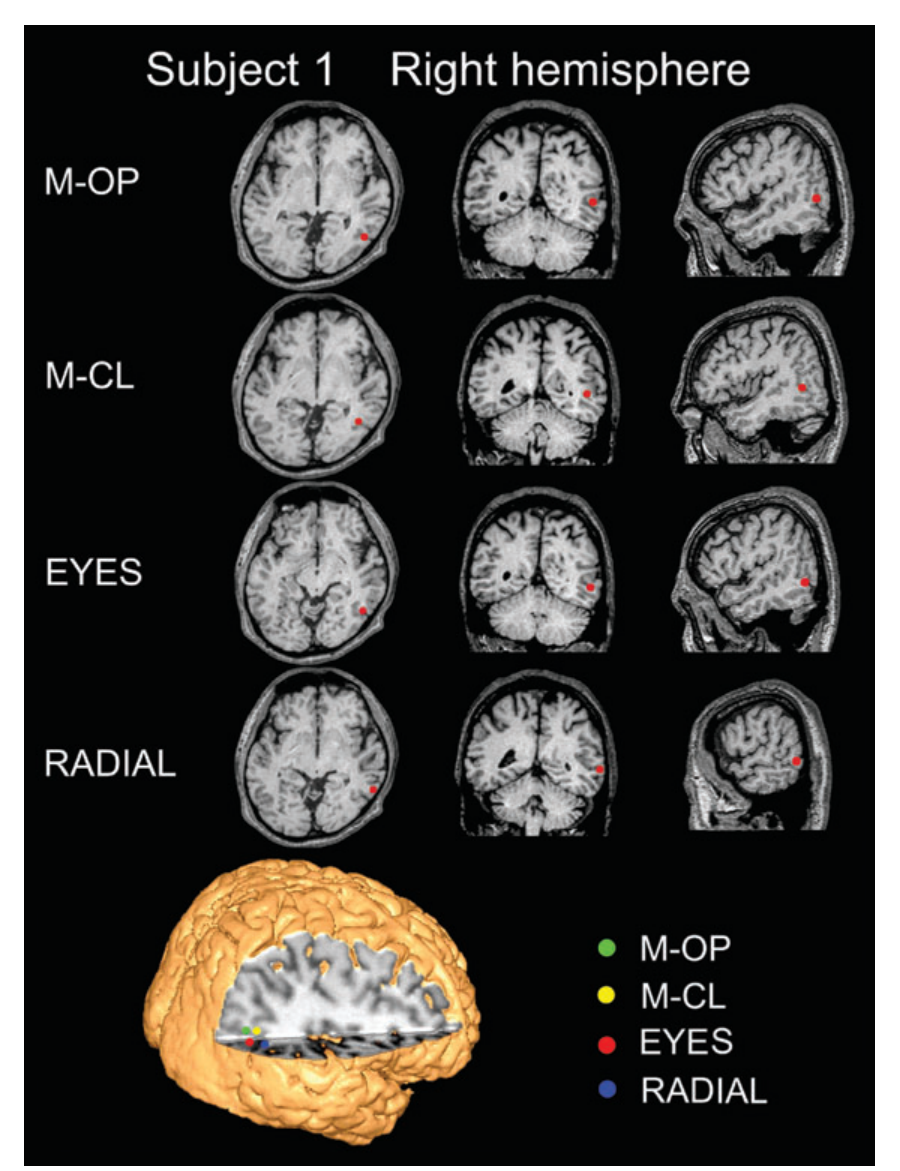
图 9 · 左半球 1M 的源:同样汇于 MT/V5,位置差异不显著
原文图注:Left hemisphere locations for 1M for apparent motion conditions overlaid on axial, coronal, and sagittal MRI slices, and the volume rendered brain of Subject 1 (adopted from Miki et al.20).
图 8 的左半球对应版:四类运动条件的 1M 源同样汇聚于人 MT/V5;相对 EYES,嘴部运动的源显得略偏上,相对 RADIAL 略偏后,但单因素 ANOVA 检验均不显著。左右两半球合起来看,"嘴与眼运动的知觉在 MT/V5 被相似地加工"这一结论(结论 5)的定位证据才完整。
讨论
作者把两块结果放在同一框架下解读:对面孔这种复杂刺激,下颞皮层(IT,围绕梭状回)与外侧颞皮层(LT,近 STS)在约 140–200 ms 同时且独立地激活。倒置效应方面,本文是首个用 MEG 考察倒置效应半球差异的研究:倒置不改变激活区域,只改变时间进程——右半球对正立面孔的"整体构型"(holistic processing)做快速加工,倒置破坏了构型、迫使面孔被逐件拼装(piece-meal),而这种拼装由左半球更高效完成;这与 McCarthy 等人的颅内半野研究(右半球 N200 对正立面孔更快更大、左半球对倒置面孔更快)相互印证。作者特别强调潜伏期、幅度与源位置上倒置面孔都与物体不同,故不认为倒置面孔被当作"物体"加工。运动方面,人 MT/V5 同时参与嘴部与眼部运动知觉,两类运动的发生源无差异,但潜伏期与幅度有梯度,提示 MT/V5 及其周围具有多重响应特性。作者也如实交代了局限:MEG 的源位置是活动质心,当激活区部分重叠时难以检出小差异(PET/fMRI 的部分容积效应同样如此);嘴部运动呈现在下视野却幅度更小,与猴 MT/V5 下视野放大率更高、而人 MT/V5 无下视野偏置的已知结论相悖,作者借 Naito 等人的 270 度似动结果论证视野因素不太可能是主因,但坦承解释尚不确定。
一句话总结
在我看来,这篇综述最经得起时间考验的是它把"方法互补"用成了论证工具:MEG 与 EEG 各自只看见半个故事(切向与径向),合在一起才把 IT 与 LT、倒置的时间效应与位置的"不变"拆得清清楚楚。面孔加工的部位在倒置下不变、速度却变,这种"同址异时"的结论放在今天依然是有用的提醒——看到某脑区被激活,不等于就理解了知觉的机制。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[A, B] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[] - Fig7: 提取质量
good,对齐度full,识别面板[A] - Fig8: 提取质量
good,对齐度full,识别面板[] - Fig9: 提取质量
good,对齐度full,识别面板[]