本研究将脑电(EEG)中经典的物体识别实验范式迁移至脑磁图(MEG,magnetoencephalography),检验了熟悉物体诱发更强诱导伽马频段响应(induced Gamma-Band Response, iGBR)的实验效应,并通过分布式源定位与相位锁定分析探讨了关于 MEG 记录伽马频段长程同步能力的争议。研究系统评估了熟悉性效应的跨模态一致性,并分析了源定位与功能耦合指标在解释上的边界。
研究背景
物体识别需要将分布在不同皮层区域的颜色、形状与空间特征整合为连贯的知觉表征。针对这一特征绑定问题,表征同步假说提出,皮层群体之间的伽马频段节律协调可能参与了对象表征的建立。脑电研究表明,熟悉且具有语义的物体通常诱发较强的诱导伽马活动,该过程受注意与长时记忆的调节。电生理记录中需要严格区分两类信号:与刺激起始时间严格锁相的诱发成分(evoked response)可通过试次平均保留,而诱导成分(induced response)在各试次间存在潜伏期抖动或相位离散,必须在单试次水平进行时频变换后计算能量均值。若混淆两类成分,将难以厘清早期感觉输入与后期识别加工的神经机制。
关于脑磁图记录诱导伽马活动的研究结果此前存在分歧。部分在脑电中诱发明显诱导伽马的任务未能在脑磁图中稳定检出,引发了脑电更易反映长程同步、而脑磁图主要反映局部环路振荡的技术假说。由于不同研究在实验任务、刺激属性与时频分析算法上常存在差异,难以将测量差异单一归因于记录设备。为了在统一范式下进行检验,需要在既往证实有效的识别任务中,考察脑磁图能否检测到熟悉性诱发的诱导伽马反应、其皮层发生源的空间广度以及源间的相位协同关系。
本研究采用物理特征匹配的熟悉彩色物体与随机扭曲后不可辨认的无意义图形,通过无重复呈现避免了重复抑制效应对伽马活动的干扰。作者先在传感器空间检验诱导伽马响应,随后使用分布式源模型重建皮层电流密度,并计算发生源间的相位锁定值;同时将早期事件相关场(ERF)与诱发伽马(eGBR)作为感觉加工对照。需要说明的是,源重建基于电磁逆问题的数学估计,相位锁定反映的是信号间的相位一致性,不直接等同于因果定向投射。熟悉条件下较高的局部放电功率提升了信噪比,这本身可能有助于检测到显著的相位锁定;而不熟悉条件下显著连接数量较少,不排除受信噪比下降影响的可能。
研究思路
研究主要采用三步递进的分析流程:首先在传感器层面检验熟悉与不熟悉刺激诱发的 iGBR 功率差异;随后利用分布式源定位算法 VARETA(变分辨率电磁断层成像)重建 iGBR 峰值时段的皮层电流分布,检验其是否符合分布式网络模型;最后在重构的源空间中实施相位锁定分析(phase-locking analysis),测量不同皮层发生源之间的跨区域同步。
为区分早期感觉加工与晚期认知表征,研究将事件相关场成分(P1m、N1m、L1m)和严格锁时的诱发伽马(eGBR)纳入平行分析作为感觉对照。早期 ERF 成分在已知初级感觉区的定位亦用于验证该 MEG 逆解流程的解剖合理性。
方法
18 名健康受试者完成有效数据采集(原招募 19 人,排除伪迹过大 1 人;平均年龄 25±3 岁)。使用 148 通道全头型 MEG 记录,采样率 678.17 Hz,频带范围 0.1–200 Hz。刺激材料包括 200 张标准库熟悉彩色物体照片,以及 200 张通过几何扭曲算法生成的不可辨认图形,两组刺激在平均亮度与空间频率谱等物理参数上保持匹配;400 个试次无重复随机呈现(每张呈现 700 ms,刺激间隔 500–900 ms),受试者进行熟悉度按键辨别。
信号分析流程:ERF 经 25 Hz 低通滤波,选取 P1m(110–140 ms)、N1m(190–220 ms)与晚期 L1m(300–500 ms)时间窗;源定位采用 VARETA 算法(3244 个体素网格,7 mm 空间步长,受限在 MNI 脑图谱灰质内),经 Hotelling T2 与单因素 ANOVA 检验(随机场理论校正,P<0.01)。时频分析使用 7 周波 Morlet 小波变换:eGBR 在平均波形上分析(70–120 ms,27–37 Hz);iGBR 先在单试次中减去平均 ERF,再计算单试次时频功率均值(提取频段 60–95 Hz,时间窗 160–440 ms),并在连续时间窗内进行“刺激类型 × 潜伏期”重复测量 ANOVA。相位锁定分析基于 Lachaux 等(1999)的相位锁定值(PLV)算法:在 iGBR 显著激活区提取 5 个感兴趣区(ROI),通过试次时间置换构造零假设分布检验统计显著性(设定阈值 P<0.01 与保守阈值 P<0.001)。
主要结果
- 早期 ERF 成分 P1m 与 N1m 在两类刺激条件间未表现出显著差异,源重建定位于双侧枕极和舌回;晚期成分 L1m(300–500 ms)表现出显著的熟悉度效应(t(17)=3.3,P<0.01),源定位于双侧缘上回与角回(图 1;表 1)。
- eGBR(70–120 ms,27–37 Hz)不受物体熟悉度调制,其皮层发生源定位于双侧枕极,与早期感觉成分重合(图 2;表 1)。
- iGBR 在 60–95 Hz 频段表现出明显的功率上升,空间分布覆盖顶—枕区域。刺激类型主效应显著(F(1,17)=10.8,P<0.01),熟悉刺激诱发的 iGBR 功率显著强于不熟悉刺激;各时间窗的计划比较显示除最早窗(10–140 ms)外,其余各窗均达到显著差异(t(18)>2.7,P<0.05),峰值出现在 160–440 ms(图 3、图 4)。
- 源空间分析显示,iGBR 峰值时段的活动源分布于双侧颞叶、顶叶及右侧额叶,局部重心分别位于双侧下颞回(MNI 坐标:∓57, −40, −24)、双侧上顶叶小叶(∓36, −40, 48)与右侧额中回(28, 32, 48)(图 5A–C;图 4;表 1)。
- 相位锁定分析表明,在熟悉物体条件下,5 个皮层源之间的 10 对连接组合中有 7 对达到显著锁相水平(P<0.01,校正阈值 P<0.001 下保留 6 对);而在不熟悉物体条件下,仅观察到 1 对(ROI1–ROI5)达到显著水平(图 5D)。
图注解读
图 1 · 事件相关场的波形与源定位:早期成分不辨新旧,晚成分区分熟悉与否
原文图注:Fig. 1A depicts the grand mean root–mean-square ERFs for familiar and unfamiliar objects across all MEG sensors. We found no significant effects for the P1m and N1m components, whereas the late component L1 (300–500 ms) revealed a significant difference between familiar and unfamiliar pictures (t(17)=3.3; P<0.01).
解读:A 图展示全脑传感器均方根(RMS)总平均波形,实线代表熟悉物体,虚线代表不熟悉物体,方框标出 P1m、N1m 与 L1m 分析窗;早期成分波形高度重叠,L1m 窗口出现显著分离。B 与 C 图展示 P1m 和 N1m 的源定位 SPM,定位于枕叶感觉皮层;D 图为 L1m 刺激类型效应的 ANOVA 统计图,显著源定位于双侧下顶叶和颞叶结构。
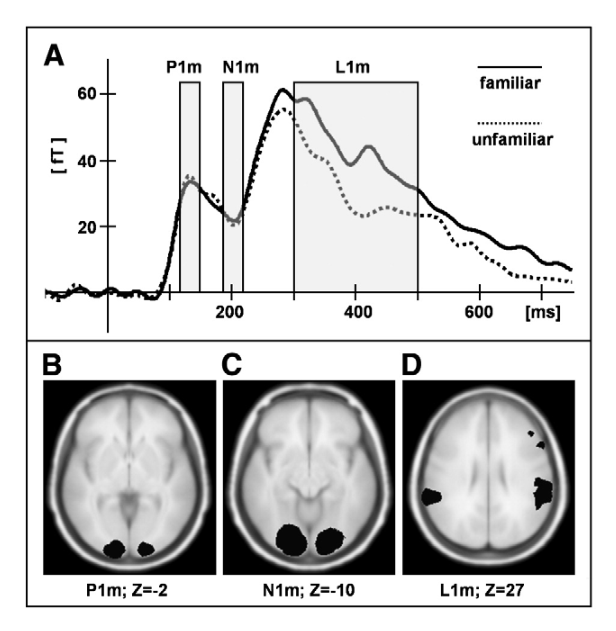
图 2 · 诱发伽马的时频图与源:锁时的高频脉冲停在枕区
原文图注:Fig. 2A depicts the baseline-corrected TF-plot for the evoked high-frequency range (20–65 Hz) averaged across both conditions and 18 subjects. The statistical analysis of the evoked Gamma-Band Response (eGBR; 70–120 ms; 27–37 Hz) revealed no significant effect of STIMULUS TYPE. Note that the sensors used for the TF plot and for statistics are derived from the topographical distributions of the eGBR depicted in Fig. 2B (averaged across familiar and unfamiliar objects).
解读:A 图为跨条件平均的诱发高频时频图,在 70–120 ms、27–37 Hz 范围内显示短时程能量增加;B 图为对应的球面样条插值头皮地形图;C 图展示 eGBR 源定位结果,发生源局限于双侧枕极。统计检验未发现条件间存在显著差异。
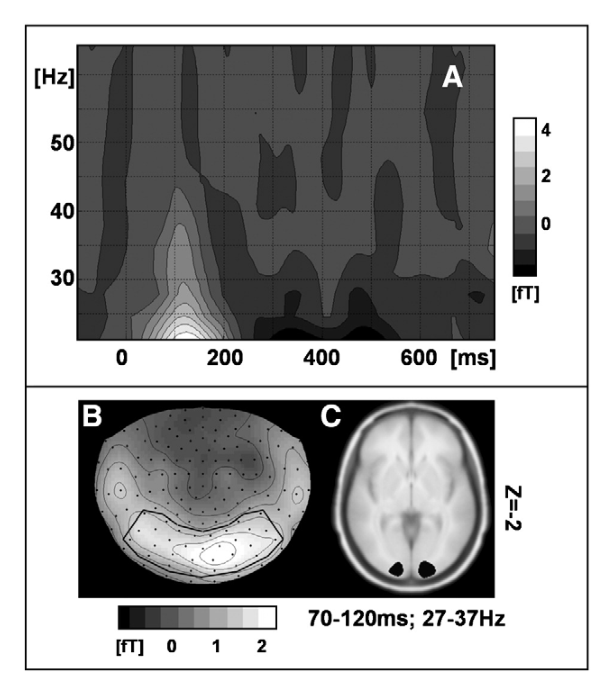
图 3 · 诱导伽马的时频过程:熟悉刺激在 160–440 ms 窗口持续更强
原文图注:Fig. 3 – A: Grand mean baseline-corrected TF plot of the induced high frequency response averaged across familiar and unfamiliar items and the sensors indicated in 3B. B: Grand mean spherical-spline interpolated topographical map of the iGBR averaged across both conditions. C: Mean induced Gamma amplitudes (+SE) at the sensors indicated in 3B subdivided according to the experimental conditions and six consecutive time windows (: P<0.05; *: P<0.01; ns: not significant).
解读:A 图为诱导高频成分的时频图,显示 60–95 Hz 频段在 160–740 ms 出现持续性功率增强;B 图为 iGBR 的顶—枕区头皮分布;C 图分 6 个时间窗展示熟悉与不熟悉刺激诱发振幅的柱状对比。除 10–140 ms 外,其余时间窗内熟悉物体的诱导振幅均显著高于不熟悉物体,差异最显著期集中在 160–440 ms。
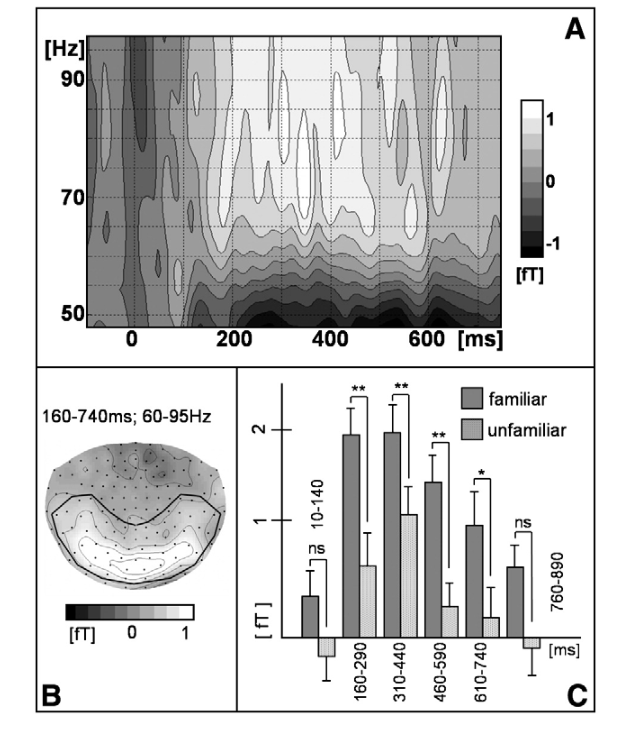
图 4 · iGBR 峰值的地形图与差值图:差异广布而非局限于某一点
原文图注:Fig. 4 – Left: Grand mean spherical-spline interpolated topographical maps of the iGBR peak (160–440 ms; 60–95 Hz) related to familiar and unfamiliar pictures. Right: Difference topography (familiar minus unfamiliar) of the iGBR peak.
解读:左侧展示熟悉与不熟悉条件在 iGBR 峰值窗(160–440 ms,60–95 Hz)的传感器地形图;右侧为两条件的差值地形图(熟悉减不熟悉)。结果显示条件差异在顶—枕广泛区域均有体现,而非局限于单一电极通道。
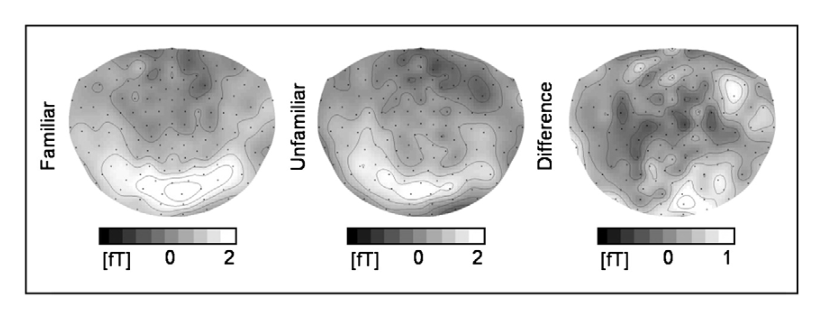
图 5 · 源空间定位与发生源之间的相位锁定网络
原文图注:Fig. 5A, B and C show the SPMs for the iGBR peak (160–440 ms) at coronal, sagittal and axial slices. We found prominent sources at bilateral posterior, parietal and temporal areas and right frontal region. MNI coordinates of the centres of gravity are presented in Table 1. The widespread spatial distribution of iGBR generators mirrors the broad topographical distribution of the Gamma peak as depicted in Fig. 3B and is in close concordance with the difference-topography (familiar minus unfamiliar) shown in Fig. 4.
解读:A、B、C 切片图展示 iGBR 峰值期的统计参数图(SPM),黑圈标示 5 个感兴趣区(双侧颞下回、双侧上顶叶小叶及右侧额中回)。D 图示意源间相位锁定网络:连线代表 PLV 显著高于置换检验阈值(P<0.01)的连接通道。熟悉条件下有 7 对连接达到显著,不熟悉条件下仅检出 1 对弱连接。
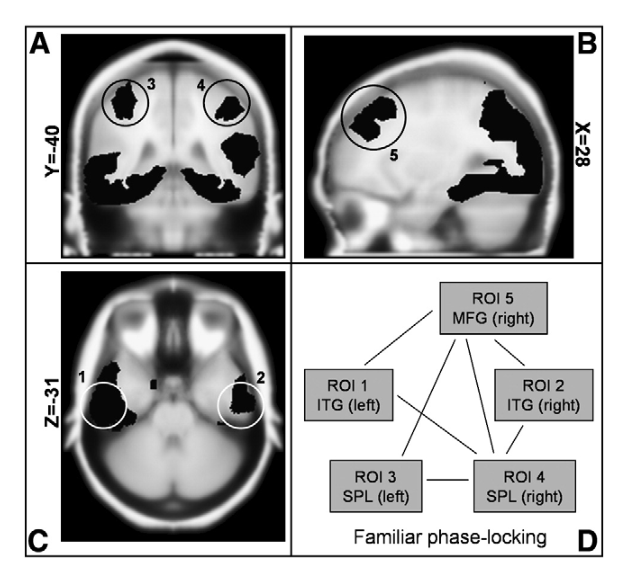
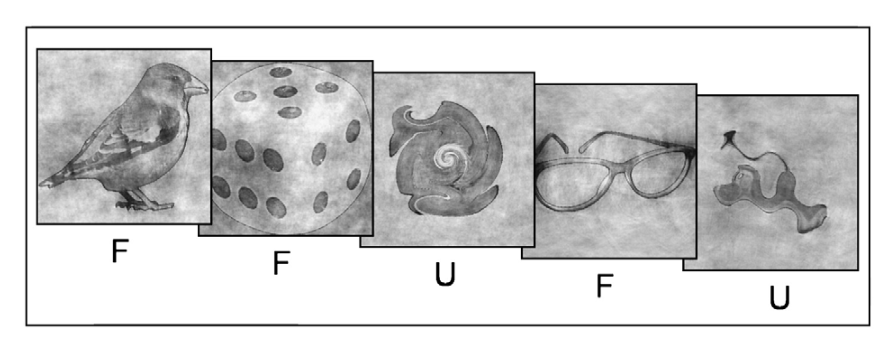
图 6 · 刺激序列示例:意义操纵靠"扭曲图像"实现
原文图注:Fig. 6 – Excerpt of stimulus sequence. Familiar (meaningful) and unfamiliar (meaningless) colour pictures were presented in randomized order.
解读:实验试次时序示意图,呈现注视基线、随后呈现熟悉物体照片或通过空间扭曲处理的无意义图形,最后记录受试者的熟悉度按键判断。图示说明了刺激对比在保持低层视觉参数平衡下的实验控制。
讨论
研究表明,脑磁图能够在物体识别任务中记录到广泛分布的诱导伽马振荡,并证实了皮层源之间的长程相位同步。这一结果为“诱导伽马参与分布式物体表征协调”的假说提供了数据支持,并表明 MEG 同样能够有效捕获皮层间的长程节律关联。在解剖分布上,颞下回、上顶叶与前额叶的共同激活与既往利用颅内脑电与功能成像报道的腹侧—背侧联合网络相一致。
作者在讨论中提出了两点方法学限定:第一,不熟悉刺激下相位锁定的减弱,可能直接反映了功能耦合的下降,但亦不能排除是由于局部诱导功率偏低导致测量信噪比降低所引起的假阴性;第二,基于断层成像算法的源定位可能存在邻近脑区的信号泄漏或相互串扰,但对于相距较远的额叶、顶叶与颞叶源而言,空间泄漏不足以解释其长程相位关系。此外,与脑电相比,脑磁图中观测到的诱导伽马频段重心相对偏高(60–95 Hz),时程相对较宽,可能与脑磁传感器对切向皮层电流源的敏感性特征相关。
一句话总结
本研究证实人类脑磁图能够稳定检出与物体熟悉度相关的分布式诱导伽马振荡及其跨皮层长程相位同步,表明该节律特征并非脑电特有的测量效应。