这篇文章用清醒猕猴的对比剂增强 fMRI,让两只猴子看三组人工合成、此前从未见过的物体类,结果在 IT 皮层(inferior temporal cortex)发现了一张毫米级以上尺度的"形状选择拓扑图":它跨 3 个月时间间隔、跨 13 万余次的判别训练、跨任务与视网膜位置大体不动,却会随物体形状的改变而重组,并与已知的"脸斑"(face patches)分布部分相关但不可还原。它值得读在于剥离了熟悉物体的意义与记忆混淆,把"腹侧皮层为何长成这样"的问题第一次推到了"形状本身"上。
研究背景
人类与猴的 fMRI 研究不断报告腹侧视觉通路里对生态学上重要的熟悉类别(脸、场所、身体部位)有毫米至厘米级选择响应的斑块(Kanwisher et al. 1997; Epstein & Kanwisher 1998; Downing et al. 2001; Tsao et al. 2003; Pinsk et al. 2005),高分辨率的光学与电生理工作也在 IT 里找到约 0.5 毫米尺度的柱状组织(Fujita et al. 1992; Tsunoda et al. 2001; Tanigawa et al. 2005),除脸外只有脸的组织跨度超过一个柱径(Wang et al. 1998)。问题在于:这些测量用的都是高度熟悉的类别,形状、演化意义、熟悉性、语义、加工方式以及偏向中央的离心度偏置全部纠缠在一起,无法判定功能组织由哪个维度塑造。
用陌生的物体可以解开这个死结——新物体在意义、记忆与熟悉性上没有差异,若连它们的类间差异都能在 IT 上投出稳定的空间模式,那这种组织就只能来自形状一类属性。但当时没有证据保证陌生类也能测出功能组织:单用逐体素阈值的经典方法,IT 里只有小尺度柱状组织,可能根本检测不到。四种定性假设。:赛前赛后都没有拓扑;只有熟悉后才长出拓扑;陌生阶段已有拓扑且训练不动它;已有拓扑但训练会重塑它。
研究思路
作者的整体策略是"先证存在、再证不变、最后证可变":第一步只用第一天看到物体的数据,检验对三个陌生物体类是否已有可复现的选择空间分布——如果有,训练的作用才有基线可言。第二步做一串"保持形状不变"的操纵:隔 3 个月再扫(期间让每只猴密集训练只对其中一类的类内形状判别)、换一个完全不同的行为任务、把物体移到完全新的视网膜位置——这些操纵都保形状而动其他因素,拓扑应当保持。第三步做"动形状"的操纵:构造全局与局部形状特征重新组合的新类(spiky smoothies、cuby spikies、smoothy cubies),看地图是否随之改变——这是接地检验:若连形状改了地图都不动,那这张图就只是低级混伪的投影。最后把新物体的拓扑与既有脸斑图对齐,回答"熟悉类别斑块是不是同一张地图的特例"。分析手法上,作者不满足于逐体素显著性("冰山一角"),而用跨体素相关把全 ROI 的分布式模式变成可复现性的直接测量,并用裂半信度推算出"如果两张图完全相同最高能得到的相关的期望值",让"稳定"成为可检验的定量陈述。
方法
两只恒河猴(Macaca mulatta):公猴 J(约 3.7 kg)、母猴 M(约 3.2 kg),均植入 MR 兼容头桩,实验跨度分别为 20 与 18 个月。刺激为三类参数化陌生物体(每类 1296 个样本,轮廓 6×6 度视角):smoothies(光滑轮廓)、spikies(尖角为主)、cubies(水平底座加竖直部件);类间既差在整体(global)形状特征(如纵横比、结构),也差在局部(local)形状特征(曲线对直线、锐角比例),类内样本还在 4 个复合形状维度上变化,必须看全形才能分辨。定位扫描用 20 张恒河猴脸、20 张猴子熟悉的物体与 20 张 Fourier 打乱图。行为任务三种:被动注视(间歇奖水的中央注视窗内)、颜色任务(检测弱饱和红/绿/蓝的换色,每 20 个物体 1 次,换色时向注视点上方 8 度的白方块扫视,虚警率控制在 5% 以下)与形状判别任务(先后两图同/不同,向左右两个 10 度偏心白方块扫视,刺激 300 ms、至少 420 ms 间隔、2 度位置抖动)。
训练期把扫描中断约 3 个月(J 95 天、M 81 天),每只猴只练自己一类的类内判别(J: spikies;M: smoothies):初始即便用类内最大刺激差异也在机会水平(J 50%、M 53%),数月训练后达到对 60% 最大刺激差异良好成绩(J 会话 46:71%;M 会话 43:72%),累计观看超过 13 万次训练类样本,而训练前扫描期每类呈现不足 6000 次。fMRI 在 3T Siemens Allegra 上用径向表面线圈做 EPI(TR 3 s,TE 26 ms,1.25 mm 等向体素,45 片,覆盖从枕极到颞极的腹侧视觉皮层);每会话前静注单晶氧化铁纳米颗粒对比剂(monocrystalline iron oxide nanoparticle, MION,约 7 mg/kg),其信号与血容量反相关,故响应值反号后以相对注视条件的百分信号变化(percent signal change, PSC)表达。块设计:每块 45 s 只含一个物体类的样本(实验 1 中为跨越该类样本空间的 60 个固定样本),每时间序列 9 块约 7 分钟。共 6 个实验:0 为定位实验(脸/物体/打乱图),1 为训练前的陌生物体实验("原始"数据),2 为 3 个月后同法重复,3 为扫描器内形状判别任务(刺激呈现与行为解耦),4 为位置实验(猴 J 用 8.4 度离心的象限刺激,猴 M 用类特定位置抖动补偿各类的视网膜包络差异),5 为全局/局部形状混合的新类实验。保守保留 193(J)与 180(M)个时间序列(约 87%),注视率须 >84%,眼位坐标并进广义线性模型的协变量;数据以 2.5 mm FWHM 平滑,分析粒度为 2–3 mm。ROI 四种:新物体选择 ROI(实验 1 内显著体素,每会话平均 223 个)、标准物体选择 ROI(物体对打乱图的对比,每猴平均 1264 体素)、视响应 ROI(8271 体素)、旁中央凹V1 ROI(parafoveal V1,约覆盖0–7度视野;平均1076体素)。选择性以"选择指数"度量:偏好类响应归一化为 1 后,(偏好−非偏好)×100%。稳定性用两类检验:选择指数的测试-重测,以及跨体素空间相关,并用裂半信度算出"两图完全一致时的最大期望相关"作为参照上限。
主要结果
- 陌生物体类在 IT 上有可复现的选择拓扑:单体素层面,每对比较平均约 19% 的 IT 体素在 P<0.001(未校正)下显著;对实验 1 中选出的偏好体素做测试-重测,平均类别选择指数 38%(非偏好类响应只有偏好类的 62%),在两猴均显著复现(J: P=0.02;M: P<0.001)(图 3、4a)。
- 拓扑超出"冰山一角":在标准物体选择 ROI 上,把数据对半分后两半之间三张成对差异图的空间相关为 0.57(J)与 0.73(M);剔除高选择体素后仍达 0.55 与 0.69——即在"逐体素不显著"的其余体素群上,类别偏好同样统计可复现(图 5)。
- 跨 3 个月间隔与 13 万余次训练类样本呈现后,拓扑几乎不动:选择指数从 38% 到 34%(两猴均不与原始值显著不同);空间相关平均 r=0.51(J)、0.53(M),不显著低于由信度推出的最大期望值 0.55;逐对比较均显著(J: 0.72/0.44/0.38,M: 0.56/0.57/0.45)。第一天扫描得到的拓扑与 3 个月后已平均相关 0.58——地图在猴子第一次看到这些物体时就在。训练类与非训练类的拓扑可复现性没有差异(J: 0.38 对 0.44;M: 0.57 对 0.45)(图 6)。
- 任务与视网膜位置也基本不动它:换成形状判别任务后选择指数 31%,与色彩任务测得的值无显著差别,跨任务空间相关 0.33(不显著低于最大期望 0.42);分开描述:先报告两猴偏心刺激使IT响应降至38%和26%,且图可靠性分别仅0.29和0.07;再说明因M偏心图不可靠,主分析改用M的类别特异中央位置抖动,最终J与M各自不同的位置操纵合并得到r=0.44。、不显著低于最大期望 0.49;对照之下 V1 的跨位置相关只有 0.04,pre-IT 后部视网膜拓扑皮层在同位置 3 个月后仍复现(J 0.27、M 0.46)而换位置即失复现(J 0.03、M 0.09)。另外训练对 IT 整体反应幅度的影响很小:色彩任务下不显著(J P=0.28;M P=0.27),只有在形状任务中训练类才显著高于非训练类(合并 P=0.010),作者提示可能与注意有关(图 4b、6、7、8)。
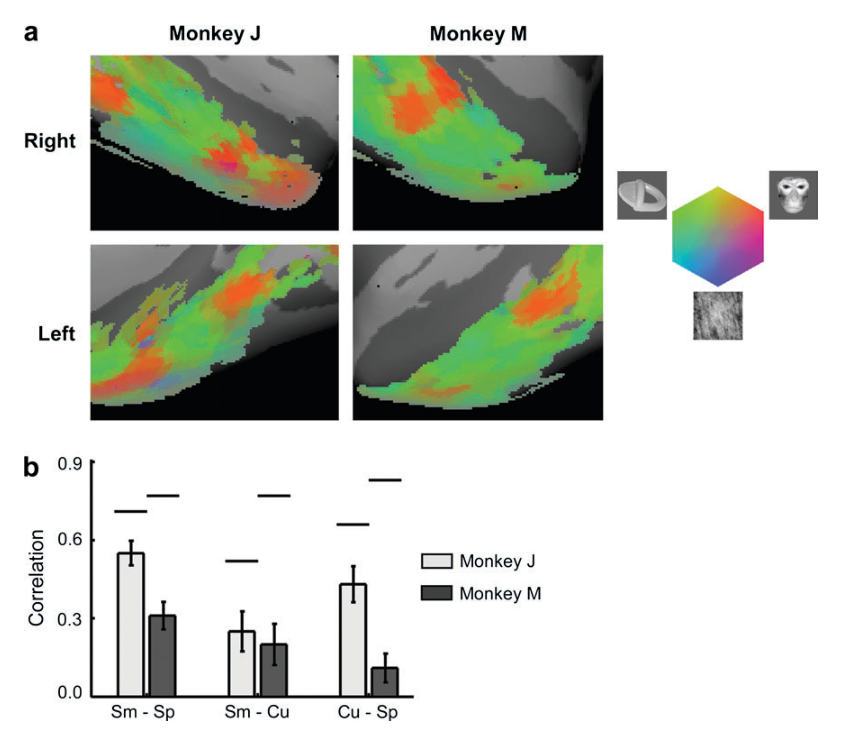
- 改形状则拓扑变;脸斑只解释一小部分:三个全局/局部特征重组的新类使空间相关降到全局 r=0.29、局部 r=0.13,均显著低于可靠性上限 0.55(局部形状下两猴都显著,全局形状下一猴显著)——现有地图既与全局相关也与局部相关,但都不能完全解释它。[faces−objects] 的空间分布与三对陌生类选择的跨体素相关平均 0.31,显著低于最大期望 0.71;多元回归中预测 3 个月后拓扑的是新物体选择性本身(标准化系数 0.49, P=0.0002)而非脸选择性(0.12, P=0.12);把一切带脸偏好的体素(占标准物体选择 ROI 的 19%)剔除后,3 个月跨间隔相关仍有 0.47。脸选择性区域倾向落在相对偏好smoothies、以及较弱程度偏好cubies胜过spikies的区域。,但这只是大图的一角(图 9、10)。
图注解读
图 1 · 四种假设的对照框架
原文图注:Figure 1. Four qualitative hypotheses about how much selectivity for initially novel object classes might be found with fMRI and how this selectivity might change as a consequence of training to gain expertise with those object classes. (a) No topography of selectivity before or after training; (b) no topography of selectivity before training but clear selectivity after training; (c) topography of selectivity before training that is unaffected by training; (d) topography of selectivity that changes as a consequence of training.
解读:这是全文的"假设树":上下两行分别代表训练前与训练后,(a) 永远没有拓扑,(b) 熟悉后才长出拓扑,(c) 陌生期已有拓扑且被训练保留,(d) 已有拓扑但训练会改变它。整篇文章的实验排布(先测原始图、再训练 3 个月、再测)就是在 c 与 d 之间裁决,答案是 c。
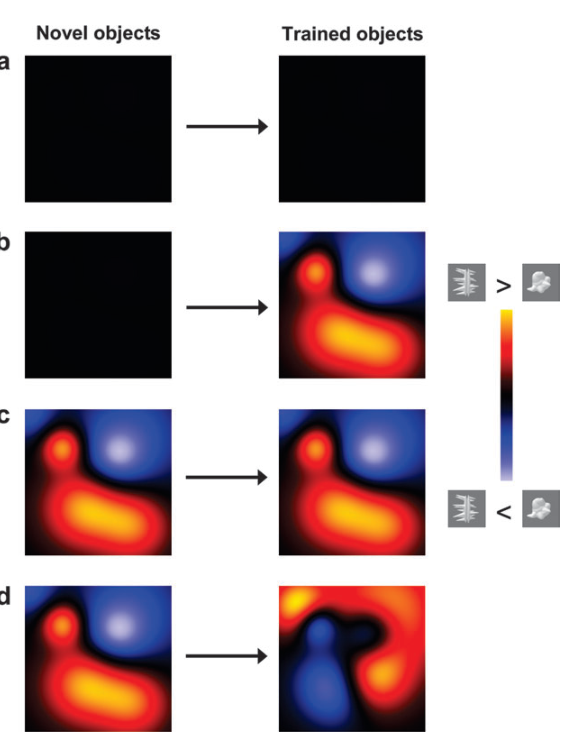
图 2 · 三类参数化陌生物体示例
原文图注:Figure 2. Four example objects from each of the 3 parameterized object classes used throughout most experiments (smoothies, spikies, cubies). In each panel, the 2 example objects in the top row are maximally distinct from each other (100%) within the space of possible objects in the class. For comparison, the 2 example objects in the bottom row are only 60% as distinct from each other.
解读:三个面板分别展示 smoothies、spikies、cubies 各四个样本:上行为类内差异拉满的两个样本,下行为只有 60% 差异的两个样本。看这张图的要点是"类间差异"(光滑、尖刺、方块)与"类内差异"(4 个复合形状维度)并存——被试既要在扫描中被动看类间差异,也要在训练中学会分辨类内的细微差异。这也是第 3 条结果里"训练改变的是类内分辨能力",而 fMRI 地图主要由类间形状塑造的前提。
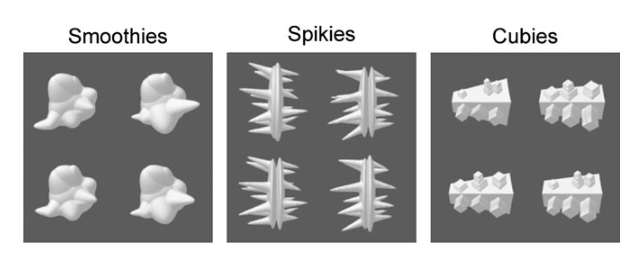
图 3 · 逐体素显著图:三对对比在 IT 中的分布
原文图注:Figure 3. Significance maps of selectivity for novel object classes across anterior IT cortex (data from Experiment 1). (a) Anatomical location of anterior IT cortex (area TE). The border between area TEO, an area with a coarse retinotopic organization (Boussaoud et al. 1991), and area TE, an area without any known retinotopic organization, is indicated with a green dotted line and was estimated based on data in the literature (Boussaoud et al. 1991). Abbreviations of anatomical landmarks: pmts, posterior middle temporal sulcus; amts, anterior middle temporal sulcus. (b) Significance maps in IT cortex for each of 3 pairwise contrasts ([spikies − smoothies], [cubies − smoothies], [cubies − spikies]) in each hemisphere of each monkey. The maps are thresholded at P < 0.001 (uncorrected for multiple comparisons).
解读:(a) 铺垫解剖:绿色点线是 TEO(有粗略视网膜拓扑)与 TE(无已知视网膜拓扑)的分界,本文的 IT 范围大致覆盖 TE。(b) 在每只猴的每个半球平铺三对成对比较的显著图,阈值 P<0.001 未校正;显著片块零星分布,平均每对比较只有约 19% 的 IT 体素过阈。这张图给出"冰山一角":单看显著体素,组织似乎稀疏零散,这正是下一步需要分布模式分析的动机。
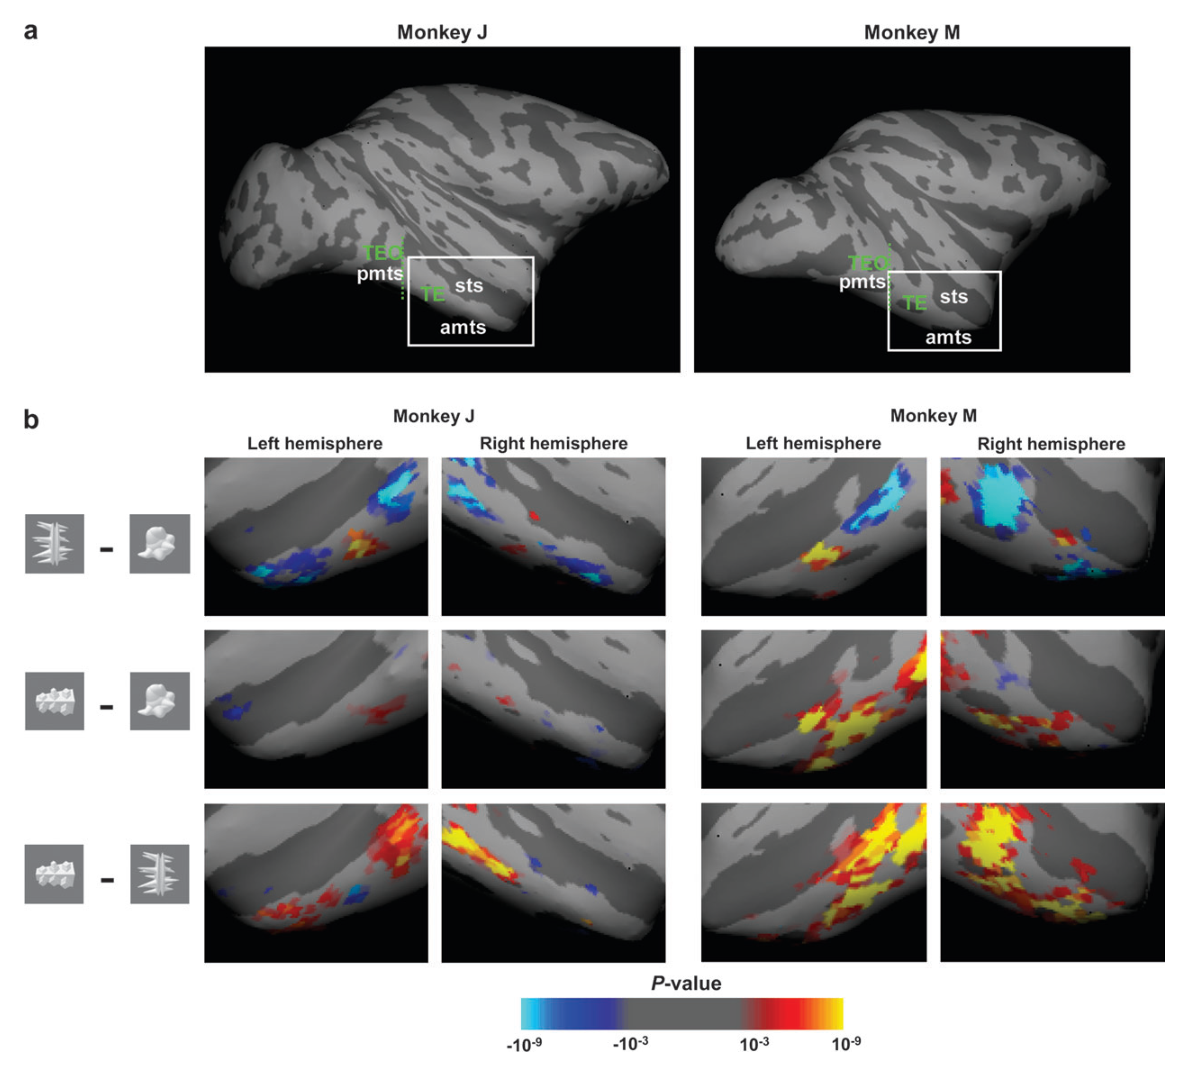
图 4 · 选择性的可复现性与跨操纵稳定
原文图注:Figure 4. Reproducible, stable selectivity in monkey IT cortex for novel object classes. (a) The mean response to the preferred and nonpreferred object classes over voxels showing significant pairwise object class selectivity in Experiment 1 (normalized to the mean response to the preferred object class, see Materials and Methods). The difference between the light and dark bar indicates the average pairwise class selectivity. Responses are shown for the scan session used to select the voxels with a significant preference for one object class above another (selection) and for the same voxels but using data from other scan sessions (independent). (b) The category selectivity in these voxels, defined as normalized preferred response minus normalized nonpreferred response. This selectivity measure was computed for the selected voxels using independent data from Experiment 1 (i.e., the independent data from a; original), data obtained several months later (time), data obtained while the monkeys performed a different visual task (task), and data obtained with objects presented at different visual field positions (position). Error bars show the standard error of the mean across time series (see Materials and Methods).
解读:(a) 纵轴为归一化响应(偏好类=1),浅柱为偏好类、深柱为非偏好类;"selection"由选体素的那个会话给出(有自我拟合的危险),"independent"换成其他会话的数据——两类响应的差才是真正可靠的选择性证据(非偏好只有偏好的 62%)。(b) 把这套体素的时间进程换到训练后(time)、形状判别任务下(task)、移位条件下(position)重新估选择指数:原始 38%、3 个月后 34%、形状任务 31%、变位置 36%,彼此之间均与原始值无显著差异。这张图是"不变性"的第一个量化版本。
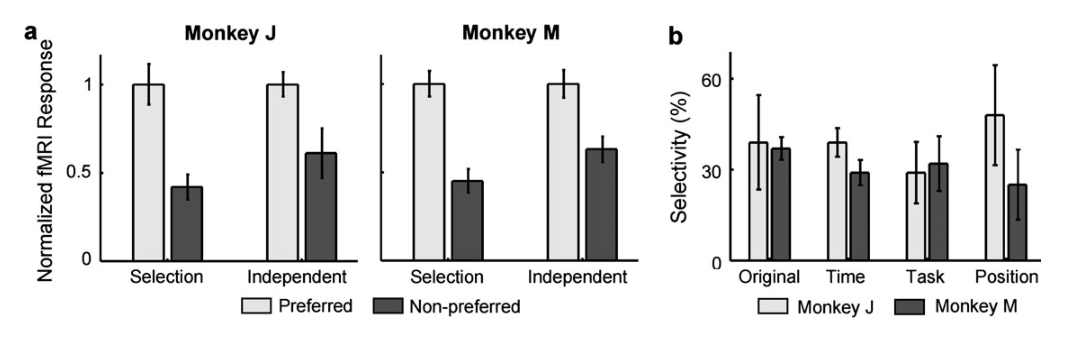
图 5 · 覆盖 IT 的选择拓扑彩色图
原文图注:Figure 5. Large-scale selectivity maps for novel objects across the ventral visual pathway in monkeys. (a) Nonthresholded pairwise t-maps of the 3 object classes in monkey M (right hemisphere). (b) Multidimensional color map that represents the selectivity across all 3 object classes (right hemisphere of each monkey). The procedure followed to derive these color maps from pairwise t-maps (as shown in panel a) is explained in the Materials and Methods. Saturation represents amount of selectivity (no saturation = gray = same response to each object class) and hue represents which object class is preferred (spikies = green, smoothies = red, cubies = blue) or which combination. Scale bar shows an approximate distance of 7 mm. (c) Mean response to each object class at points indicated in the selectivity maps in b. Responses are expressed in units of PSC relative to the fixation condition, and error bars represent the standard error of the mean of these responses across time series (see Materials and Methods).
解读:读彩色图有两条通则:色调说的是"这一片偏好哪一类"(绿=spikies、红=smoothies、蓝=cubies,混合色=组合偏好),饱和度说的是"偏好有多强"(灰色=三类响应相同)。(a) 是构成这种色调的原始 t 值图(未加阈值,蓝到黄对应 −5 到 5)。(b) 把三张 t 图合成一张后呈现:每个半球都出现成片的色调分区,尺度条 7 mm 提醒这已是毫米级组织。(c) 抽出几个取样点的三类平均 PSC,可以看到"偏好"是相对的:偏好某类的位点对其他类仍有响应,只是弱——排除"完全隔离的类别模块"这一极端图景。
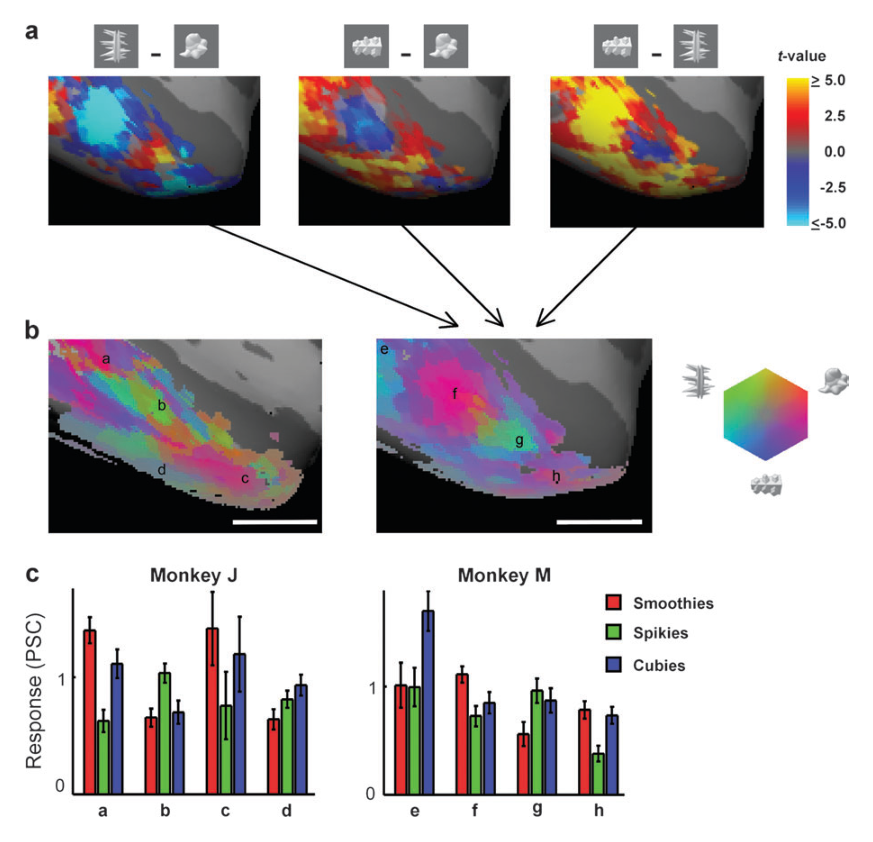
图 6 · 跨时间/训练/任务/位置的拓扑稳定性
原文图注:Figure 6. Stability of the selectivity topography in IT cortex across time, training, task, and object retinal position. (a) Selectivity topography represented by the same continuous color scale introduced in Figure 5. The maps are shown for the original experiment and across time/training, task, and changes in the position of the stimuli. (b) The correlation between the original selectivity topography and the selectivity topography measured from each of the other data sets in each monkey (including data from both the left and right hemispheres; see Results for details). The left panel shows the correlations for each monkey separately, the right panel shows the correlations for each pairwise object class comparison. The horizontal lines represent the maximal correlation that is expected if the selectivity topography was identical in each case (i.e., given the reliability of the 2 data sets being correlated; see Materials and Methods). The ratio of the observed correlation to the error bar represents the test statistic to determine the significance of the correlation across time series (see Materials and Methods).
解读:(a) 四行分别是原始、3 个月后(同任务)、形状判别任务、变位置条件下的彩色拓扑:前三行肉眼几乎相同。(b) 把相关性数值化:左板分猴(跨时间约 0.51/0.53),右板分成对比较(0.38–0.72),每根柱的横线是"若两图完全相同所能得到的最大相关"(由信度算出)——柱与横线之间的落差就是拓扑实际改变量的上限估计。这张图支撑结果 3 与 4:观察到的相关普遍贴近上限,稳定不是"测不出差异"而是"差异小于测量误差允许的范围"。
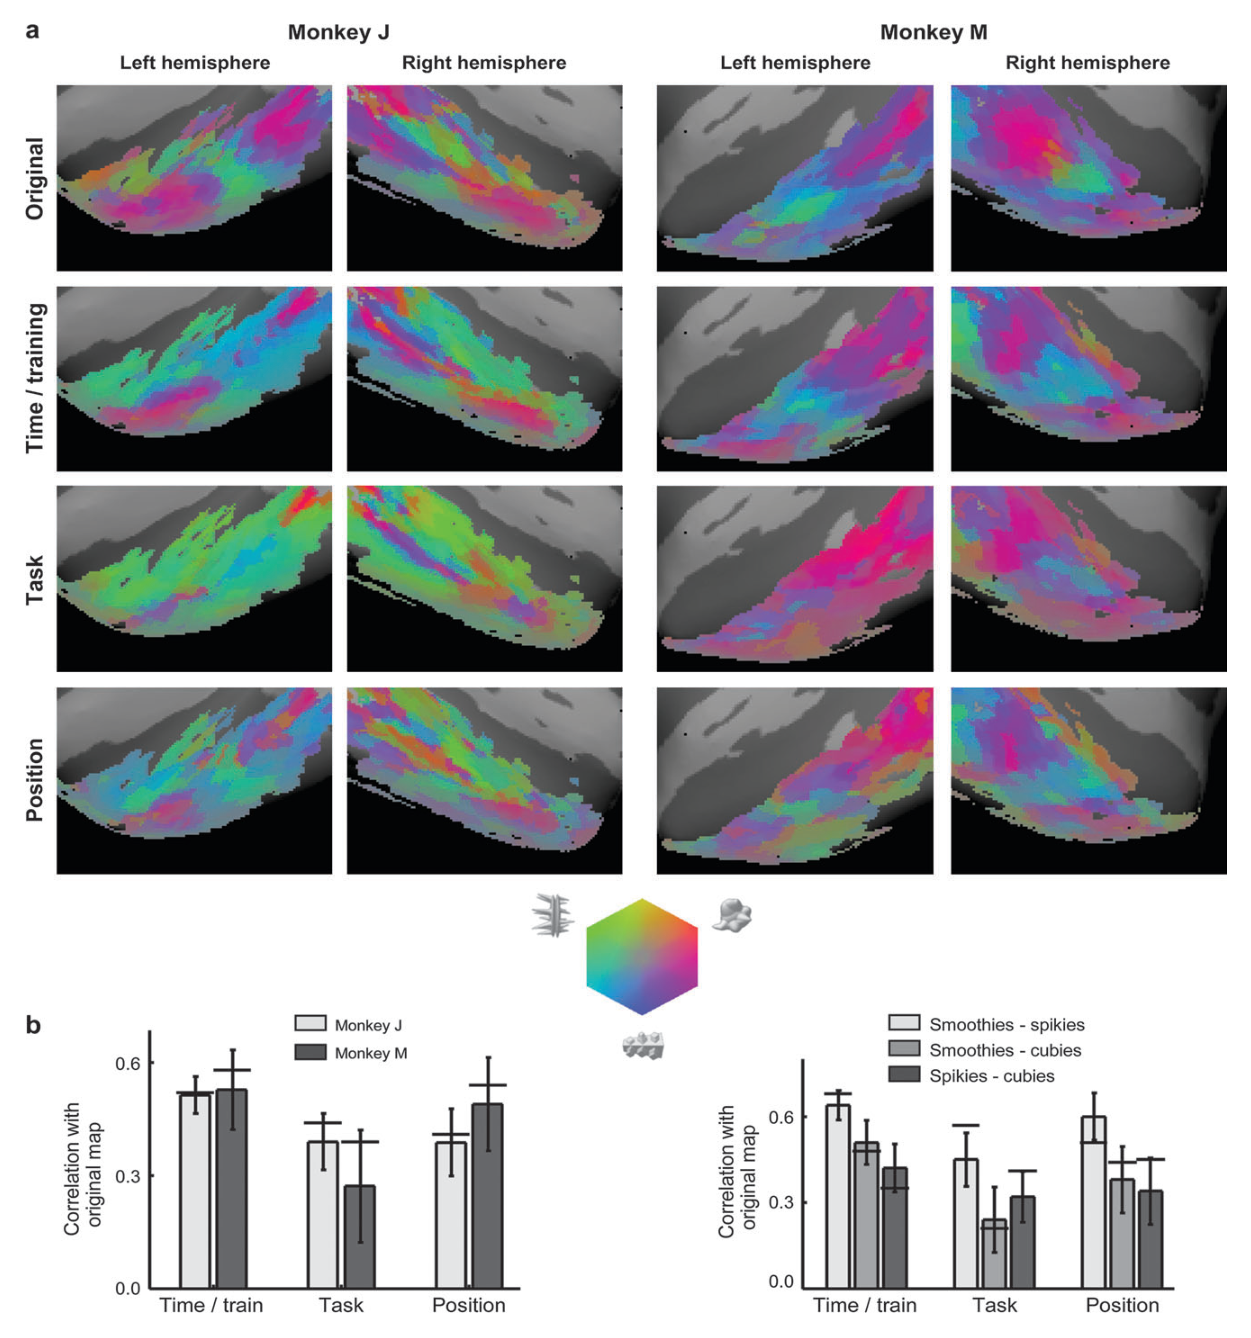
图 7 · 训练对整体反应幅度的影响
原文图注:Figure 7. The effect of training on overall responsiveness in IT cortex. The results are shown for 3 experiments: color task before training (Experiment 1), color task after training (Experiment 2), and shape discrimination task after training (Experiment 3). In each monkey, the trained object category is the category for which the monkey was trained in the training phase (spikies for monkey J and smoothies for monkey M) and the untrained object category is the category for which the other monkey was trained (smoothies for monkey J and spikies for monkey M). The responses were normalized per experiment according to the overall response to the untrained object category. The overall response (expressed as PSC relative to fixation) in the different experiments was 0.90 (Experiment 1), 0.87 (Experiment 2), and 0.77 (Experiment 3). Error bars show the standard error of the mean across all time series obtained in the 2 monkeys (N = 53, 61, and 61 in Experiments 1, 2, and 3, respectively).
解读:三组实验各给训练类与非训练类的归一化整体响应柱。要点是这组数字与空间拓扑分离:13 万次训练显著的类内辩别经验把"训练类响应相对更响"只在形状判别任务里推到显著(两猴合并 P=0.010),色彩任务下则不显著;绝对 PSC 反而略有下降(0.90→0.77)。这支撑结果 4 的最后一句:训练对 fMRI 地图的"大小"效应很弱、且部分依赖任务要求中隐含的注意,而不是对拓扑的位置调整。
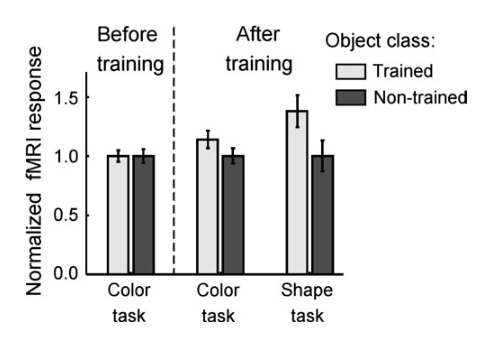
图 8 · 物体位置改变:IT 稳、早期视觉区垮
原文图注:Figure 8. The effect of object position on the pattern of selectivity across the ventral visual pathway in monkey J. The pattern of selectivity in anterior regions (especially IT) as found with foveal stimuli (top 2 panels) was largely replicated with peripheral stimuli (bottom panel). In contrast, the pattern of selectivity in posterior regions was strongly altered by changes in object position. In fact, reliability analyses failed to show within-position replicability of the pattern of selectivity in posterior regions with peripheral stimuli that appeared in multiple positions (in contrast to all other selectivity maps shown in this paper). That is, the color map in posterior regions in the bottom panel was unreliable. IOS, inferior occipital sulcus.
解读:上两板是 fovea 条件下的彩色图,下板是把刺激移到 8.5 度偏心后的同一只猴的重复——前部(IT)的色调分区大体保留,后部(枕下回/枕叶皮层)的分色结构却散乱,可靠性检验显示后部在偏心条件下根本自身不复现。对比前后两图可以立刻读出作者的核心论点:位置一变,视网膜拓扑组织的投影图案必然变,IT 却大体不动——IT 拓扑于是不能归因于视网膜包络差异,这正是"形状地图"提法的关键证据。
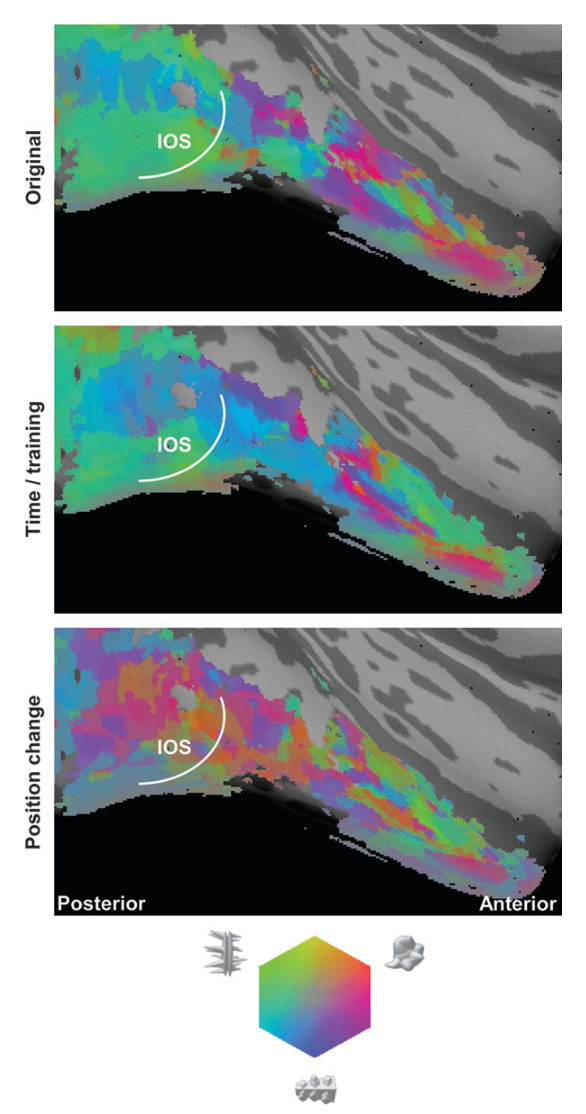
图 9 · 形状特征重组改变选择拓扑
原文图注:Figure 9. Changes in stimulus shape alter the selectivity topography in IT cortex. (a) One exemplar from each of the 3 new object classes that were used in this experiment. (b) The correlation of the spatial pattern of selectivity across voxels in the original measurement (Fig. 6) with the selectivity for object classes that have similar global shape properties (global) or similar local shape properties (local). The horizontal lines indicate the expected correlation if the spatial patterns were identical (as in Fig. 6b).
解读:(a) 是三个重组类的样本:spiky smoothies、cuby spikies、smoothy cubies——把原三类的局部特征与另一类的全局特征拼在一起。(b) 把原图(图 6)的选择模式同新实验中"全局形状对应"与"局部形状对应"的对比做跨体素相关:全局相关平均 0.29、局部平均 0.13,皆为正,但往往显著低于红线(可靠性上限约 0.55)。结论有两层:形状改变确实改变了地图(对照前面的时间/任务/位置操纵),且任何一个特征维度都装不下整张图——地图编码的是更广泛的形状特性。
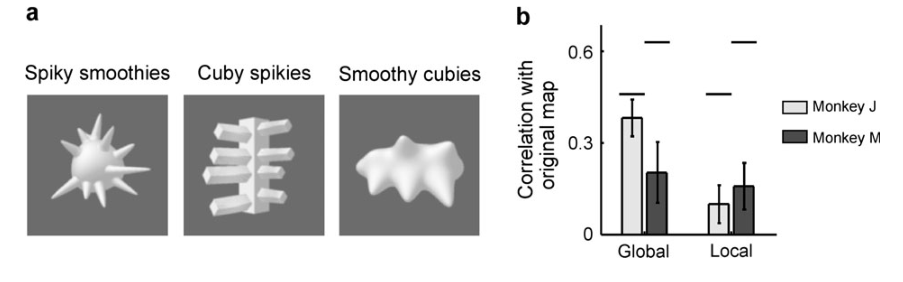
图 10 · 与脸斑的关系:部分相关、不可还原
原文图注:Figure 10. Selectivity maps across IT cortex for familiar objects. (a) Selectivity maps obtained using faces, natural objects, and scrambled images. (b) Correlation of the spatial distribution of selectivity for [faces − objects] with the spatial distribution of selectivity for 3 pairs of novel object classes. The horizontal lines indicate the expected correlation if the spatial pattern of face selectivity was identical to the indicated novel object selectivity pattern (as in Fig. 6b). Error bars show the standard error of the mean across time series. Sm, smoothies; Sp, spikies; Cu, cubies.
解读:(a) 用熟悉的脸/物体/打乱图做定位,红橙色区域就是 IT 里的脸斑(face patches),其可靠性(0.70、0.85)比陌生类对还高。(b) 计算脸斑空间分布与三对陌生类选择图的跨体素相关:平均 0.31、多数显著为正(脸斑倾向于落在偏好 smoothies 而非 spikies 的区域),但全部显著低于红线的上限约 0.71。这张图把结论从"不相干"精确到"部分相关但不可还原"——脸斑的分布只能解释一小部分形状图的形状,且后者在剔除脸斑后依旧完好。
讨论
作者把这些结果统统装进"成人 IT 包含一张大尺度形状图(shape map)"这一表述下:它与光学成像和电生理看到的数百微米柱状选择有亲缘关系(Fujita et al. 1992; Tanigawa et al. 2005),但尺度更大;与人类"物体形态拓扑"(object form topology,Haxby et al. 2000)的提法相呼应,却第一次用陌生物体剥离了熟悉性与意义。最出乎作者意料的是这张图的"顽固":他们"努力想让它变",三个月高强度训练、改任务、改位置全都无效——对照之下唯一有效的只有改形状。关于训练效应,作者直面与人类数据表面上的矛盾:同一组物体类在人类被试只需 10 天训练就会改写选择的空间模式(Op de Beeck et al. 2006,结果介于图 1c 与 1d 之间),猴却 3 个月不动。可能的解释有三:人类擅长多刺激比较类任务,10 小时就到了猴子 3 个月都不到的优异成绩;猴在扫描前获得的曝光量至少是人类的 5 倍,较多预曝光或许固定了拓扑;MION 与 BOLD 的差别不是借口,因为 3T 下 MION 敏感性反而更高。与单单元文献的关系也对齐了:经验的单细胞效应通常幅度小、方向不定(下降:Baker et al. 2002; Freedman et al. 2006; 上升:Logothetis et al. 1995; Kobatake et al. 1998),本文 fMRI 上小幅的训练反应升高并不冲突;作者还提出一种候选解释——训练可能更多改变 IT 的输出(发放活动)而非输入(LFP),而 LFP 在 IT 里 8 mm 尺度上选择偏好相关(Kreiman et al. 2006),与 fMRI 图的尺度匹配。剩下更深的一组问题作者是这样摆的:脸斑是先有一个形状图再在其上定位,还是脸这种突出类别的长期曝光反过来塑造了整张图(类似离心度偏置塑造人类物体区的方式,Levy et al. 2001; Hasson et al. 2002)?以及生态上重要类别的选择(如手与腿同属身体部位、形状却迥异)难道只靠形状吗(Erickson et al. 2000; Pietrini et al. 2004)?
一句话总结
这张笔记我写完最想留下的印象是"顽固"二字:作者把能把物体地图洗牌的三个因素(时间、训练、任务)全试了一遍,地图不动,但只要换一个类别的形状它就换脸。在我看来这更像一张由形状相似性本身织出来的先天骨架,训练和意义只能在骨架上调节亮度——这与把脸斑视为"演化定制模块"的读法并不冲突,脸斑只是落在这张骨架上一处形状相似的区域。是否真的"先有形状图后有脸斑",文中诉诸未来研究,我的这个判断也仅是个人解读。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig10: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[] - Fig7: 提取质量
good,对齐度full,识别面板[] - Fig8: 提取质量
good,对齐度full,识别面板[] - Fig9: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_001', 'md_section': '研究背景', 'current_text': '若连它们的类间差异都能在 IT 上投出稳定的空间模式,那这种组织就只能来自形状一类属性。', 'problem': '陌生刺激只能减少熟悉性、语义和进化意义等混淆,不能逻辑上排除全部替代解释。本文通过任务、位置及形状重组实验支持形状解释,但仍未证明形状是唯一原因。', 'classification': 'OVERCLAIM', 'recommended_fix': '改为“这将支持形状属性是该组织的重要来源,同时仍需通过任务、视网膜包络和具体形状操纵排除替代解释。”'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_002', 'md_section': '图注解读/图6', 'current_text': '稳定不是“测不出差异”而是“差异小于测量误差允许的范围”。', 'problem': '观察相关不显著低于可靠性上限,并不等同于完成等效性检验,也不能证明真实差异小于某个预先规定的界值。原文采用的是“within the limits of our data”和“no discernible effect”的有限结论。', 'classification': 'OVERCLAIM', 'recommended_fix': '改为“在现有信噪比和检验能力范围内,没有检测到相关显著低于可靠性上限的拓扑改变。”'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_003', 'md_section': '主要结果', 'current_text': '地图在猴子第一次看到这些物体时就在。', 'problem': '第一日r=0.58支持该判断,但主分析可能漏掉数日内的快速变化,而且猴J第一日数据注视质量不足。原文使用“suggests”,不是确定性证明。', 'classification': 'OVERCLAIM', 'recommended_fix': '改为“较低质量的第一日数据仍与三个月后的拓扑相关,提示该拓扑可能在首次扫描日已经存在,但不能排除早期快速变化。”'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_004', 'md_section': '一句话总结', 'current_text': '这更像一张由形状相似性本身织出来的先天骨架,训练和意义只能在骨架上调节亮度——脸斑只是落在这张骨架上一处形状相似的区域。', 'problem': '研究对象是成年猴,未操纵发育经历,无法区分先天组织与扫描前长期视觉经验。单一训练范式的毫米级fMRI零结果也不能推出训练和意义“只能”调节响应幅度。脸斑与陌生形状图仅为空间相关,不能建立其发育来源或因果依附关系。', 'classification': 'OVERCLAIM', 'recommended_fix': '保留为明确标注的假设,并改为:“结果与成人IT中预先存在、对本训练范式较稳定的形状组织一致,但其先天或经验依赖来源、训练在更细尺度上的作用,以及脸斑与该组织的发育关系仍未确定。”'} -> 评注:
- 补充要点: : (第 12 页)
- 补充要点: : (第 3 页)
- 补充要点: : (第 11 页)
- 补充要点: : (第 17 页)
- 补充要点: : (第 16 页)