本文将非参数格兰杰因果(Granger causality)分析应用于清醒行为猕猴下颞叶(IT)皮层同步记录的单神经元放电序列,探讨皮层微回路中的动态信息传递。研究发现,在 gamma 频段(30–80 Hz)内,神经元间的信息流并非恒定的单向传递,而是表现出“早期前向驱动 → 中期慢发育后向反馈 → 晚期前向回返”的三相时变动态;且该动态信息流仅在呈现具有合理空间构型的类面孔刺激时特异性出现,并与平均放电率动态实现功能解耦。这一发现为解析皮层局部微回路的时序交互机制提供了单细胞水平的动态证据。
研究背景
在同步记录神经元对后,如何根据放电序列推断局部微回路的功能连接,是电生理学的重要问题。经典互相关图(CCG)分析通常将零延迟附近的中心对称峰归因于共同输入或双向循环连接,而将偏离中心零点的时延位移峰视为串联单向突触连接的指征。这种基于全时段平均的静态描述便于建立初步的功能连接拓扑,但容易将神经元间的交互方向视作固定不变的物理属性。随后的研究表明,神经元间的耦合强度会随视觉刺激属性和行为情境发生动态变化;局部场电位与尖峰相干分析也揭示了特定频段振荡在皮层协调活动中的作用。然而,相干性增强仅反映了神经活动的同步程度,无法区分相互作用的有向因果方向,亦无法回答在时间平均意义下的单向连接中是否包含时序展开的反馈调制。
在跨脑区宏观网络研究中,格兰杰因果分析已被广泛用于评估有向信息传递,但其在局部皮层微回路单单位尖峰序列中的应用仍相对较少。下颞叶皮层微电极电生理揭示出柱状功能架构以及对复杂物体构型的高度选择性,但由于局部连接具有密集和循环往复的特征,神经元之间的信息流动方向是否在毫秒级时程上动态反转,此前未见系统性实验实证。若能直接追踪具有特定时间延迟的单细胞对间的信息流向,将有助于厘清局部皮层网络在不同加工阶段的计算逻辑。
本研究在猕猴执行整体构型判别任务期间,针对同步记录的具有 CCG 位移峰的单神经元对开展非参数格兰杰因果分析,重点考察 gamma 频段内有向信息流的时间演变特征。研究通过引入试次平移对照消除刺激锁定共调制的混淆,并对比不同特征空间构型对因果动态的影响。需客观指出的是,格兰杰因果分析属于统计预测层面的有向耦合估计,不能完全替代单突触水平的解剖确证;单细胞尖峰序列具有高度稀疏性和点过程离散性,对信噪比要求严苛,分析限于部分具备显著相关峰的记录对;此外,任务要求的高强度行为训练是否重塑了局部网络的反馈动态,仍需在更多刺激范式中进一步验证。
研究思路
研究设计遵循“相关筛选 → 频谱因果定量 → 动态时程解析”的递进路线。首先依据经典互相关图(CCG)的峰形特征,将记录到的单神经元对区分为位移峰对与中心峰对:前者在传统框架中对应具有固定时间先后的单向连接,后者对应共同输入或循环连接。随后将分析聚焦于具有位移峰的细胞对,应用适用于离散点过程尖峰序列的非参数格兰杰因果分析方法(Dhamala et al., 2008; Nedungadi et al., 2009),结合试次平移预测因子(trial-shifted control)剥离纯粹由刺激诱发的锁时共调制成分。
在此基础上,引入 ±125 ms 滑动时窗开展时频动态分析,将线索期 1 秒内的因果流在时间-频谱空间完整展开,解析不同时段内信息流向与振荡频率的对应关系。最后,将刺激材料严格划分为类面孔构型(FO)与非类面孔构型(NFO),通过配对刺激比较检验因果动态的构型特异性,并结合神经元发放率时程分析,检验信息流反转是否与平均放电强度变化解耦。
方法
实验使用两只日本猕猴(Macaca fuscata)。在 1.0°–1.4° 注视窗内训练完成视觉物体分类判别任务:注视点出现后呈现刺激 1 s(线索期,cue period),经 500 ms 延迟后出现执行信号,猴需在 1 s 内按键报告刺激为类面孔物体(FO)还是非类面孔物体(NFO),记录期间正确率达 99.7 ± 0.4%。刺激由 120 个特征部件(眼、鼻、嘴样图形)在半径 3° 范围内按面孔几何或随机构型组合而成。
在 IT 皮层 TE 区通过单微驱动装置独立推进 2 根钨丝电极(间距 0.6–1.0 mm),或经单电极记录后离线聚类分离为单个单位。共获得 56 对在刺激线索期具有显著视觉响应且在 CCG 中表现出显著相关峰的神经元对(猴 1 获得 29 对,猴 2 获得 27 对;21 对呈位移峰,35 对呈中心峰)。分析方法采用非参数频域相干性与格兰杰因果分析:利用多锥形矩阵因果分解直接从尖峰点过程的交叉谱密度矩阵估计有向信息传递(避免参数自回归模型的阶数选择偏差);引入试次错位对照消除伪相关;时间分辨分析采用 ±125 ms 时窗配合 25 ms 滑动步长,频段划分为 gamma 频段(30–80 Hz)及子频段;群体比较采用配对 t 检验及置换检验,并经 Bonferroni 多重比较校正。
主要结果
- 时间平均层面:位移峰神经元对在线索期表现出前向主导的 gamma 因果。群体统计显示,位移峰对的 gamma 相干峰值位于 51 Hz,显著高于试次平移对照与线索前基线水平(p < 0.001);前向格兰杰因果(峰值位于 47 Hz)显著高于试次平移对照(p < 0.01)及反向因果流(p < 0.02),反向因果亦高于对照水平(p < 0.04);两只猴的前向/后向因果比值分别达 3.01 ± 0.87 与 2.94 ± 0.89。因果优势方向与 CCG 位移峰所指时延方向完全吻合,因果不对称指数与 CCG 不对称指数显著正相关(r = 0.652, p < 0.001),亦与相干相位斜率显著相关(r = −0.643, p < 0.002)(图 1–3)。
- 时间动态层面:时频展开揭示三相时变特征。滑动时窗分析表明,gamma 频段相干性在刺激呈现后迅速上升,在线索期内持续维持(图 4A、5A)。与此相对,格兰杰因果表现出明确的时序三相性:第一相(早期,刺激后 50–250 ms)为前向因果爆发,峰值出现于约 150 ms(47 Hz);第二相(中期,刺激后 250–500 ms)出现反向因果的显著上升,峰值位于约 400 ms(34 Hz),在此期间前向因果降至对照水平,实现信息流向的完全反转;第三相(晚期,刺激后 500–700 ms)前向因果重新占据优势,峰值出现于约 550 ms(53 Hz),后向因果回落至对照水平(图 4、5)。
- 三相因果成分在特征频率上存在显著差异。早期前向因果成分峰频为 47.4 ± 3.4 Hz,中期后向因果成分峰频为 34.3 ± 1.5 Hz,晚期前向回返成分峰频为 52.8 ± 3.2 Hz;单因素方差分析显示三者峰值频率差异显著(p < 0.001),中期后向成分的振荡频率系统性低于两侧的前向成分(图 6)。
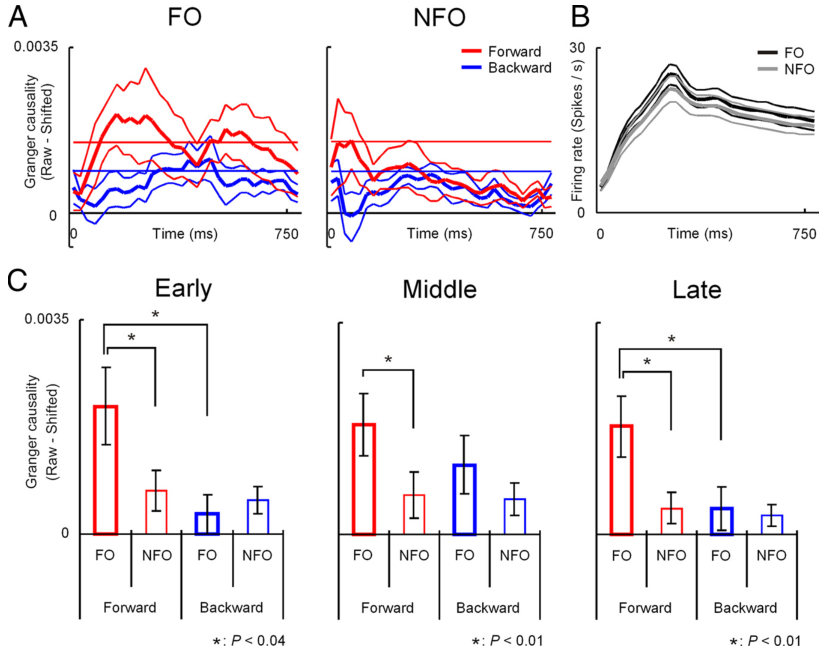
- 三相因果动态严格依赖刺激的空间构型,且与放电率动态解耦。在最优非面孔刺激(pNFO)呈现下,尽管神经元的平均放电率水平与最优类面孔刺激(pFO)相当,但 gamma 相干性及三相格兰杰因果峰均未出现(相干性与前向、后向因果在全时程均降至基线水平,图 7、8);放电率与因果强度的相关性检验显示两者无显著关联(前向 r = 0.165, p = 0.47;后向 r = 0.201, p = 0.38)。三相动态因此代表了特异于整体构型的信息加工过程。
- 中心峰神经元对缺乏三相时序性。在呈现中心对称 CCG 峰的 35 对细胞中,尽管线索期同样检测到显著的 gamma 相干与双向格兰杰因果,但前向与后向因果在全时程内对称共变,未出现有向反转的三相时序。
图注解读
图 1 · 单细胞对的示范数据:从 CCG 到因果
原文图注:Figure 1. Functional connectivity between a pair of IT neurons. A, Responses of a pair of single IT neurons to their optimal stimulus. The horizontal bar below the histogram indicates 1 s duration of stimulus presentation (cue period). B, CCG between the spike trains during the cue period. Left, Raw CCG (black) and shift predictor (gray). Abscissa, Spike time of unit 1 relative to that of unit 2. Bin width, 1 ms. Right, SSCC of the cell pair. Horizontal gray lines, Confidence limit (p < 0.05, corrected for multiple comparisons). C, Coherence between raw spike trains (orange) and between trial-shifted spike trains (kahki). Horizontal orange line, Confidence limit (p < 0.05, corrected for multiple comparisons). D, Granger causality between raw spike trains (red, unit 1 to unit 2; blue, unit 2 to unit 1) and between trial-shifted spike trains (magenta, unit 1 to unit 2; cyan, unit 2 to unit 1). Red and blue horizontal lines, Confidence limit for unit 1 to unit 2 (red) and unit 2 to unit 1 (blue). E, Directionality of the Granger causality (unit 1 to unit 2 minus unit 2 to unit 1) for raw (black) and trial-shifted (gray) spike trains. Horizontal black line, Confidence limit.
解读:这是全文方法的图解。A 给出这对神经元各自对最优刺激的 PSTH(cue 期 1 秒)。B 左是原始 CCG(黑)与移位预测器(灰),右是减去移位预测器后的 SSCC——该对在零滞后左侧有一个显著位移峰(峰 z=3.9,AI=−1.0,峰滞后 −1.5 ms),按约定指示"unit 1 流向 unit 2"的功能连接。C 显示 cue 期放电序列之间在 gamma 频段(峰 41 Hz,p<0.001)有强相干,而试验平移后几乎消失,说明相干不是刺激锁定放电的产物。D 中红色(u1→u2)与蓝色(u2→u1)都是 gamma 峰,但红色更高,方向性与 CCG 一致(38 Hz 处 p<0.001)。E 是方向性曲线,平移后消失。这张图支撑结果 1 的"示范数据"部分。
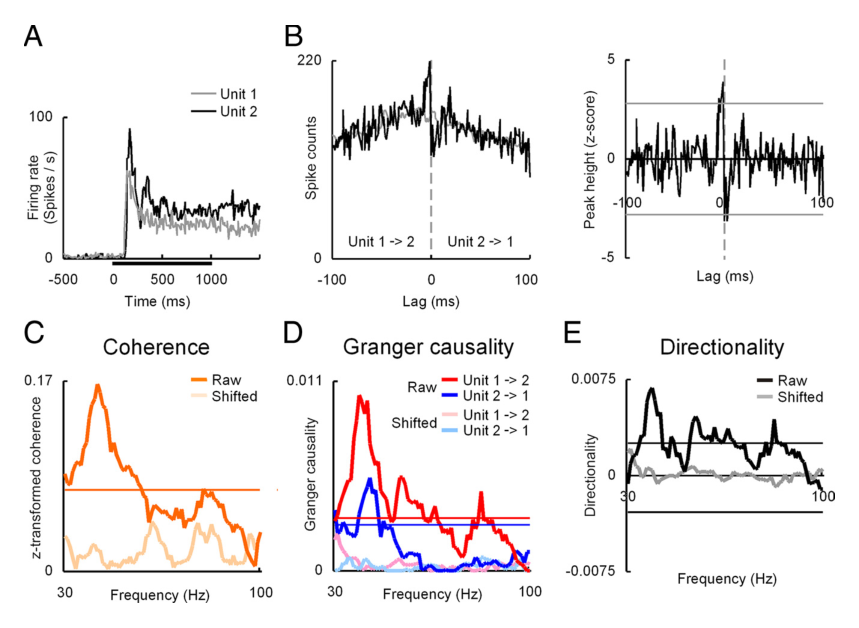
图 2 · 群体水平:cue 期前向主导、基线期无因果
原文图注:Figure 2. Population data of coherence and Granger causality for cell pairs with a displaced CCG peak. A–C, Coherence and Granger causality in the cue period. A, Coherence for raw (orange) and trial-shifted (kahki) spike trains (n = 21). Thick and thin traces depict the mean and mean±SEM, respectively. B, Granger causality for raw (red and blue) and trial-shifted (magenta and cyan) spike trains. The direction of causality was defined as forward and backward according to the CCG peak (see Results). C, Directionality of Granger causality for raw (black) and trial-shifted (gray) spike trains. The directionality was defined as the signed difference between the forward and backward components of Granger causality. D–F, Same analyses as in A–C, but for spike trains during the baseline period (1000–0 ms before cue onset). G, H, Average gamma (30–80 Hz) components of coherence (G) and Granger causality (H) for the population. Error bars represent SEM. Asterisks indicate statistical significance assessed by two-way ANOVA followed by LSD.
解读:横轴均为频率(0–100 Hz),纵轴为相干或因果强度。A–C 是 cue 期:橙色相干峰在 51 Hz,红色前向因果峰 47 Hz 高于蓝色后向,黑色方向性峰 48 Hz 明显为正。D–F 是 cue 前基线期(−1000–0 ms):两方向的因果都降到与平移对照不可区分。G、H 把 30–80 Hz 平均后做统计:cue 期相干与因果显著大于对照与基线(p<0.001),前向显著大于后向(p<0.02)。这张图支撑结果 1:位移峰对的功能连接在刺激出现时才启动、且方向偏向 CCG 所指的"前向"。
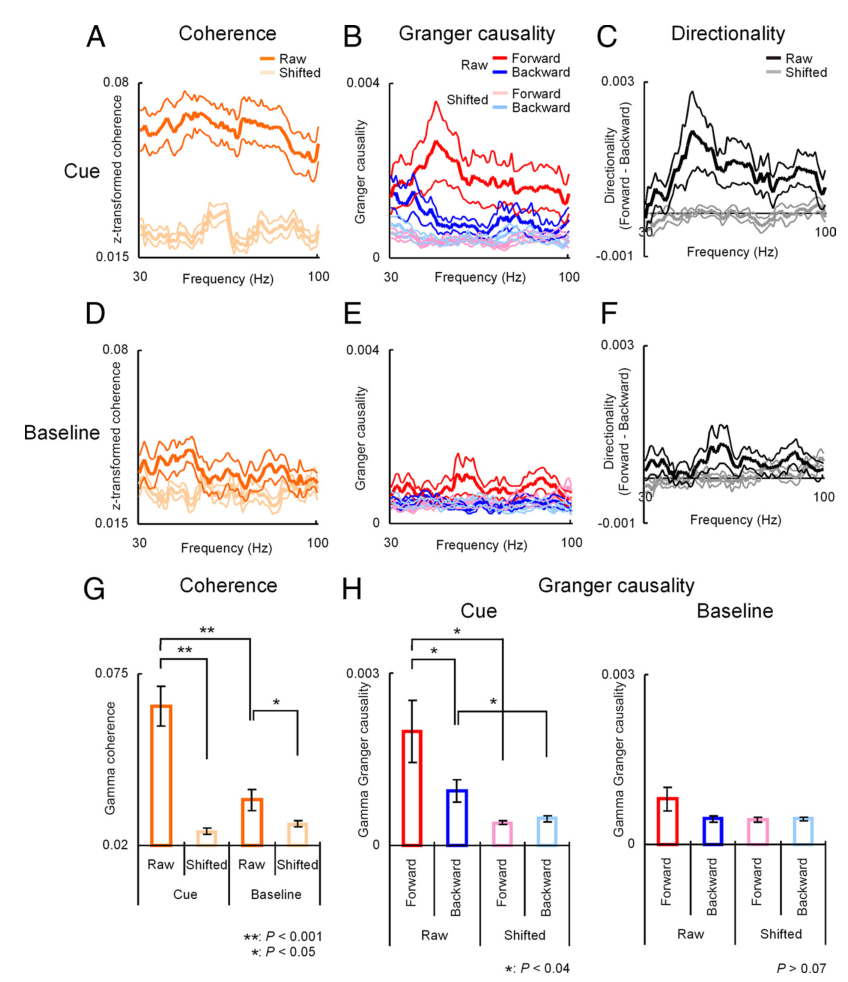
图 3 · 因果方向性与相干相位的对应
原文图注:Figure 3. Phase of coherence and its relationship with the directionality of Granger causality. A, B, Superposed phase spectra of coherence for individual cell pairs with a displaced CCG peak. Phase spectra of coherence were calculated using raw (A) and trial-shifted (B) spike trains. Different colors correspond to different cell pairs. Phase of coherence was calculated for frequencies in which the amplitude of coherence was significant for raw spike trains and the mean phase within the calculated frequencies was subtracted. Note that 0 Hz depicts the lowest frequency at which coherence of a given cell pair was significant. C, D, Relationship between the phase of coherence and the directionality index of Granger causality. Granger causality was calculated using raw (C) and trial-shifted (D) spike trains. E, Relationship between the phase of coherence and the directionality index of Granger causality calculated for individual frequencies. Horizontal line, Confidence limit (p < 0.05, corrected for multiple comparisons).
解读:A、B 把 21 对的相位谱逐对叠加,原始数据的相位在各频率间更稳定(方差更小,p<0.001),试验平移后相位散乱——稳定的相位意味着两列脉冲之间存在系统性时间滞后。C、D 是散点:相位与因果方向性指数相关(r=0.577, p<0.002),平移后相关性消失(r=−0.215)。E 把该相关按频率逐点计算,只有 40–50 Hz 与 50–60 Hz 显著——恰是相干与因果最强的频段。这张图支撑结果 1 的可靠性检验:三种独立指标(CCG 不对称性、相干相位、因果方向性)给出一致的方向判定。
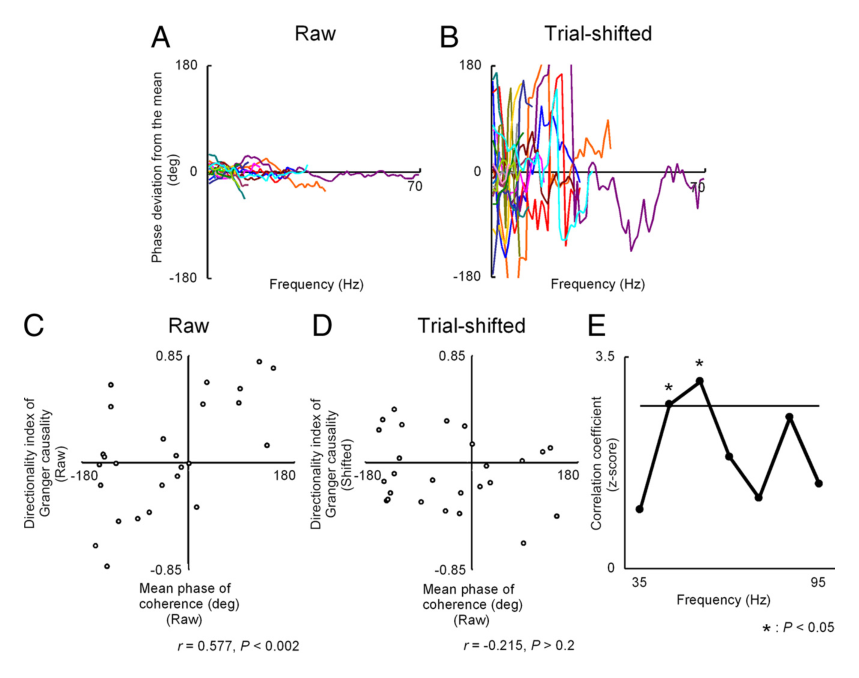
图 4 · 三相动态的时间-频谱展开
原文图注:Figure 4. Temporal dynamics of coherence and Granger causality. A–E, Data from a pair of neurons. A, Temporal dynamics of coherence calculated by sliding a ±125 ms window in 25 ms steps. Time 0 depicts the window in which spikes from −125 to 125 ms from cue onset were included. Data obtained using trial-shifted spike trains were subtracted. B, C, Temporal dynamics of Granger causality in the forward (B) and backward (C) directions. D, Temporal dynamics of directionality. E, Firing rates of the two neurons. Note that the peak firing rates were different between the units (see the left and right of the color bar for units 1 and 2, respectively). F–J, Same analyses as in A–E, but for the population of cell pairs with a displaced CCG peak (n = 21). Pre-units and post-units in J were defined from the CCG peak (see Results).
解读:横轴为相对 cue 出现的时间,纵轴为频率,颜色深浅为强度(均已减去试验平移对照)。A–E 是示范对:相干在整个 cue 期持续(峰 46 Hz、225 ms),前向因果(B)却只两次瞬时增强(250 ms 与 550 ms),后向因果(C)弱且慢,方向性(D)出现两次前向主导。F–J 是群体:F 相干持续升高;G 前向因果早期成分峰 74 Hz、100 ms,快速消退,晚期在 58 Hz、600 ms 回返;H 后向因果仅在低频段缓慢增强;I 方向性有强早峰(78 Hz、125 ms)与弱晚峰(58 Hz、600 ms);J 前/后单元的放电率几乎同形、都在 250 ms 达峰。对比 F–H 与 J 就能看出关键点:因果的快速起伏在放电率上没有对应物。这张图支撑结果 2。
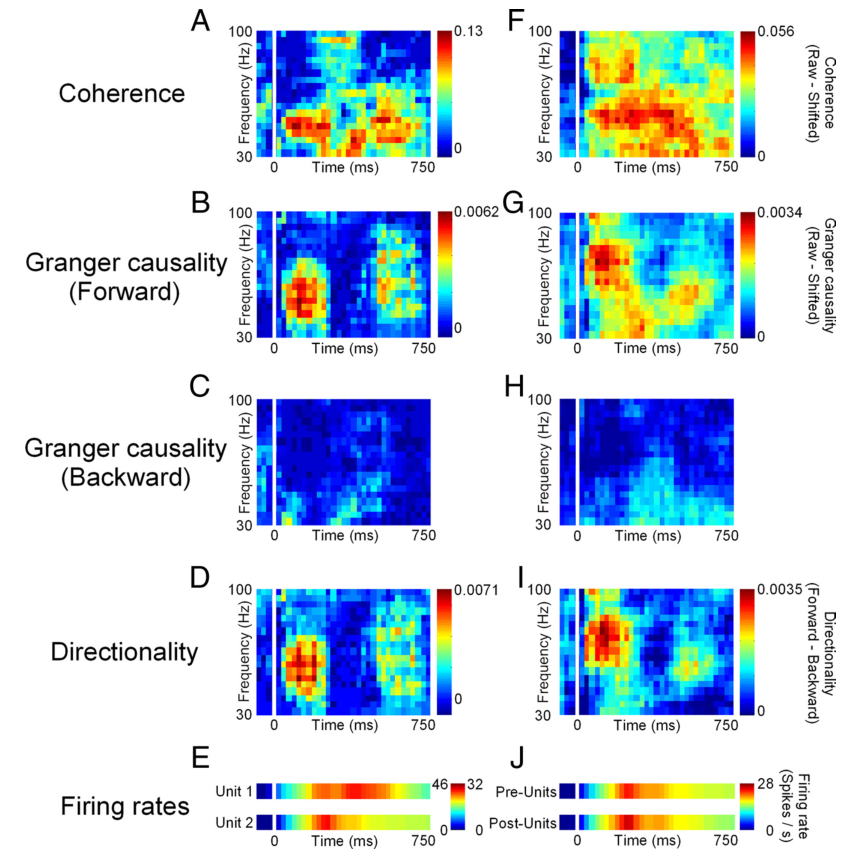
图 5 · gamma 频段的统计检验:三相格局成形
原文图注:Figure 5. Statistical analysis of coherence and Granger causality dynamics in the gamma range. A, Time course of gamma coherence (n = 21). Thick and thin traces are mean and mean±SEM, respectively. Horizontal orange line, Confidence limit (p < 0.05, corrected for multiple comparisons). B, Time course of gamma Granger causality. Horizontal red and blue lines, Confidence limit for the forward and backward directions, respectively. C, Time course of directionality. Horizontal black line, Confidence limit. D, Time course of firing rates for the pre-units and post-units.
解读:把 30–80 Hz 平均后按时间展开(−300 至 1000 ms 左右)。A:gamma 相干在 cue 期持续超阈(峰 275 ms,p<0.001)。B:红色前向曲线两次超阈(150 与 550 ms,p<0.001 / p<0.03),蓝色后向曲线在两者之间缓慢爬升、400 ms 超阈(p<0.004)——"前向—后向—前向"的三相格局在统计上正式确立。C:方向性只有第一个峰显著(150 ms,p<0.02)。D:前/后单元放电率单峰、彼此几乎重合,且没有与前向因果两个峰对应的起伏。这张图是结果 2 与 4(稳健性)的主证:同样的曲线在只用 AI=1.0 的对或换方向定义后仍然成立。
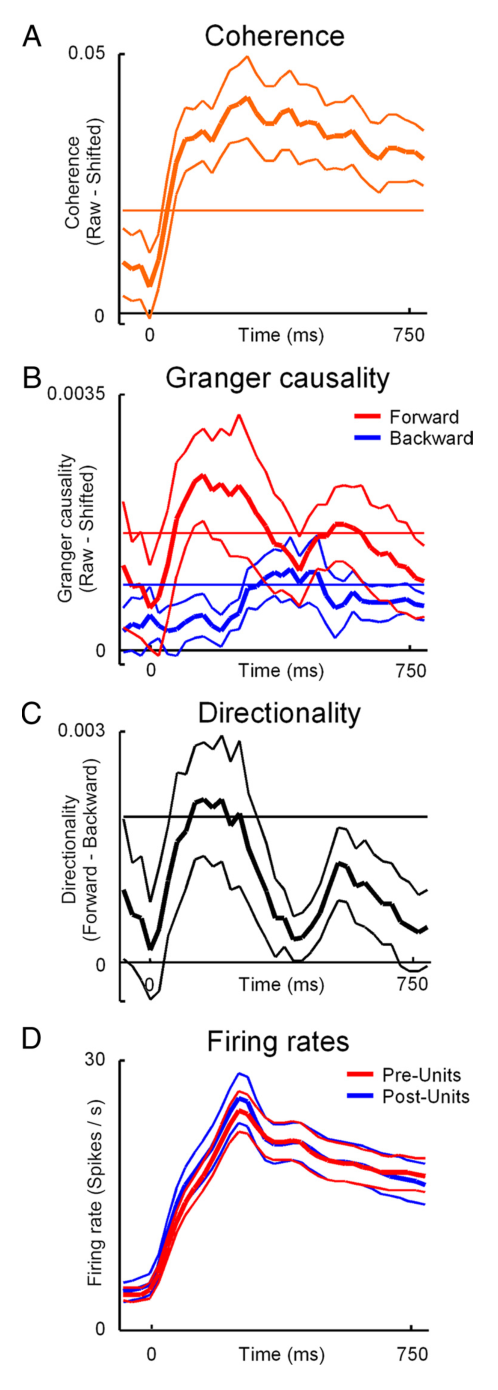
图 6 · 三个成分的峰频率彼此不同
原文图注:Figure 6. Peak frequency of Granger causality. Three significant components (early forward, middle backward, and late forward) were derived from the time course of gamma Granger causality. Each histogram represents the population average (n = 21) of the peak frequency for each component of Granger causality. Error bars represent SEM. The asterisk indicates statistical significance assessed by the paired t test, corrected for multiple comparisons.
解读:三根柱分别给出早期前向、中段后向、晚期前向成分的峰频率(58.5±3.8、47.8±3.2、52.2±3.5 Hz),配对 t 检验(多重比较校正)只有早期前向与中段后向之间的差异显著(p<0.006)。这张图支撑结果 3:三相不只是"同一振荡在时间上拉长",三个成分占据不同的频段,提示它们背后是不同的回路机制——前向快而高频,后向慢而低频。
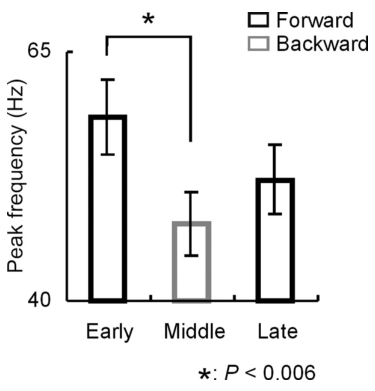
图 7 · 因果动态的刺激依赖:pFO 对 pNFO
原文图注:Figure 7. Stimulus dependence of Granger causality dynamics. Each panel represents population average (n = 21) of Granger causality dynamics in each direction in response to optimal FOs or NFOs. Optimal FO and NFO for a given cell pair were composed of the same set of facial feature-like parts that were arranged in a face-like pattern and in a random pattern, respectively.
解读:四个小面板为 pFO(左列)与 pNFO(右列)诱发的前向(上排)与后向(下排)因果动态的时间-频率图。左列基本复制了图 4 的完整三相格局;右列则只剩刺激出现后不久的早期瞬时前向成分,中段后向与晚期前向回返都消失。由于 pFO 与 pNFO 用的是完全相同的一组部件、只改变空间构型,这一对比把"三相动态"牢牢绑在"特征构型合理"上,支撑结果 5。
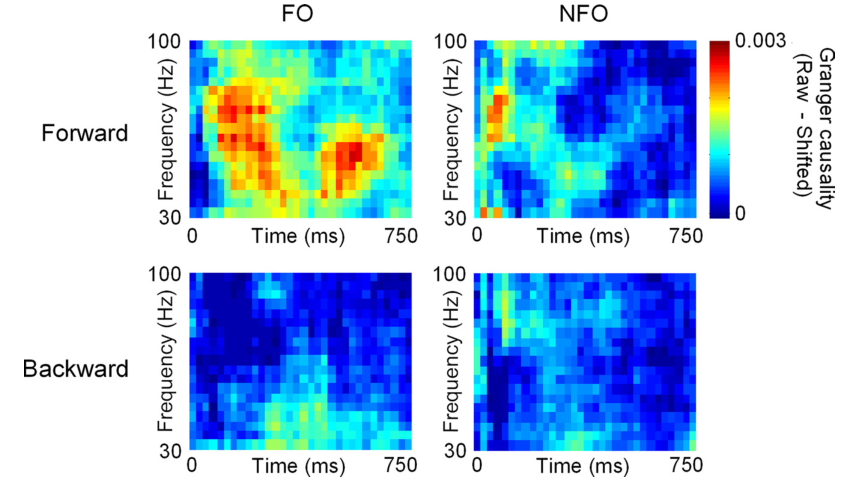
图 8 · 刺激依赖的定量统计
原文图注:Figure 8. Statistical analysis of stimulus-dependent Granger causality dynamics. A, Population average time courses of gamma Granger causality elicited by optimal FOs and NFOs (n = 21). Thin traces are mean±SEM. Red and blue horizontal lines, Confidence limit for forward and backward directions, respectively (p < 0.05, corrected for multiple comparisons). B, Dynamics of population mean firing rate for optimal FOs and NFOs. Thin traces are mean±SEM. C, Population averages of gamma Granger causality at the time point when FO-evoked causality was the maximum in each epoch. Each epoch was defined as that in which FO-derived gamma Granger causality in either direction was significant (see Results). Error bars represent SEM. Asterisks indicate statistical significance assessed by two-way ANOVA followed by LSD.
解读:A 左是 pFO 诱发的前向(红)与后向(蓝)gamma 因果时间进程,右是 pNFO 的对应曲线——pNFO 只有 75 ms 附近一个早期前向峰(p<0.03)。B 显示 pFO 与 pNFO 的群体放电率曲线几乎重叠。C 在三个 epoch 的峰值时刻(150、475、525 ms)做双向方差分析比较:早期与晚期,pFO 前向显著大于 pNFO 前向与 pFO 后向(p<0.04 / p<0.01);中段,pFO 前向大于 pNFO 前向(p<0.01)而后向在两种刺激间无差异(p≥0.2)。B 与 C 的放电率数据(早期 18.3±1.4 对 16.5±1.9 Hz 等,均不显著)共同支撑结果 5 的"非放电率解释"。
讨论
针对实验观察,作者讨论指出:CCG 位移峰对应的前向因果在刺激呈现早期(约 150 ms)迅速涌现且先于放电率峰值,符合低突触数前向串联投射的解剖特征,非参数格兰杰因果已被证实能有效重建解剖学确认的单向连接(Nedungadi et al., 2009);然而,中期慢发育的后向成分(潜伏期约 360 ± 50 ms)表明其神经通路经历了较长时间的突触传递与回路整合,更可能涉及跨皮层层次或局部侧向抑制回路的再加工。晚期前向成分的再次出现,则提示局部皮层微回路存在循环往复的信息振荡与再进入机制。
三相成分在振荡频率上的分异(前向约 47–53 Hz,后向约 34 Hz)与皮层层级信息传递理论高度契合:高频 gamma 振荡通常与前馈驱动投射相关,而较低频振荡常参与反馈调节。与同类研究对比,既往基于 LFP 或 ECoG 的因果研究多聚焦于宏观脑区间(如 V1 到 V4、IT 到前额叶)的交互,本研究则将解析精度推进至单电极记录尺度下的单个神经元对,证实即使在同处于 TE 区且物理距离极近的细胞对之间,信息流向依然展现出清晰的时变反转。局限性方面,作者指出格兰杰因果反映的是统计预测意义上的有向交互,尚未完全排除多突触间接中介的可能性;该三相动态是否普遍存在于任意非面孔物体的加工过程中,仍有待更广谱刺激集的检验。
一句话总结
本研究将非参数格兰杰因果分析应用于猕猴下颞叶皮层单神经元对,证实神经元间的信息流并非静态单向,而是展现出“早期前向驱动 → 中期反馈逆流 → 晚期前向回振”的时序三相动力学。这种动态信息流严格受物体空间构型的调节并与发放率解耦,揭示了皮层微回路处理特征绑定时的动态时程机制。