本研究利用稳态视觉诱发电位(SSVEP)技术,在健康成人中探讨重复启动(repetition priming)的神经机制:对于熟悉物体,刺激重复呈现诱发皮层放电幅度下降(重复抑制,repetition suppression);对于陌生新异刺激,重复呈现则诱发放电幅度上升(重复增强,repetition enhancement)。研究借助 12 Hz 视觉闪烁对刺激实施频率标记(frequency tagging),获取高信噪比的振荡信号并完成脑电源定位。结果表明两种重复效应解离于不同的解剖通路——抑制效应定位于腹侧下颞区,增强效应定位于顶叶皮层,为“既有表征锐化(sharpening)”与“新表征形成(formation)”的双重神经机制提供了电生理学依据。
研究背景
视觉物体的重复暴露通常能提升后续识别速度与准确率,但在神经电生理层面,皮层响应并未呈现单一的调制方向。针对已具备长期语义记忆表征的熟悉物体,重复呈递常引发放电幅度下降,这一现象被“表征锐化”假说解释为非特异性神经元发放减少、调谐组合特异性提升的生理过程。相反,缺乏先验表征的陌生物体在重复后常表现为神经活动增强,被假说解释为大脑对未知几何模式进行整合以“构建新表征”的过程。结合熟悉与陌生刺激的实验设计为解耦这两种效应提供了平台,但此前缺乏关于两者解剖分离的直接电生理证据。
以往基于脑电(EEG)或脑磁图(MEG)的研究常通过诱发 gamma 频段振荡的升降来论证锐化与形成假说,但微眼跳等眼动肌电伪影在 gamma 频段极易造成信噪比干扰;此外,源定位研究多局限于面孔范式,针对普通物体的空间定位相对不足,且常规瞬态 ERP 在时间成分上往往交叠。稳态视觉诱发电位(SSVEP)通过周期性光刺激诱发大脑皮层产生频率锁定的共振信号,能以高信噪比持续追踪特定刺激的感知加工,且对刺激的语义表征属性保持敏感,有助于在避免高频眼动干扰的前提下解析神经可塑性动力学。
本研究将真实物体图像与经过物理傅里叶参数匹配的陌生人造图形以 12 Hz 频率闪烁呈现,在内隐无意识任务中测试重复效应。实验首先通过熟悉与陌生物体的初次呈递对比界定物体知觉表征网络,随后分别定位熟悉物体的重复抑制与陌生物体的重复增强。实验将抑制效应主要定位于腹侧下颞皮层,将增强效应定位于顶叶,支持了存在两种独立神经可塑性通路的假说;然而,顶叶的重复增强亦可能反映单次暴露后无意识情景记忆的偶发提取,且偶极子源定位属于数学逆问题估计,结论在机理上仍需结合外显记忆测验进行审慎评估。
研究思路
实验设计将熟悉—陌生知觉范式与内隐重复启动相结合:刺激库包含 200 张真实日用物体照片(熟悉条件)以及 200 张通过相位打乱生成的匹配图形(陌生条件,保留原图的振幅谱、替换为随机相位谱,以严格匹配空间频率与全局物理特征)。两类刺激各抽取 100 张在随机序列中呈递两次,刺激间隔包含 1 至 2 个不相关干扰刺激,另设 60 张图像作为填充项。所有视觉刺激以 12 Hz 方波占空比在 60 Hz 刷新率显示屏上闪烁呈递 3000 ms,使视觉皮层产生 12 Hz 的特征响应振幅。实验采用与主任务解耦的内隐范式,受试者仅需在随机出现的中央品红圆点时按键以维持视觉注意。
分析流程包含三个逻辑步骤:首先,通过“熟悉初次呈递 − 陌生初次呈递”的统计差异界定物体长时语义知识相关的皮层表征网络;其次,分别评估熟悉与陌生刺激在“初次呈递 vs. 二次呈递”下的电位调制,验证重复抑制与重复增强的存在;最后,运用可变分辨率电磁断层成像(VARETA)在刺激呈递后 1500–2500 ms 的稳态窗口内进行皮层电流密度源定位,检验两种重复效应是否在解剖通路上发生解离,以及其源分布是否内生于初始的物体识别网络。选取 12 Hz 刺激频率旨在规避微眼跳对高频波段的污染,而分析时窗的设定有效隔离了早期瞬态 ERP 成分的混杂。
方法
实验纳入 20 名右利手健康受试者,排除 4 名伪影超标个体后,最终有效样本为 16 人(男性 3 名,平均年龄 21.2 岁)。单试次以 500–800 ms 随机时长的注视十字(视角张角 0.3°)起始,随后图像刺激(视角 7°×7°)以 12 Hz 闪烁呈递 3000 ms,试次间隔保留 800 ms 注视点以提示眨眼。在 30% 的试次中,刺激呈递后 250–2750 ms 的随机时间窗内叠加呈现 120 ms 的品红圆点目标,受试者需尽快按键报告检出。实验分为 5 个组块,每块 92 个试次。脑电采用 128 导 BioSemi ActiveTwo 系统以 512 Hz 采样率记录,同步监测眼电,经 SCADS 算法执行通道伪影校正;连续数据按 −500 至 +3000 ms 分段(基线校正窗设定为 −400 至 −200 ms),采用全脑平均参考,包含目标检测的试次均在脑电分析中予以剔除。
SSVEP 数据分析:采用复数 Morlet 连续小波变换分解时频信号,12 Hz 小波时间窗宽约 160 ms、频带宽度约 2 Hz;选取后枕顶叶电极簇,在 1000–2500 ms(及稳态期 1500–2500 ms)提取 12 Hz 谱振幅平均值,执行 Familiarity(熟悉度)× Repetition(重复状态)的双因素重复测量方差分析及事后配对 t 检验,计算 Cohen's d 效应量。源定位分析:对复数小波系数应用 VARETA 算法,在 MNI 标准脑模板内重建 3244 个空间网格点(网格间距 7 mm)的皮层电流密度分布,在 1500–2500 ms 时间窗内对三个核心对比执行网格级配对 t 检验(显著性阈值设定为 p=0.05)。
主要结果
- 行为学注意力控制指标:圆点目标总体检出率达 96.4%,熟悉图片背景下的检出率表现出上升趋势(97.3% 对比 95.5%,F(1,15)=3.9,p=0.066),反应时显著缩短(547.6 ms 对比 559.4 ms,F(1,15)=6.4,p=0.023);刺激重复未对检出表现产生主效应,亦未见显著交互作用。
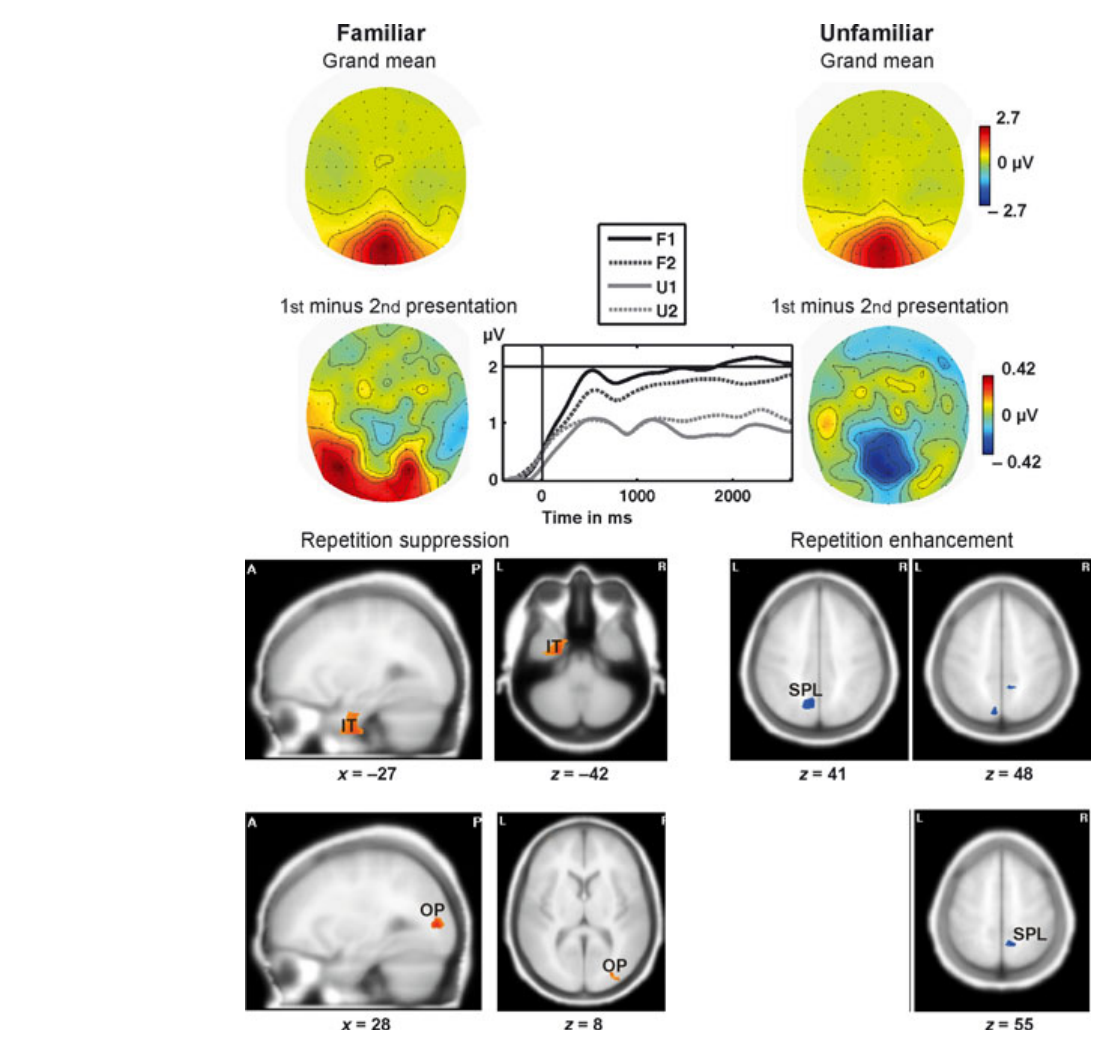
- 头皮电位空间分析:在 1000–2500 ms 窗口内,Familiarity × Repetition 交互作用显著(F(1,15)=4.5,p<0.05)。初次呈递对比中,熟悉物体在后部电极诱发的 12 Hz 振幅显著高于陌生刺激(t(15)=3.6,p=0.003,d=0.89;在 1500–2500 ms 窗内 d=1.07)(图 2 中栏)。针对熟悉物体,重复呈递表现为显著的重复抑制(1000–2500 ms 枕叶电极簇 t(15)=2.9,p=0.011,d=0.73)(图 3 中栏左侧);针对陌生刺激,重复呈现表现为重复增强,且在时程上滞后——在 1000–2500 ms 仅呈边缘显著(p=0.057),在 1500–2500 ms 窗口内于枕顶电极达到显著(p=0.038,d=0.57)(图 3 中栏右侧,原文表 1)。
- 皮层源重建结果:SSVEP 基础响应源集中于双侧舌回与枕极;熟悉与陌生初次呈递的差异表现为一个广泛网络——包括左侧下颞叶皮层、部分枕叶、左侧上顶叶、右侧额中回/纹外皮层,以及双侧额下回、扣带回与中央后回(图 2 底栏,原文表 2),其中左侧颞下回(MNI 坐标 −50, −11, −32)属于腹侧物体语义识别的核心枢纽。
- 两类重复效应在解剖通路上解离:熟悉物体的重复抑制定位于左侧下颞回、左侧海马旁回及右侧枕极(归属于腹侧视觉通路);陌生刺激的重复增强定位于左侧楔前叶及双侧上顶叶(SPL)(图 3 底栏)。两者定位均内生于前述熟悉—陌生差异网络内部,表明重复加工差异源自该网络内部的动力学重组,且增强效应并未涉及腹侧通路。
图注解读
图 1 · 刺激序列示意
原文图注:Fig. 1. Excerpt from a stimulus sequence. Familiar and unfamiliar stimuli were presented twice with one or two intervening stimuli.
图示截取了刺激呈递时序片段:熟悉物体与陌生图形伪随机交替出现,目标刺激间隔 1 至 2 个不相关图形后进行二次呈递。不可预测的间隔设计确保受试者无法形成主动预期,维持内隐被动启动状态;各刺激均以 12 Hz 频率闪烁 3000 ms,形成用于频域分析的稳态诱发响应。
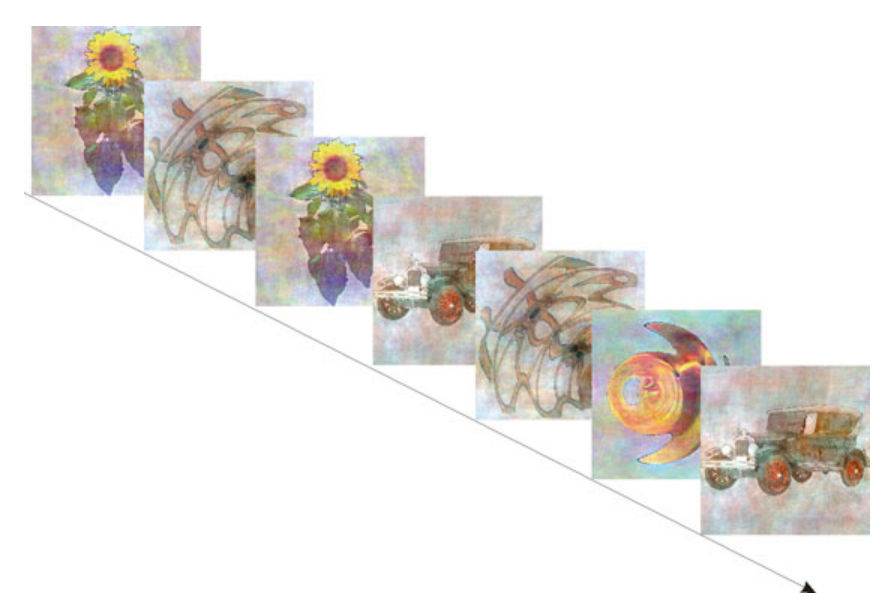
图 2 · SSVEP 总体分布与 familiar–unfamiliar 效应
原文图注:Fig. 2. (Top) Topography averaged across familiarity and repetition in the time-window 1500–2500 ms after stimulus onset. Marked is the posterior electrode cluster on which anovas were based. The dashed line separates this cluster into an occipital and an occipitoparietal cluster, on which post hoc t-tests were based. Source localisation of the SSVEP averaged across familiarity and repetition showing bilateral activations in the lingual gyrus and the occipital pole. (Middle) Difference topography of familiar first presentations minus unfamiliar first presentations (familiar–unfamiliar effect). Time course of the familiar–unfamiliar effect at posterior electrodes. (Bottom) Source localisations of the familiar–unfamiliar effect in the time-window 1500–2500 ms. Significantly higher activations to familiar as opposed to unfamiliar objects are displayed (IT, inferior temporal gyrus; SPL, superior parietal lobe; SOG, superior occipital gyrus; OP, occipital pole; MOTG, middle occipital–temporal gyrus).
顶行呈现了后枕顶电极簇的空间分布及其 12 Hz 基础共振源分布(双侧舌回与枕极);中行展示熟悉初次呈递减陌生初次呈递的差异地形图及后部电极时程曲线,证实熟悉语义表征能显著增强 SSVEP 响应幅度;底行由 VARETA 算法重建该差异效应的皮层网络分布(涵盖左侧下颞回、左侧上顶叶及前额叶皮层等,坐标见原文表 2),为后续将顶叶定位于物体表征网络节点提供了空间基准。
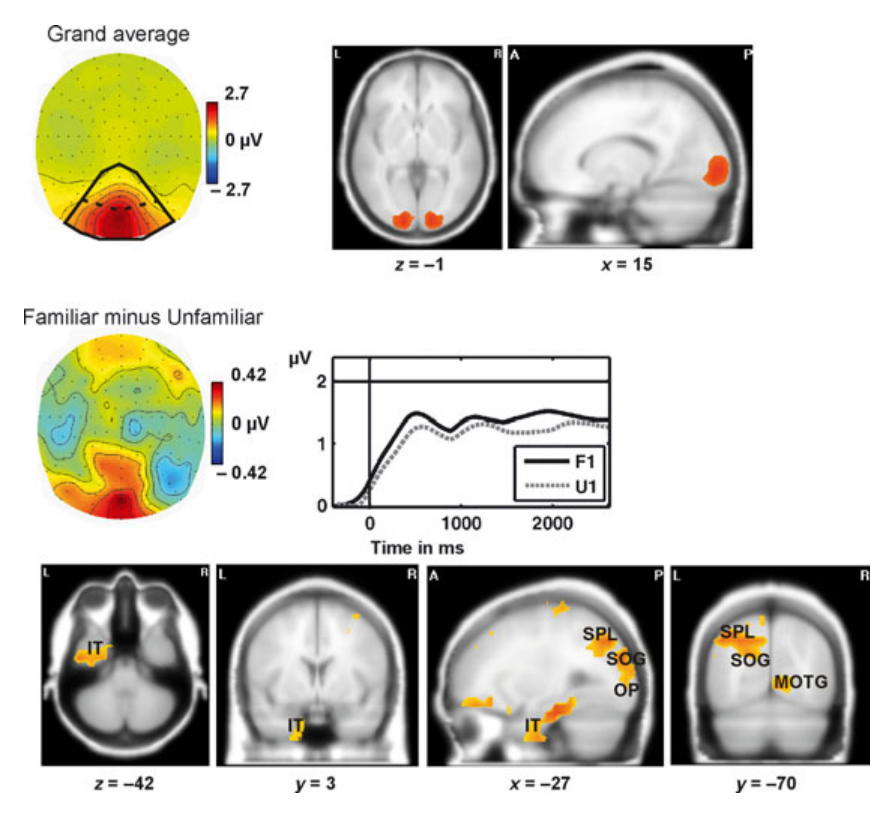
图 3 · 重复抑制与重复增强的分离
原文图注:Fig. 3. The effect of stimulus repetition separately for familiar (left) and unfamiliar (right) objects in the time window of 1500–2500 ms. (Top) Topography averaged across first and second presentations. (Middle) Difference topography of first minus second presentation, indicating repetition suppression for familiar objects and repetition enhancement for unfamiliar objects. The lineplot displays the time course of repetition suppression at significant occipital electrodes for familiar objects and of repetition enhancement at significant occipital–parietal electrodes for unfamiliar objects. (Bottom) Source localisations of the repetition suppression effect for familiar (left) and repetition enhancement for unfamiliar (right) objects. Repetition suppression was found in the left inferior temporal gyrus (IT) and in the right occipital pole (OP). Repetition enhancement was found bilaterally in the superior parietal lobe (SPL).
左右两栏分别展示熟悉与陌生刺激在二次呈递下的空间与源时程特征:顶行为两条件平均电位分布;中行差值地形图显示,熟悉条件呈现初次大于二次的正向差异(重复抑制),陌生条件呈现初次小于二次的负向差异(重复增强),折线图证实陌生条件的增强效应在潜伏期上显著滞后;底行皮层电流密度源定位显示重复抑制局限于左侧下颞叶与枕极,而重复增强集中于双侧上顶叶与楔前叶,证实反向的调制效应源于不同解剖通路的加工分工。
讨论
作者将实验发现系统整合:重复抑制与重复增强的发生源均归属于初次暴露所确立的物体表征网络,表明刺激重复重塑了该网络内部的局灶动力学平衡。熟悉物体的抑制效应局限于左侧下颞回及海马旁皮层,与经典功能磁共振成像中关于表征锐化(sharpening)的理论预期高度吻合,反映了成熟神经组件在二次激活时非核心连接的抑制削减。陌生刺激在腹侧枕颞通路未见抑制效应,直接反驳了将重复抑制单纯解释为视网膜或早期视觉神经元生理疲劳的假设。
对于陌生物体在左侧楔前叶与双侧上顶叶引发的重复增强,作者结合双通路知觉理论,将其初步解释为背侧顶叶系统对陌生新异刺激进行视点依赖的结构整合与三维几何表征建立(表征形成假说)。但作者同时提出了基于记忆系统的替代解释:顶叶皮层在情景记忆提取与外显再认中发挥重要作用,重复增强在潜伏期上的明显滞后提示其更可能涉及自上而下的反馈信号,反映了受试者在二次呈递时对先前感知特征的主动或偶然回溯(记忆提取假说)。研究局限在于:样本量偏小(n=16),脑电生物逆问题估算具有模型空间不确定性,且缺乏同步的外显行为记忆评分以定量甄别知觉形成与记忆提取。实验确立的核心结论在于:表现为同类行为启动增益的现象,其底层神经实现依物体的语义经验储备分化为截然不同的可塑性机制。
一句话总结
本研究利用稳态视觉诱发电位频率标记技术,证实重复启动效应存在神经生理与解剖通路的双重解离:熟悉物体的重复抑制源于腹侧下颞叶的既有表征锐化,而陌生刺激的重复增强由顶叶皮层网络介导,与新结构表征构建或偶发情景记忆提取密切相关。