这篇文章用稳态视觉诱发电位(steady-state visual evoked potential, SSVEP)在健康人脑上同时捕捉重复启动(repetition priming)的两副面孔:熟悉物体重复呈现时皮层反应下降(重复抑制,repetition suppression),陌生刺激重复时反应上升(重复增强,repetition enhancement)。借助 12 Hz 闪烁对刺激做"频率标记",作者获得了信噪比足够高的振荡信号来做源定位,结果显示两种效应不仅方向相反,源还分处不同脑区——抑制落在腹侧下颞区,增强落在顶叶。它为"锐化 vs 形成"这两种机制假说提供了避开 gamma 伪影争议的电生理证据。
研究背景
重复呈现一个物体,人对它的识别会更快更好,这就是重复启动;其神经层面常表现为放电减少(repetition suppression),被 Wiggs 与 Martin 解释为代表物体的细胞组件(cell assembly)内部的"锐化"机制——响应收窄到最优特征、总活动下降。而陌生刺激没有现成的物体表征可锐化,重复反而引起放电增加(repetition enhancement),被推测是皮层物体表征"形成"过程的表现。熟悉-陌生范式(familiar–unfamiliar paradigm)正是把这两种情形并置对照的经典设计,两者的脑反应之差被视为物体表征激活的指标。
当时已有两类工作,但各有缺口。一是基于诱发 gamma 节律(>30 Hz)的 EEG(脑电)/MEG(脑磁图)研究(Gruber 与 Müller 2005 等),曾把熟悉物体重复时的 gamma 下降解读为锐化、陌生刺激重复时 gamma 上升解读为形成;然而 2008 年 Yuval-Greenberg 等指出 EEG 记录的 gamma 活动部分来自微眼跳伪影,使已发表结果的可解释性打了折扣。二是源定位证据只对面孔刺激存在(Henson 等 2000),物体刺激尚无。此外事件相关电位(ERP)研究无法区分熟悉与陌生物体的重复启动效应。SSVEP 是皮层对闪烁刺激的同频振荡响应(Regan 1989),对被标记刺激的加工提供连续测量,且不受上述 gamma 伪影问题困扰——作者团队此前已证明 SSVEP 对刺激的语义内容敏感、熟悉物体能驱动 SSVEP(Kaspar 等 2010),因此用它在物体刺激上同时给出两种机制的证据并定位其皮层来源,正好补上这些缺口。
研究思路
设计上是熟悉-陌生范式与重复启动的叠加:真实物品照片(熟悉)与经光学滤镜处理的同源图像(陌生,通过"取熟悉图的振幅谱、配陌生图的相位谱"来匹配空间频率等物理参数,Busch 等 2006),各 200 张,从中各随机取 100 张以随机顺序呈现两次、中间隔 1–2 个其他刺激,另 60 张作填充。所有刺激以 12 Hz 在 60 Hz 显示器上闪烁 3000 ms——这样每个刺激都携带一个稳定的 12 Hz 频率标签,皮层在同频处的振幅即为 SSVEP。重复与任务无关(被动重复启动),被试只需偶尔检测图片上叠加的品红色圆点以维持注意。
分析逻辑分三步,与三个待回答的问题一一对应:先用"熟悉首现 − 陌生首现"的对比定位物体表征网络(差异即语义知识激活之处);再分别对熟悉、陌生刺激做"首次 − 重复"对比,寻找重复抑制与重复增强的电生理表现;最后用 VARETA(variable resolution electromagnetic tomography,可变分辨率电磁断层成像)在 1500–2500 ms 时间窗内对三种效应做源重建,检验两个关键预期:两种重复效应是否落在不同脑区、它们是否都属于首现对比所确定的物体识别网络。选 12 Hz 而非 gamma 频段,就是为了绕开微眼跳污染 gamma 结果的问题;时间窗选 1000–2500 ms 以避免 SSVEP 与常规 ERP 成分的重叠。
方法
20 名右利手被试参加,4 人因 EEG 伪影过多被剔除,最终 16 人(3 男,平均 21.2 岁)。每试次为随机 500–800 ms 注视基线(十字约 0.3°),随后图片(约 7°×7°,浅灰背景)闪烁呈现 3000 ms,之后十字保留 800 ms 供眨眼;30% 试次在 250–2750 ms 间随机位置叠加品红点 120 ms,被试按键报告检出。共 5 个区组、每区组 92 试次,区组末反馈检出率。EEG 用 128 导 BioSemi Active Two 以 512 Hz 采集,含垂直/水平眼电;以 SCADS(statistical correction of artifacts in dense array studies,密集阵列 EEG 伪影统计校正)方法做伪影校正,分段为 −500 至 +3000 ms(基线 −400 至 −200 ms),全脑平均参考。含圆点的试次不进入分析。
SSVEP 分析:用 Morlet 小波族(1–30 Hz,约 12 周/波)分解,12 Hz 小波时长约 160 ms、带宽约 2 Hz;对后部电极(图 2 顶行标出的簇)在 1000–2500 ms(补充分析 1500–2500 ms)取 12 Hz 平均振幅,做 Familiarity × Repetition 重复测量 ANOVA 及事后 t 检验,并计算效应量 d。源定位:把 SSVEP 变换到频域后对复数小波系数施加 VARETA,逆解为 MNI(Montreal Neurological Institute,蒙特利尔神经学研究所)平均脑上 7 mm 间距、3244 个格点的电流密度分布,三个对比(熟悉−陌生首现、熟悉首现−重复、陌生首现−重复)分别在 1500–2500 ms 内做 t 检验,阈值 P=0.05。
主要结果
- 行为控制良好:圆点总体检出率 96.4%,熟悉图片上的检出率有更高趋势(97.3% 对 95.5%,F1,15=3.9,P<0.066),反应时显著更快(547.6 对 559.4 ms,F1,15=6.4,P<0.023);重复对行为无显著影响,两因素无交互。
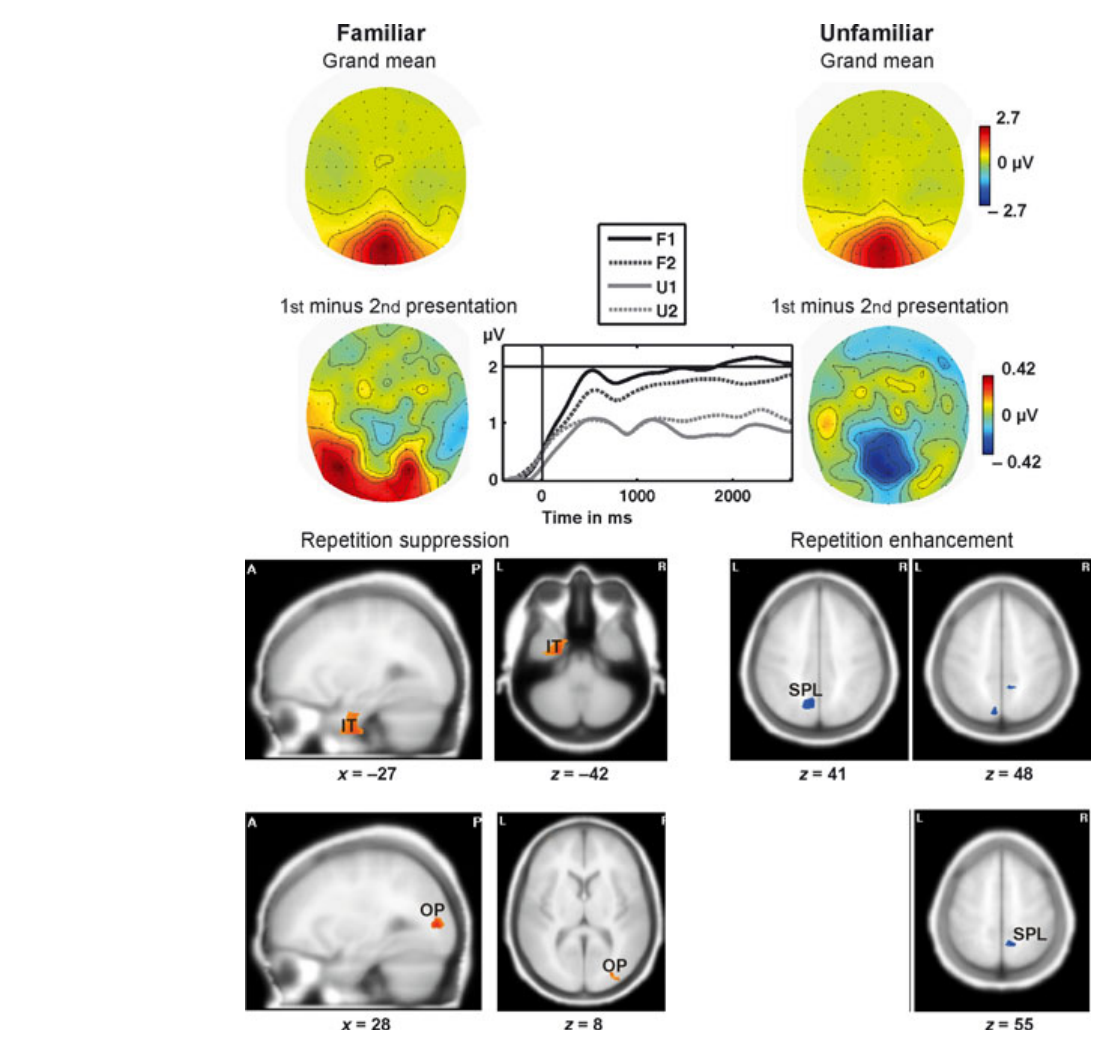
- 电极空间上,Familiarity × Repetition 交互显著(F1,15=4.5,P<0.05,1000–2500 ms)。首现对比中熟悉物体在后部各电极引出更高的 SSVEP 振幅(t15=3.6,P<0.003,d=0.89;1500–2500 ms 内 d 达 1.07)(图 2 中行)。熟悉物体呈重复抑制(1000–2500 ms 枕区 t15=2.9,P<0.011,d=0.73)(图 3 中行左),陌生物体呈重复增强,且出现得更晚——1000–2500 ms 仅达边缘(P=0.057),1500–2500 ms 在枕顶电极显著(P<0.038,d=0.57)(图 3 中行右,表 1)。
- 源定位给出三张图:SSVEP 总体为双侧舌回与枕极;熟悉−陌生(familiar–unfamiliar)效应是一个广布网络——左侧下颞皮层、部分枕叶与左侧上顶叶,右侧中额与纹外区,以及双侧下额回、扣带与中央后回(图 2 底行,表 2),其中左下颞回(MNI −50, −11, −32)等正是已知的物体表征相关区。
- 两种重复效应源分离:熟悉物体的重复抑制定位于左下颞回、左海马旁回区与右枕极(腹侧流);陌生物体的重复增强定位于左楔前叶与双侧上顶叶(SPL)(图 3 底行)。两者都是 familiar–unfamiliar 网络的组成部分,说明重复确实改变了物体识别网络内部的皮层动力学,而增强并未落在与抑制相同的腹侧通路上。
图注解读
图 1 · 刺激序列示意
原文图注:Fig. 1. Excerpt from a stimulus sequence. Familiar and unfamiliar stimuli were presented twice with one or two intervening stimuli.
解读:这张小图展示刺激流的一小段:熟悉与陌生图像交替出现,同一张图在隔 1–2 个其他刺激后重复一次。要点是重复以"随机插入、间隔不定"的方式进行,被试无法预测哪些图会重复,保证重复效应是内隐的(任务无关);结合正文可知每张图闪烁 3 秒、携带 12 Hz 频率标签,这就是后文所有 SSVEP 测量的刺激背景。
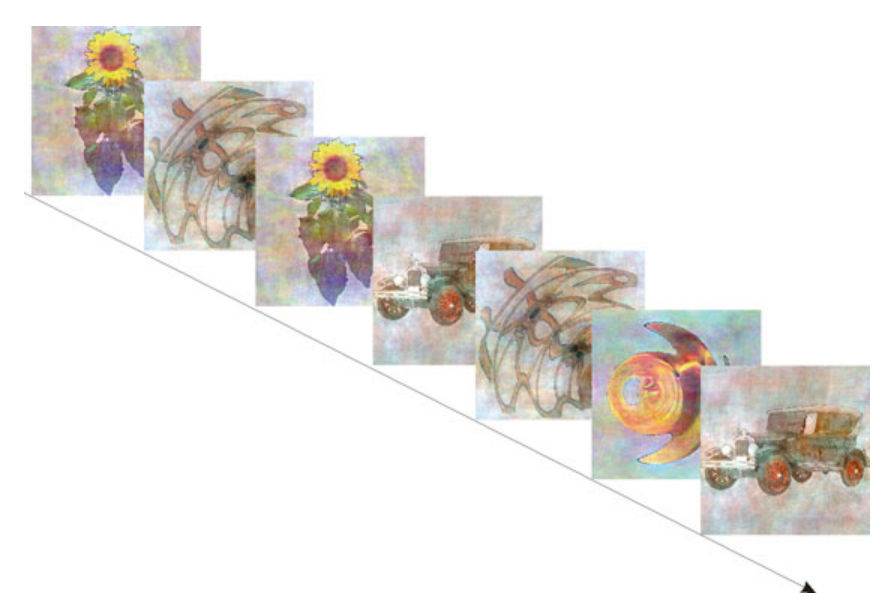
图 2 · SSVEP 总体分布与 familiar–unfamiliar 效应
原文图注:Fig. 2. (Top) Topography averaged across familiarity and repetition in the time-window 1500–2500 ms after stimulus onset. Marked is the posterior electrode cluster on which anovas were based. The dashed line separates this cluster into an occipital and an occipitoparietal cluster, on which post hoc t-tests were based. Source localisation of the SSVEP averaged across familiarity and repetition showing bilateral activations in the lingual gyrus and the occipital pole. (Middle) Difference topography of familiar first presentations minus unfamiliar first presentations (familiar–unfamiliar effect). Time course of the familiar–unfamiliar effect at posterior electrodes. (Bottom) Source localisations of the familiar–unfamiliar effect in the time-window 1500–2500 ms. Significantly higher activations to familiar as opposed to unfamiliar objects are displayed (IT, inferior temporal gyrus; SPL, superior parietal lobe; SOG, superior occipital gyrus; OP, occipital pole; MOTG, middle occipital–temporal gyrus).
解读:顶行同时交代了电极选择与 SSVEP 的解剖基线:后部电极簇(虚线分出枕区与枕顶区两块)是 ANOVA 与事后 t 检验的区域,SSVEP 的总源在双侧舌回与枕极——典型的视觉稳态响应分布。中行的差异拓扑(熟悉首现减陌生首现)与时程曲线显示熟悉刺激在整段后部皮层引出更强振幅,这是"语义内容被 SSVEP 捕捉"的直接表现。底行的 VARETA 源图给出该效应的广布网络(左下颞、左上顶、右中额、双侧扣带等,坐标与显著性见表 2),确立了两块基石:物体识别网络的存在,以及顶叶属于这一网络——后者正是解读图 3 重复增强定位的前提。
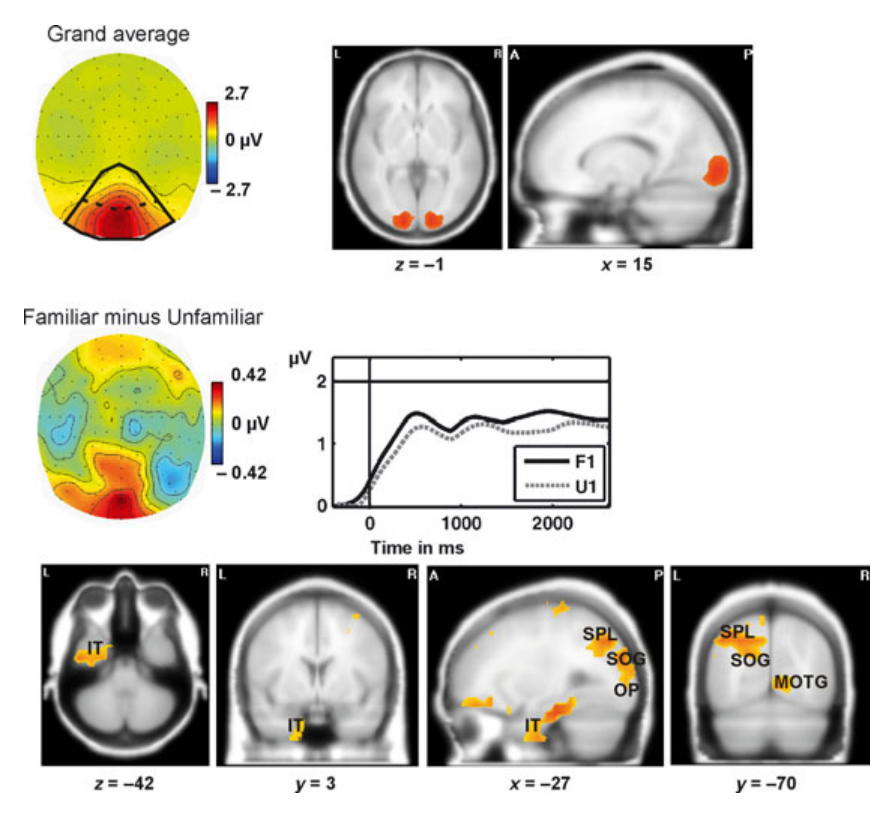
图 3 · 重复抑制与重复增强的分离
原文图注:Fig. 3. The effect of stimulus repetition separately for familiar (left) and unfamiliar (right) objects in the time window of 1500–2500 ms. (Top) Topography averaged across first and second presentations. (Middle) Difference topography of first minus second presentation, indicating repetition suppression for familiar objects and repetition enhancement for unfamiliar objects. The lineplot displays the time course of repetition suppression at significant occipital electrodes for familiar objects and of repetition enhancement at significant occipital–parietal electrodes for unfamiliar objects. (Bottom) Source localisations of the repetition suppression effect for familiar (left) and repetition enhancement for unfamiliar (right) objects. Repetition suppression was found in the left inferior temporal gyrus (IT) and in the right occipital pole (OP). Repetition enhancement was found bilaterally in the superior parietal lobe (SPL).
解读:左右两栏分别是熟悉与陌生物体的重复效应,结构相同:顶行为两条件平均拓扑,中行为"首次减重复"差异拓扑与时程,底行为源定位。读法关键在符号方向:熟悉栏的差异为正(首次 > 重复,即抑制),分布在枕区与枕颞区;陌生栏的差异为负(重复 > 首次,即增强),集中在更局限的枕顶区。中行折线还揭示时程不对称——陌生刺激的增强比熟悉的抑制出现得晚。底行的源图给出全文最核心的发现:抑制源在左下颞回(腹侧流)而增强源在双侧上顶叶(背侧/顶叶),不同的头皮拓扑和估计源分布支持两种重复效应涉及不同的皮层加工成分,与锐化和形成/提取两类解释一致,但不足以证明两个独立机制。
讨论
作者把三组结果串成一条链:首先,重复抑制与重复增强都在源重建中得到了确认,且两者的源都属于熟悉−陌生对比所识别的物体识别网络——重复改变的是这个网络内部的皮层动力学。熟悉物体的抑制落在枕极与左海马旁回区(及左下颞回),与既往 fMRI、EEG/MEG 证据一致,支持"重复抑制是物体表征细胞组件内部锐化机制"的观点(Wiggs 与 Martin 1998;Grill-Spector 等 2006;Schacter 等 2007)。陌生物体在枕区与枕颞区没有抑制,这直接排除了"重复抑制只是早期视觉区神经元感觉适应/疲劳"的简单解释——若是疲劳,熟悉与陌生理应同样受累。增强落在左楔前叶与双侧上顶叶,与抑制不同源;结合 Thoma 与 Henson 2011 的双流物体表征框架(腹侧分析组成特征、顶叶访问视点依赖的结构表征),作者将其解读为陌生物体"结构性物体表征的形成"。
但作者同时给出一个严肃的替代解释:记忆研究表明顶叶在情景记忆提取中作用关键(Nyberg 等 2000;Wagner 等 2005),重复增强通常与再认/外显记忆相连,故顶叶增强也可能反映单次暴露后对陌生物体结构信息的偶然提取(Schendan 与 Stern 2008;Schendan 与 Kutas 2007 的 LPC 证据与之相似——且该成分只在知觉上完全相同的重复时出现、不依赖概念知识)。"形成"与"偶然提取"有许多相似之处、并不互斥,本文无法裁决;增强比抑制更晚的时程则提示它更像一个较慢的反馈(自上而下记忆)过程而非快速前馈分类。局限方面:被试数不多(n=16)、源定位本身是逆问题的间接推断、且实验未纳入主观记忆测量来区分形成与提取。文章最终把结论收敛为:明确写成“在既往行为启动框架下,本文观察到两类方向相反的SSVEP重复效应;本实验未直接测量物体识别启动,因此不能建立这些神经效应与行为改善之间的对应关系”。
一句话总结
这篇短文的妙处在于用一个设计同时回答了两个问题:重复抑制与重复增强确实是两回事——方向相反只是表象,源在腹侧与顶叶的分家才是实质;而 SSVEP 的频率标记让这一区分避开了 gamma 伪影的老坑。至于顶叶增强到底是"新表征形成"还是"单次暴露后的偶然提取",作者自己也没敢下定论——我认为这种把两种解释并排摆出来的写法,比硬给一个结论更符合证据的现状。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '熟悉—陌生差异即语义知识激活。', 'reason': '该对比混合语义、结构、注意及其他熟悉度相关过程。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '未观察到陌生刺激抑制直接排除了感觉适应或神经元疲劳。', 'reason': '阴性头皮EEG结果只能削弱一种简单适应解释,不能因果排除适应。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '腹侧与顶叶源分离证明了两个独立神经机制。', 'reason': 'EEG逆解的空间差异支持加工成分分离,但不能建立独立机制或细胞层面的锐化与形成。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '本文证明两种机制产生相似的行为启动效果。', 'reason': '研究未测量物体识别启动,圆点检测也没有重复效应。'} -> 评注:
- 补充要点: : (第 4 页)
- 补充要点: : (第 5 页)
- 补充要点: : (第 5 页)
- 补充要点: : (第 5 页)
- 补充要点: : (第 6 页)
- 补充要点: : (第 3 页)