该研究构建了一个由四个子网络构成的下颞叶皮层(inferior temporal cortex, IT)多层神经网络计算模型,系统重现并解释了电生理实验中观察到的灵长类 IT 神经元面孔知觉动态反应特征:包括同步放电、与平均放电率解耦的尖峰互相关、熟悉面孔更短的反应潜伏期以及由粗到细(coarse-to-fine)的层级特征加工。模型表明,基于 Hebb 规则建立的层间突触可塑性与 Hodgkin–Huxley 神经元亚阈值膜电位非线性动力学相结合,能够在平均放电率维持不变的前提下重构神经元的放电时序。
研究背景
灵长类腹侧视觉通路承担物体与面孔识别功能:视网膜信号依次经 V1、V2 与 V4 处理局部边缘、朝向与曲率特征,最终由 IT 皮层形成对复杂物体的稀疏表征。既往电生理记录发现了一系列非线性的动态反应现象:Hirabayashi 和 Miyashita(2005)报道,面对完整面孔与打乱部件的非面孔刺激,同一对 IT 神经元的平均放电率基本相当,但面孔刺激诱发的动作电位互相关(spike correlation)显著更强;Sugase 等(1999)发现单个 IT 神经元在刺激呈现初期传递整体类别信息,随后传递个体身份与表情等精细信息;Kiani 等(2005)观察到 IT 神经元对人类面孔与动物面孔的放电幅度持平,但对高熟悉度的人脸具有更短的反应起始潜伏期。此外,神经经验可塑性能够显著调节 IT 神经元的特征调谐。
传统神经计算模型在解释上述实验现象时面临两项理论瓶颈:其一,放电相关性与放电率解耦的机制不明确。常用的线性积分发放模型(如 leaky integrate-and-fire, LIF)在突触输入增加时通常会同时推高平均放电率与相关性,难以单独解释放电率不变时的相关性增强;其二,以往理论多将经验学习简化为神经元发放阈值或增益幅度的静态调节,缺少探讨长期经验如何塑造突触网络放电时序的动态计算框架。本研究旨在建立一个统合模型以阐释上述多重实验事实的生物物理机制。
研究思路
作者提出了“多尺度特征分层编码 + 经验依赖的 Hebb 突触学习 + 亚阈值非线性膜电位动力学”的计算框架。鉴于面孔刺激兼具鲜明的全局构型与明确的局部组件(眼、鼻、嘴),模型设定 V4 层的三个空间分辨率通道(粗、中、细)分别向 IT 对应的子层(ITB、ITM、ITF)提供整体轮廓、部件空间排布及局部曲率信息,各子层投射汇聚至面孔识别层(ITFR)形成完整表征。通过调节面孔刺激与非面孔对照的呈现概率,利用 Hebb 突触学习规则演化层间连接。
在生物物理机制上,模型选取 Hodgkin–Huxley(HH)神经元方程而非简化的 LIF 模型。HH 神经元中钾离子通道在亚阈值区间的微弱开放会产生局部抑制,诱发阈下膜电位振荡,使得神经元动作电位发放对突触输入幅度的敏感性较低。在此动力学特性下,经验强化的高密度突触连接主要表现为动作电位的时序同步化与高互相关,而不会线性推高平均放电率,从而在物理机制上复现电生理记录中的率相关解耦。
方法
网络架构由输入层(V4B、V4M、V4F)与四个下颞叶皮层子网(ITB、ITM、ITF、ITFR)构成。ITB 无神经元簇结构,负责整脸粗轮廓编码;ITM、ITF 与 ITFR 每层由若干个功能单元组成,每个单元包含 10 个具有 ±10% 膜电导变异的 HH 神经元;层间建立兴奋性突触连接,ITFR 内部包含侧向抑制连接以实现特征竞争。V4 至 IT 各层的初始映射通过 Kohonen 自组织网络确定:ITB 编码面孔低频轮廓,ITM 编码注视点周边的部件相对空间坐标,ITF 编码特定注意焦点下局部部件的曲率细节。
训练刺激库包含 2 个结构正常的面孔对象(FO1、FO2)、2 个部件打乱排布的非面孔对象(NFO1、NFO2)以及 1 个猫脸动物面孔对象(AFO)。在学习阶段,刺激呈现概率比例设定为 7:1:2(FO:NFO:AFO),每个刺激呈现 400 ms,注意焦点每 100 ms 转移一次,总训练时长为 25 s。层间突触权重依据 Hebb 学习规则在线更新(式 9),学习率与当前权重呈自适应正反馈。神经元输出分析采用滑动窗尖峰互相关分析(窗宽 500 ms,步长 100 ms);针对 ITF 神经元对的互相关峰值进行 z-score 转换,分别在刺激呈现后 0–300 ms 与 300–600 ms 两个时段比较面孔与非面孔条件的统计差异。
主要结果
-
学习使 IT 神经网络形成面孔特异性的同步放电: 经过训练后,编码 FO1 相关特征的 ITM 与 ITF 神经元对在刺激呈现后 60–190 ms 内以约 80 Hz(伽马频段)呈现精确的逐对同步放电;而在输入 NFO1 时,相同神经元对的 9 对动作电位中仅有约 2 对呈现随机同步。同步化水平随训练进程递增,其机制源于高频呈现导致的正反馈 Hebb 强化(图 4、图 5)。ITFR 反馈至下游的自上而下投射进一步提升了互相关峰值(图 6)。
-
尖峰相关性与平均放电率发生解耦: 编码眼部与鼻部的 ITF 神经元对在面对面孔刺激 FO1 时呈现显著的互相关峰值(伴有约 2 ms 的生理时滞),在面对非面孔 NFO1 时缺乏高相关性,而两条件下的平均放电率保持一致。时序演变显示,面孔刺激诱发的互相关在 500 ms 内迅速达到高位平台期,非面孔刺激直至 600 ms 才微弱上升(图 7、图 8);z-score 峰值差异仅在 0–300 ms 早期时段达显著水平,此时放电率无构型依赖性(图 9),准确复现了 Hirabayashi 和 Miyashita(2005)的发现。
-
反应起始潜伏期差异有效编码熟悉度: 面对呈现频率更高的面孔刺激(FO),ITFR 神经元诱发放电的潜伏期显著短于低频呈现的动物面孔(AFO);群体散点分布显示潜伏期明显偏向对角线下方(FO 显著更快),而两者的平均放电率沿对角线均匀分布(无显著差异)。这一时序差异源于 FO 建立了更强的 ITF→ITFR 前馈突触传导效力,与 Kiani 等(2005)的记录一致(图 10、图 11、图 12)。
-
神经元呈现由粗到细的层级动力学: 在 FO1 呈现后早期(约 50 ms 内),FO1 敏感与 FO2 敏感的 ITFR 神经元均被来自 ITB 的低频轮廓信号初步激活;随后来自 ITM 与 ITF 的精细前馈信号强化了 FO1 神经元的放电,并通过侧向抑制将 FO2 神经元压制至静息状态。计算机模拟阻断 ITB–ITFR 连接(切断自上而下预测通路)会导致 ITFR 对 FO1 的识别放电显著滞后(图 13、图 14)。
-
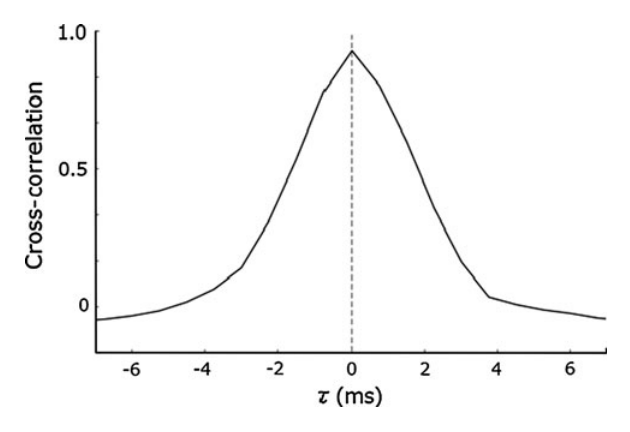
亚阈值膜电位振荡介导快速面孔判别: 在仅接受 ITFR 自上而下反馈信号的条件下,ITM 与 ITF 神经元对的亚阈值膜电位呈现高度的时间同步性。自上而下的预测信号诱发阈下膜电位振荡并将其维持在贴近放电阈值的水平,一旦前馈感觉输入到达即可迅速诱发放电,构成了快速识别的生理基础(图 15)。
图注解读
图 1 · 四层 IT 网络的整体架构
原文图注:Fig. 1 The neural network model of IT cortex. The ITX (X = B, M, and F) receive the output of V4X with different spatial resolutions. ''B'', ''M'', and ''F'' mean the broad, middle, and fine spatial resolutions, respectively. The ITFR (face recognition; FR) has neurons responding to different faces. The unit of ITM, ITF, and ITFR contains a cluster of neurons, which is depicted by the network consisting of the small circles
该图为整体网络结构图:输入层 V4 按粗(B)、中(M)、细(F)三种空间分辨率提取面孔特征,对应输入 ITB(整脸轮廓)、ITM(部件相对位置)与 ITF(局部曲率),三者汇聚至面孔识别层 ITFR。ITM、ITF 与 ITFR 内部单元由多个电导具有随机扰动的 HH 神经元聚类构成,层间建立双向兴奋性连接,ITFR 包含侧向抑制连接。
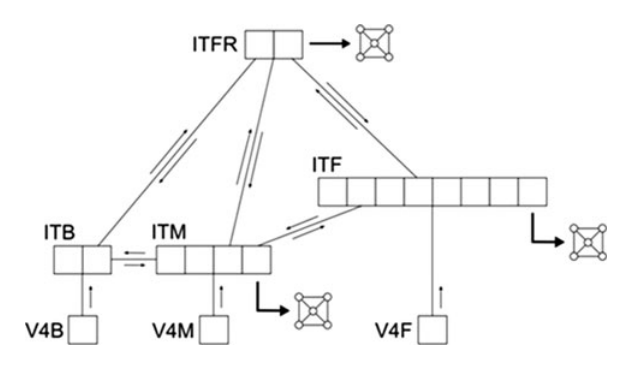
图 2 · V4 三种分辨率的编码内容
原文图注:Fig. 2 Representation of face features in V4X (X = B, M, and F). a Face image on the retina (left), and the network model of V4B (right). The activated neurons are depicted by gray-colored cells. b Face image on the retina (left) and the network model of V4M (right). The small square in the face image indicates the point to which attention is directed. The V4M encodes the information about the arrangement of the face part around the attention point. c Image of face part (left) and the network model of V4F (right). The network has hypercolumns, which contains columns of neurons sensitive to different local curvatures. The V4F magnifies the local features of face part selected by attention
左列为视网膜输入图像,右列为对应 V4 子层的响应模式:(a) V4B 阵列以二值激活表征面孔的全局边界轮廓;(b) 方框标定当前注视焦点,V4M 编码焦点周边部件的空间拓扑坐标;(c) V4F 包含多个对特定局部曲率调谐的高阶超柱,用于细致放大注意选中的局部器官细节。该图定义了多尺度特征抽取的物理参数。
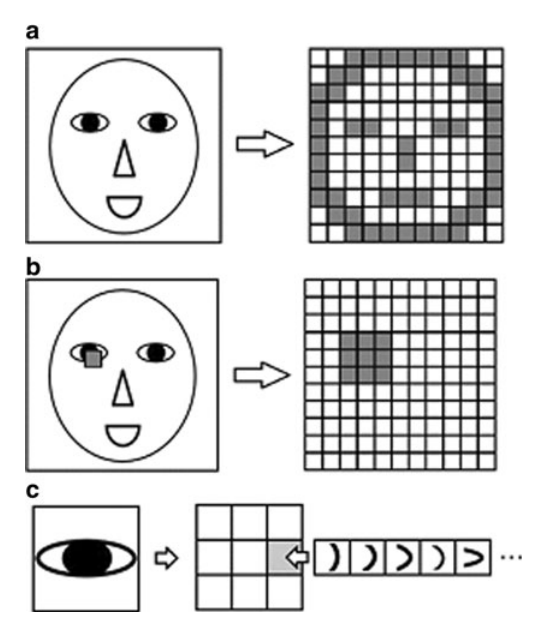
图 3 · 学习用刺激集
原文图注:Fig. 3 The images used in the learning. a Face objects (FOs; FO1, FO2). b Non-face objects (NFOs; NFO1, NFO2). c Animal face object (AFO)
该图展示了模拟实验所用的三组几何测试刺激:(a) 包含标准结构排布的面孔图像 FO1 与 FO2;(b) 部件要素相同但相对位置随机重排的非面孔图像 NFO1 与 NFO2;(c) 猫脸动物面孔 AFO。刺激呈现频率严格按 7:1:2 设定,分别用于检验特征构型(FO vs NFO)与呈现熟悉度(FO vs AFO)对网络动态的独立调制效应。
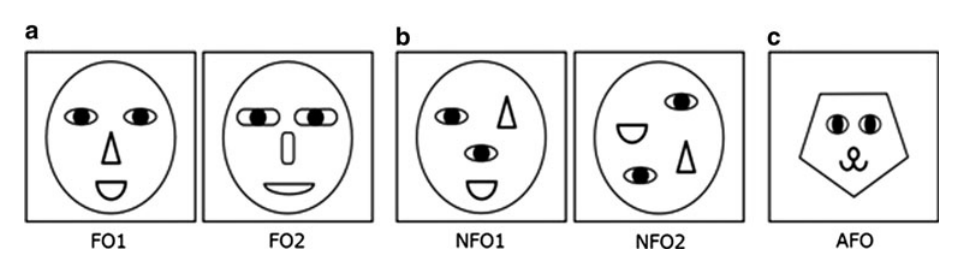
图 4 · 学习后 ITM–ITF 对的同步放电
原文图注:Fig. 4 Time courses of spiking of a pair of ITM and ITF neurons. Responses of these neurons to FO1 (a) and NFO1 (b). The upper and lower panels in a and b indicate the spike patterns of ITM and ITF neurons, respectively
上下子图分别对应 ITM 与 ITF 神经元的动作电位发放点图:在面孔条件 FO1 下(a),两神经元在 60–190 ms 内以约 80 Hz 呈现精确的锁相同步放电;在非面孔条件 NFO1 下(b),总动作电位数基本持平,但同步动作电位显著减少。该图证实了经验学习在平均放电率不变的前提下可诱导出强烈的同步放电模式。
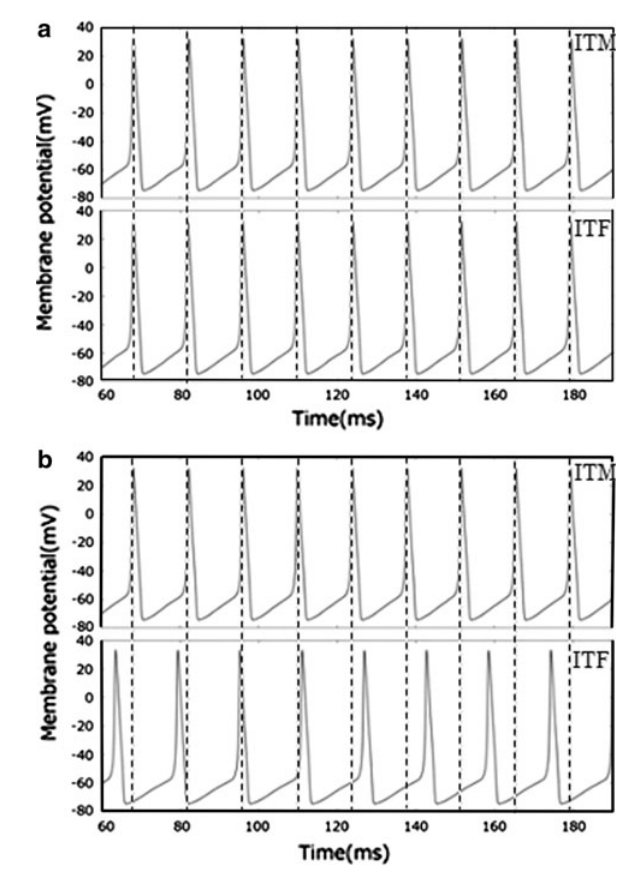
图 5 · ITM→ITF 突触权重的时间演化
原文图注:Fig. 5 Temporal variations of the weights of synaptic connections from ITM to ITF neurons. The solid and dashed lines represent the synaptic weights involved in the representations of FO1 and NFO1, respectively
实线指示 FO1 特征相关突触权重的动态变化曲线,虚线指示 NFO1 相关突触权重。随着训练推进,实线呈现持续上升趋势,虚线保持平缓。该图说明面孔刺激的高频出现诱发了正反馈 Hebb 学习,为图 4 中观测到的同步放电提供了结构基础。
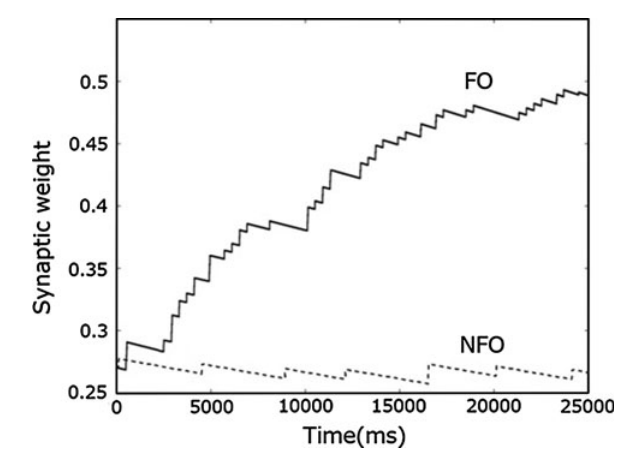
图 6 · 自上而下信号增强同步性
原文图注:Fig. 6 Cross-correlations of spikes of an ITM and ITF neuron pair. The solid and dashed lines indicate the cross-correlations in the presence and in the absence of top–down signal from ITFR, respectively. The presence and absence of top–down signal are also depicted with ''TDS(?)'' and ''TDS(-)'' on the graph, respectively. The vertical dashed line indicates the line of s = 0, which represents the correlation of synchronicity
横轴为时间滞后参数 s,纵轴为尖峰互相关系数,中线 s = 0 指示精确同步放电。在存在来自 ITFR 的自上而下调制信号时(实线 TDS(+)),相关主峰幅度显著高于切断反馈条件(虚线 TDS(−))。该图表明中等强度的皮层反馈对底层神经元特征绑定的时序精度具有显著增益作用。
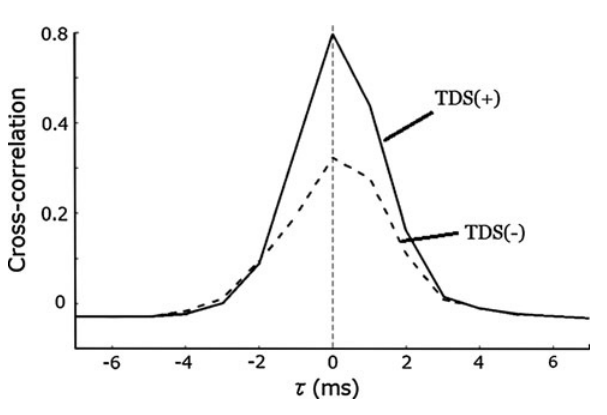
图 7 · ITF 对子相关与放电率的解耦
原文图注:Fig. 7 Response properties of a pair of ITF neurons encoding the features of eye and nose. Cross-correlations of spikes (a) and firing rate (b) of these neurons in response to FO1 and NFO1. The upper and lower panels in (b) indicate the firing rates for the face and non-face stimuli, respectively
图 (a) 展示了分别编码眼部与鼻部的两个 ITF 神经元的动作电位互相关:FO1 条件下形成显著互相关峰(具有约 2 ms 延迟),NFO1 条件下相关系数接近基线;图 (b) 展示对应条件下的瞬时放电率曲线,两组刺激诱发的放电强度几乎重合。该图为放电率与放电相关性的生理学解耦提供了明确模型支持。
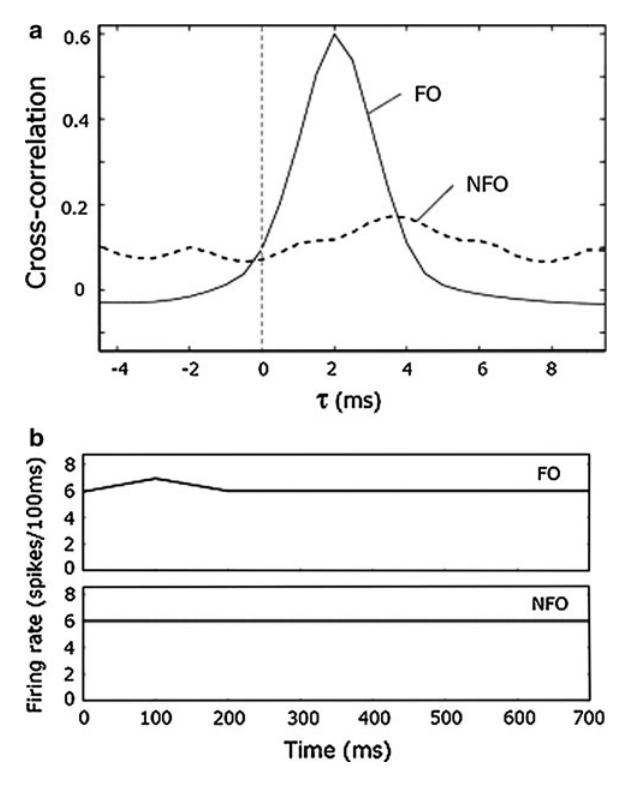
图 8 · 尖峰相关与放电率的动态时间进程
原文图注:Fig. 8 Temporal dynamics of spike correlation. a Time courses of spike correlations of a ITF neuron pair in response to FO1 and NFO1. The cross-correlation at the time 0 ms was calculated using spikes in 500 ms before the stimulus onset time, and the time course was calculated by the spikes in 500 ms window that was successively shifted in steps of 100 ms. b Time courses of firing rate of a pair of ITF neurons for FO1 and NFO1
图 (a) 展示了基于 500 ms 滑动窗口计算的互相关时序演变:FO1 诱发的互相关在刺激呈现后 500 ms 内迅速攀升至平台期,而 NFO1 条件响应缓慢且幅度低;图 (b) 显示两条件下神经元放电率的变化轨迹完全重叠。该图系统再现了电生理实验中动态时序响应的测量结果。
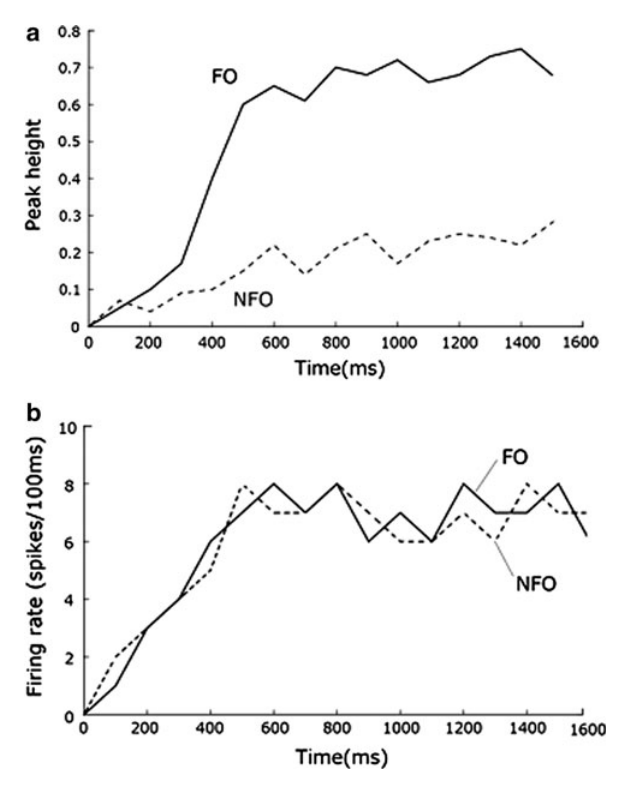
图 9 · 构型依赖的相关性只出现在早期
原文图注:Fig. 9 Rapid emergence of feature configuration-dependent spike correlation. Scatter plots showing peak heights of cross-correlation in z-score (left) and firing rates for ITF neurons (right), elicited by FO1 and NFO1 in the periods of 0–300 ms (top) and 300–600 ms (bottom)
四象限散点图比较了早(0–300 ms)、晚(300–600 ms)两个时间窗中互相关峰值 z-score(左列)与平均放电率(右列)的表现:在早期窗口内,FO1 条件下的互相关显著高于 NFO1,而平均放电率无系统性偏离;晚期窗口内两组条件的各项指标差异均趋于收敛。该图表明特征构型选择性互相关主要在知觉早期阶段快速涌现。
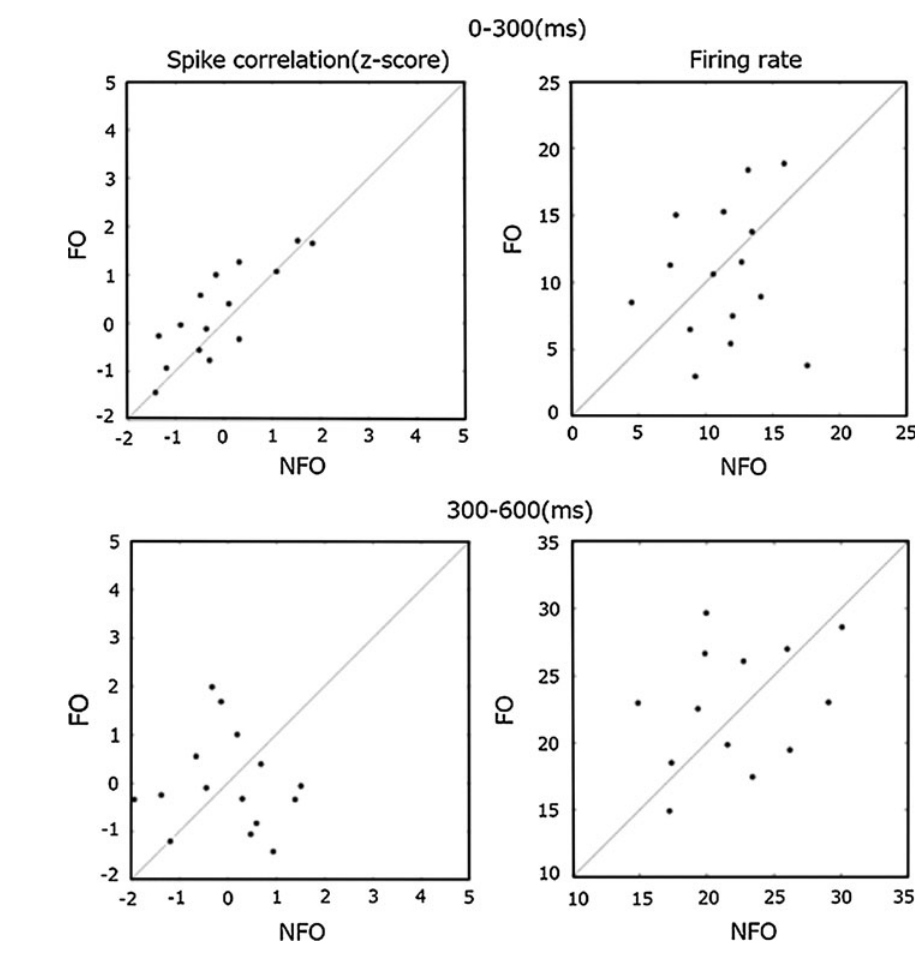
图 10 · ITFR 对熟悉与陌生面孔的潜伏期差异
原文图注:Fig. 10 Onset latency of ITFR neuronal firing for FO1 and animal face object (AFO). The firing rates were averaged over the neurons within units responding to these stimuli
曲线展示了 ITFR 神经元对高熟悉度面孔 FO1 与低熟悉度动物面孔 AFO 的平均放电时程:FO1 刺激诱发的动作电位起始时间显著早于 AFO。该图直接展示了在神经元放电幅值相近的条件下,刺激熟悉度被精确映射至发放起始潜伏期。
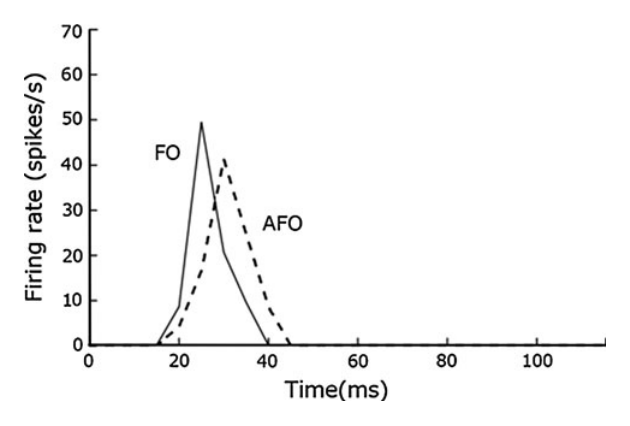
图 11 · 群体水平的潜伏期与放电率散点
原文图注:Fig. 11 Scatter plots of onset latency and firing rate of ITFR neurons in response to FO1 and AFO
左图以 FO1 潜伏期为横轴、AFO 潜伏期为纵轴,多数数据点分布于对角线下方,说明同一神经元对高熟悉刺激响应显著更快;右图展示放电率对比,数据点紧密沿对角线对称分布,无系统性增益。群体统计证实熟悉度差异主要体现为放电潜伏期的变化而非发放率的涨落。
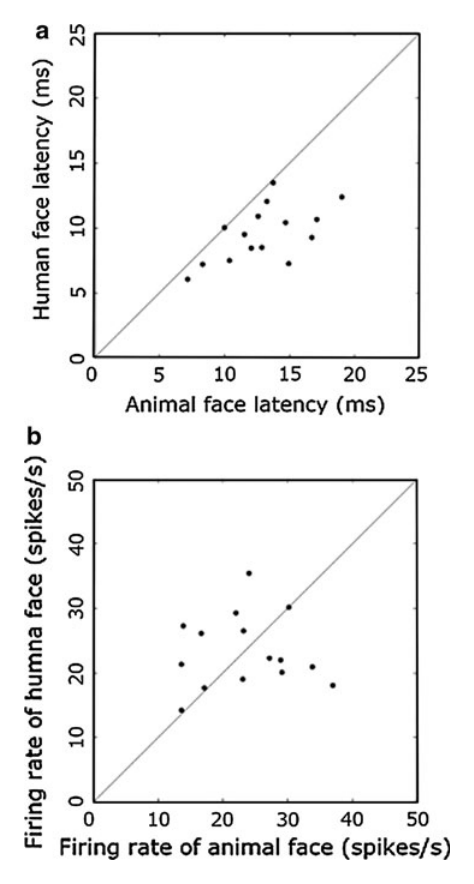
图 12 · 熟悉度差异的突触来源
原文图注:Fig. 12 Temporal variations of the weights of synaptic connections from ITF to ITFR neurons during the learning. Only the two synaptic connections learned by FO1 and AFO are depicted
该图对比了从 ITF 到 ITFR 对应突触权重的学习轨迹:高频呈现的 FO1 所对应的突触权重增长速度与终末强度均高于 AFO。由于突触效力更强,输入电流能够更快越过兴奋阈值,解释了熟悉刺激反应潜伏期缩短的神经生理机制。
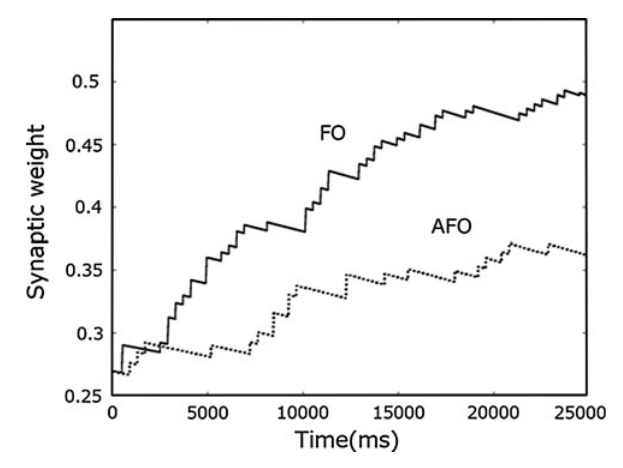
图 13 · 由粗到细:ITFR 的两阶段反应
原文图注:Fig. 13 Responses of ITFR neurons to FO1. a Raster plot of ITFR neurons encoding FO1 and FO2. The label 'i–j' (i = 1, 2; j = 1–5) on the vertical axis means jth neuron within ith unit in ITFR layer. The ITFR neurons sensitive to FO1 and those sensitive to FO2 are indicated by ''1–j'' and ''2–j'' (j = 1–5), respectively. b Temporal variations of firing rates of the ITFR neurons corresponding to the raster plot
图 (a) 放电点图与图 (b) 瞬时放电率展示了两类选择性神经元对 FO1 刺激的动态响应:在初期(50 ms 内),受 ITB 粗轮廓信号驱动,FO1 与 FO2 敏感神经元均发生爆发放电;随后精细前馈信号强化了 FO1 神经元,并通过侧向抑制迅速压制了 FO2 神经元的活性。该动态过程重现了早期粗分类与后期精细身份识别的两阶段处理模式。
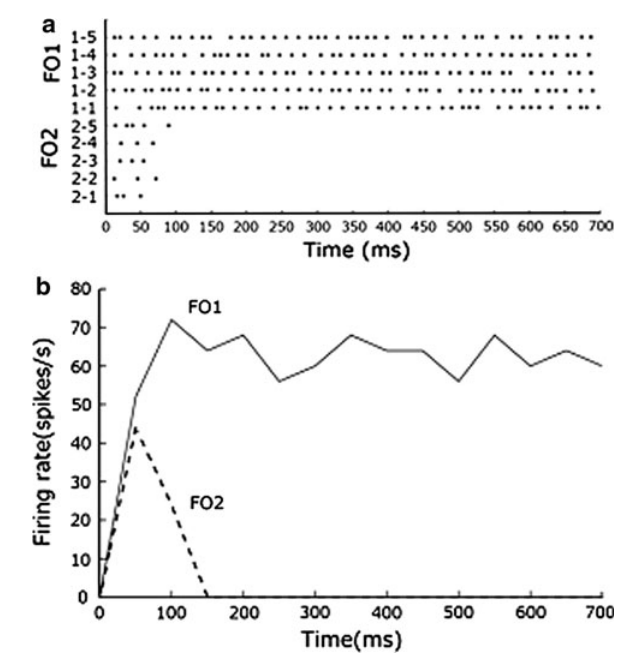
图 14 · 切断自上而下信号的反应延迟
原文图注:Fig. 14 Effect of top–down signal on the firing of ITFR neurons to FO1 is shown under the elimination of the connection between ITB and ITFR layers. The raster plot and firing rate are depicted with the similar way to those of Fig. 13
在切断 ITB 与 ITFR 间的功能连接后,早期驱动信号消失,ITFR 神经元对 FO1 的放电起始发生显著延迟。该实验证实了低频通道提供的自上而下快速前馈通路对加速高级识别判定具有关键支持作用。
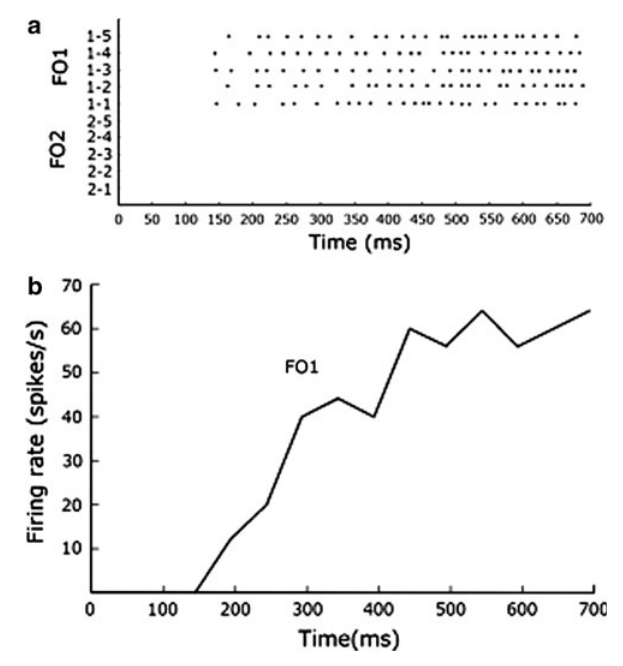
图 15 · 阈下膜电位的相关即预测信号
原文图注:Fig. 15 Effect of top–down signal on subthreshold membrane potentials of ITM and ITF neurons. Cross-correlation of subthreshold membrane potentials of a pair of ITM and ITF neurons, evoked by top–down signals from ITFR
在剔除前馈输入的前提下,来自 ITFR 的反馈投射在 ITM 与 ITF 神经元间诱发了高相关的亚阈值膜电位振荡。该振荡使突触后膜处于临界兴奋态,从而对后续输入表现出高敏锐度,为“预测编码”假说提供了细胞级动力学解释。
讨论
作者在讨论中系统总结了模型的计算逻辑:下颞叶皮层利用多尺度分层拓扑结构组织面孔感知,而长期经验依赖的 Hebb 突触学习重塑了神经回路的时序动力学。同步放电介导了全局轮廓与局部器官的特征绑定,ITF 内部的高相关性编码了局部特征组合,放电潜伏期映射了刺激熟悉程度,而粗细交织的两阶段反应则实现了从粗略类别觉察到精细身份辨认的计算跃迁。模型为“以时间同步性实现特征绑定”(binding-by-synchronization)假说提供了具体的生物物理机制实现。
作者同时指出了模型的若干理论简化与局限:首先,模型假定下颞叶皮层存在一个功能特化的独立面孔处理区,但实际皮层可能采用分布式共有基质处理各类复杂客体;其次,在群体平均相关性的演化曲线上,电生理实验在 500–600 ms 后观察到相关性明显衰退,而当前模型在后期保持平台期,提示可能缺少高级认知注意衰减或外周皮层投射的相互作用;再次,突触可塑性与膜振荡涉及的具体递质受体(如 NMDA、GABA 受体)在模型中未完全精细参数化;最后,模型尚未接入海马与嗅周皮层等内侧颞叶记忆环路。
一句话总结
该计算建模研究表明,分层神经网络中的经验依赖性 Hebb 学习与 Hodgkin–Huxley 神经元亚阈值膜动力学相结合,能够有效实现放电率与时序相关性的解耦,为下颞叶皮层在面孔知觉中表现出的同步放电、潜伏期编码与层级信息整合提供了明确的神经机制解释。