一句话定位:这篇文章用皮层冷却(cortical cooling)可逆地沉默猕猴腹侧通路上的"旁路"输入(V2/V3 直接投向下后颞皮层 PIT,以及 V1 直投 V4),同时用电极阵列监听 PIT 的群体活动,首次在电生理层面回答"多个并行输入通路各自给形状编码贡献了什么"。结论颇具启发性:两条旁路传递的是相似类型的形状信息,而 V4 来源的通路在数量上更有用——冷却 V4 比冷却 V2|3 更深地破坏解码精度;作者再用带旁路的 HMAX 模型证明,这种"砍掉四成输入只掉几个百分点精度"的鲁棒性与深度残差网络的旁路结构遥相呼应。
研究背景
标准的腹侧流叙述是一条串行链:V1 → V2 → V4 → 后下颞皮层(posterior inferior temporal cortex, PIT)→ 前下颞皮层(AIT),PIT 神经元是物体识别的倒数第二站。但解剖学早已知道这条主干旁边还并存着"捷径"(bypass pathways):V4 直接接收来自 V1 的输入,而 PIT 直接接收来自 V2(和 V3)的前馈投射。这些旁路并不是零头——按 Markov 等的逆行标记估计,全部投向 PIT 的神经元中约 14% 位于 V2|3(对照:26% 来自 V4,而 V1 的输入里只有 1% 来自 LGN)。问题因此自然浮出:这些并行通路到底向 PIT 传递了什么?是不同的信息类型(比如短通路传粗略的低空间频率、传得更快),还是同一种形状信息的不同"配额"?
缺口在于,尽管 V2、V4、IT 损伤的行为学研究并不少,却几乎没有人报道过早期纹外区输入失活对 IT 神经元形状编码的电生理效应。唯一相近的工作(Buffalo et al. 2005)发现 AIT 神经元在手术切除同侧 V4 和 PIT 后仍对复杂图像保持选择性反应——但这带来了一个方法学难题:慢性损伤可能诱发可塑性,比如上调旁路输入的权重,从而掩盖输入的真实贡献。要避开这种补偿,需要一个可逆、可在同一批神经元上反复开关的失活手段。
研究思路
作者的选择是可逆冷却:给两只猕猴在枕颞沟回植入 cryoloops(冷冻环),分别覆盖背侧 V4 和 V2|3 的视网膜拓扑对应位置,同时在 PIT 植入漂浮微电极阵列,在同一次实验内依次做"温暖对照 → 冷却 V4 → 复温 → 冷却 V2|3",逐图像比较 PIT 群体反应。实验逻辑是:冷却 V4 时主干 V1→V2→V4→PIT 被切断,剩下 V1→V2→PIT 旁路在工作;冷却 V2|3 时则暴露 V1→V4→PIT 旁路——在主通路均受破坏的解释框架下,两种冷却的差异被作者解释为剩余旁路贡献的差异;但该解释依赖网络与冷却范围方面的假设。这个设计直接继承于作者先前在 MT 区用冷却研究双目视差与速度调谐的工作(Ponce et al. 2008, 2011)。
分析层面的关键决策是:不只比较平均放电率("兴奋性驱动"),而是用线性支持向量机(SVM)做群体模式分析,把 PIT 的"表征能力"当作独立于发放量之外的量来测——因为作者预期,平均率的损失可能主要由连接权重决定,而信息量的损失才能反映通路内容的差异。为了让结论超出"这条通路掉得多"的描述水平,作者又做了三层递进:用 87 个图像特征做回归寻找任何能预测两种冷却解码损失差异的形状特征(结果没有);在高维活动空间里把冷却位移分解为平行于"纯增益变化"方向与垂直(旋转/表征改变)方向的两个分量;最后改写 HMAX 分层前馈模型,加入与解剖一致的三条并行通路,让模拟"PIT"单元带着不同的输入史互相比较,并与生物数据对表。
方法
被试为 2 只成年雄性猕猴(10–17 kg),训练完成注视任务:盯住 0.5° 红色方块(±1.3° 窗口),每 200 ms 亮/灭交替呈现中央凹旁图像,每试次 3–5 张。刺激共 293 张、15 类:简单线形(直线、折角、十字、曲线、三星、径向与线性 Gabor、复合角)与复杂类别(动物、人造物、身体部位、面孔、地点、植物/食物等),另用 Portilla–Simoncelli 纹理模型生成 118 张保留原图低阶统计的 scrambled 纹理;图像最长轴 1.4°(猴 G)或 2.0°(猴 R),未做亮度归一。每只动物每天一个 session(每只共 6–8 天):先在 36–37°C 体表温度收集约 5 次重复/图像,然后开启 cryoloop(管内 9–11°C,使邻近皮层降至 16–18°C)再收集 5 次,复温 10 分钟后做第二轮冷却,两种冷却顺序跨天平衡。PIT 阵列为 32 通道铂铱漂浮电极(猴 R 两片、猴 G 一片 32 通道加两片 16 通道),仅分析有视觉驱动反应的通道(38/64 与 30/64)。
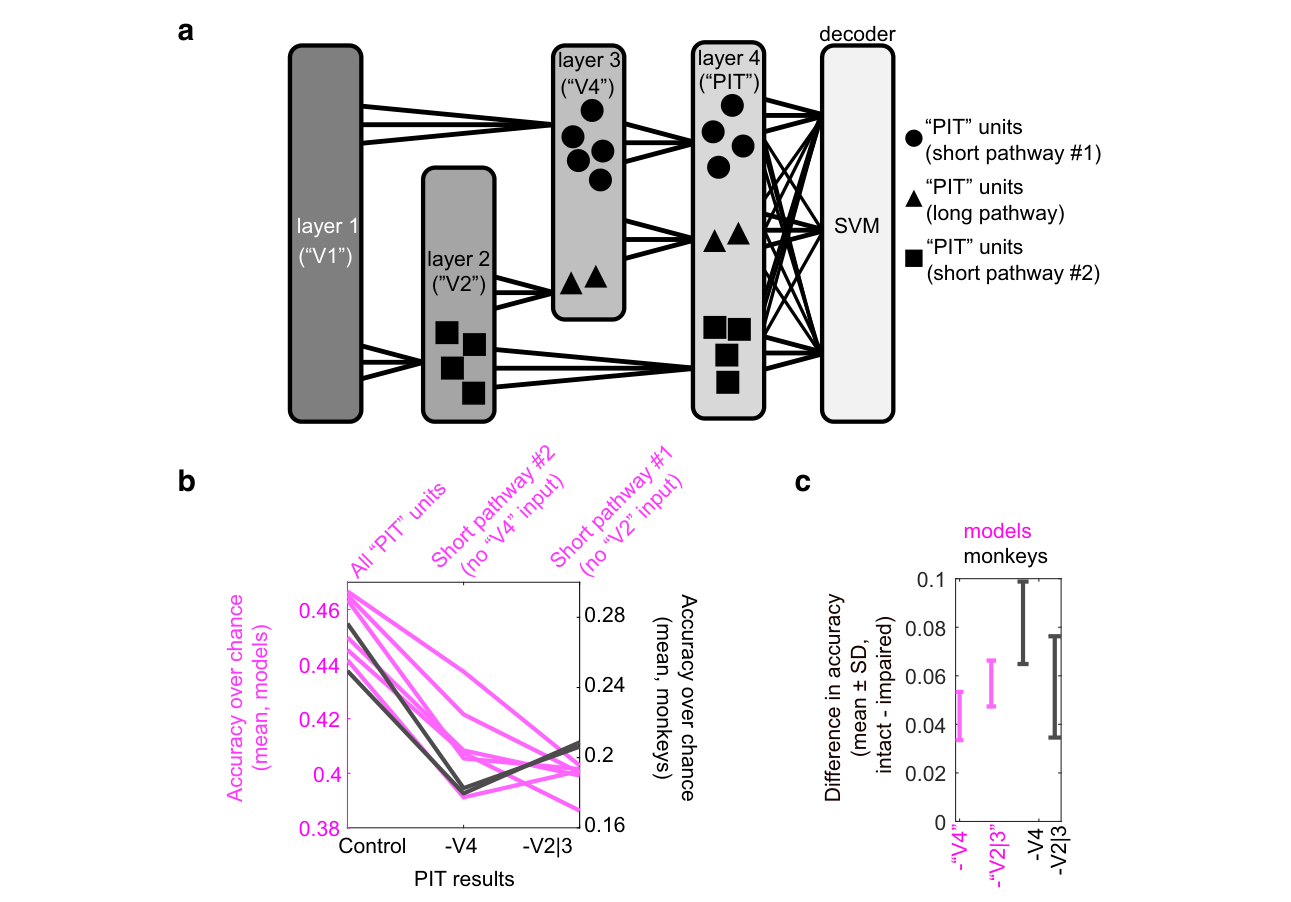
分析时窗:基线 0–50 ms、早期 51–150 ms、全窗 51–400 ms,反应幅度取早期减基线;每通道逐 session 做 z 分数标准化,再把不同天的通道堆叠成"伪群体"(100–300 个多单元位点)。行为上先用闪烁小图在 16×16° 径向网格上绘制阵列覆盖的聚合感受野,再把冷却条件减去对照条件得到暗点(scotoma)范围——结果暗点偏向下方近中央凹视野,与背侧 V2/V4 视网膜拓扑预测一致(V4 冷却暗点 6.7°²/7.5°²,V2|3 冷却 9.1°²/5.7°²,两猴同一中心位置;后续刺激尺寸都放进两个暗点的重叠区)。解码用线性核 SVM 的一对一方案:每对图像训练一个分类器、留一法交叉验证,并用打乱标签的 SVM 估计机会水平(小样本下机会值偏离 0.5,故所有精度都减去打乱标签基线);类别比较改用五折交叉验证。投影分析把每张图在冷却时的群体向量位移 t 分解为平行于最小反应向量 v_min 的增益分量与垂直的旋转分量;选择性用 F 统计量(组间/组内方差比)逐通道计算并做 bootstrap 斜率检验。模型部分基于 Serre et al. (2007b) 的标准模型(HMAX 家族),改为四层三通路:主干 V1→"V2|3"→"V4"→"PIT",旁路一 V1→"V4"→"PIT"(跳过 V2),旁路二 V1→"V2|3"→"PIT"(跳过 V4),顶层 58 个"PIT"单元(4 个主干、25 个仅 V4 旁路、25 个仅 V2 旁路、4 个混合输入),旁路层感受野尺寸四倍放大,并用猴眼动分布模拟注视微动(每图 6 个位置变体)以引入变异性,共训练 6 个不同感受野配置的模型。
主要结果
- 冷却只部分削减 PIT 驱动,且 V4 与 V2|3 无一致差别(图 1、2,表 1、2):暗点映射证明冷却确实作用于 V2|3/V4 而非 PIT 本身。视觉驱动通道的诱发放电在 V4 冷却下平均降低 33%(猴 R)与 34%(猴 G),V2|3 冷却下降低 26% 与 35%;两环同时冷却也只降 38%,PIT 远未被"静默"。反应潜伏期仅延迟约 2–3 ms、调谐潜伏期延迟 6–10 ms,两种冷却间无跨猴一致差异。作者在讨论中呼应解剖数据指出:V2+V3+V4 合计约占 PIT 输入权重的 40%(2% + 12% + 26%),与 38% 的放电降幅相当。
- 模式分析揭示 V4 通路更重要(图 2c、3):SVM 逐图像解码精度(减去打乱基线)在对照条件下为 0.24(猴 R)/0.27(猴 G),V4 冷却降至 0.16(两猴),V2|3 冷却降至 0.19/0.20;两种冷却的差值在两猴均显著(Wilcoxon 符号秩检验,p ≤ 2×10⁻⁴)。可获得可靠解码得分的图像数从对照的 96%/100% 降至 V4 冷却下的 84%/85%,而 V2|3 冷却下仍有 94%/95%。K-means 领土分析(图 3d)同样显示 V4 冷却使更多图像迁移出对照时的聚类领土(4 个质心时 31% vs 24%,8 个质心时 60% vs 52%)。类别分类精度也呈同方向(V4 冷却下降更深,p = 1.9×10⁻³ 与 2.7×10⁻²)。
- 活动空间位移以旋转而非缩放为主(图 4):把冷却轨迹投影到"最小反应向量"上,垂直(旋转)分量远大于平行(增益)分量,且 V4 冷却的旋转分量在两猴都一致大于 V2|3 冷却(猴 R 9.4 vs 9.2,p = 3.9×10⁻⁸;猴 G 9.5 vs 9.2,p = 1.5×10⁻¹⁴)。这说明冷却主要改变图像表征的身份(方向),而不只是压低整体驱动。
- 单点选择性下降与暗点位置相关,且 V4 冷却下降更深(图 4c、d):F 统计量斜率(冷却 F 对对照 F)在两猴对两种冷却都显著小于 1(V4:0.64/0.53;V2|3:0.82/0.59),且 V4 斜率更浅的组间差异经随机化检验显著(p = 0.001 与 0.02);分别报告V4和V2/V3结果,并明确V2/V3条件下Monkey R的相关未显著。(V4 冷却相关 r = 0.19/0.32)。
- 模拟与模型共同指向"表征扰动而非驱动损失"(图 5、6):对对照群体向量做 81 组(9 个增益 × 9 个旋转)扰动后发现,解码精度对增益极不敏感——把所有向量范数压到 10% 也只把精度从 23%/26% 降到 18%/21%——而对旋转敏感,56° 旋转即可降至 0%。复现 V4 冷却精度需要 25.6° 的旋转,而复现 V2|3 冷却只需 0.4°(猴 R)/12.8°(猴 G)。87 个图像特征的回归中,唯一稳定的预测因子是图像冷却前的解码精度本身;任何特征都无法解释 V4 与 V2|3 损失差异(p = 0.91)。HMAX 模型里,砍掉 43%(32/58)个"PIT"单元只损失 5–6% 精度(46% → 41% 或 40%),与猴数据(26% → 18% 或 21%,损失 5–8%)相当;缺"V4"与缺"V2"输入的模拟亚群体解码能力相当(41% vs 40%)。
图注解读
图 1 · 冷却装置与暗点定位
原文图注:Figure 1. Cooling affected portions of the aggregate PIT receptive fields. a, Partial input network to PIT. b, Schematic showing location of cryoloops (purple) and microelectrode arrays (green) relative to the prelunate gyrus (yellow) and lunate sulcus (pink). Monkey R had two short loops inside the lunate sulcus. Monkey G had one long loop. c, Composite image showing the superimposed thermal and visible light images taken intraoperatively while the prelunate gyrus loop is active. d, Average firing rate for all units, evoked by flashing stimuli within a 8°×8° grid, in the control (warm) condition. Red boxes represent the regions of stimulus presentation in subsequent experiments. e, Difference in activity during cooling of area V4 (left column) or V2|3 (right column).
这张图建立实验的空间坐标系:a 给出部分输入网络示意(主干与旁路),b 标出冷冻环与电极阵列相对月状沟、月前回的解剖位置,c 用术中热成像叠加可见光照片显示冷却范围局限在冷冻环周围 1–1.5 mm。d 的聚合感受野图显示阵列覆盖的 PIT 群体感受野偏上视野并伸入下方近中央凹区;e 把冷却条件减去对照后,活性缺损(暗点)集中在下方近中央凹视野——正是背侧 V2/V4 视网膜拓扑预测的投射区,从而证明冷却作用于输入区而非 PIT 本身。支撑结果第 1 条与方法有效性的论证。
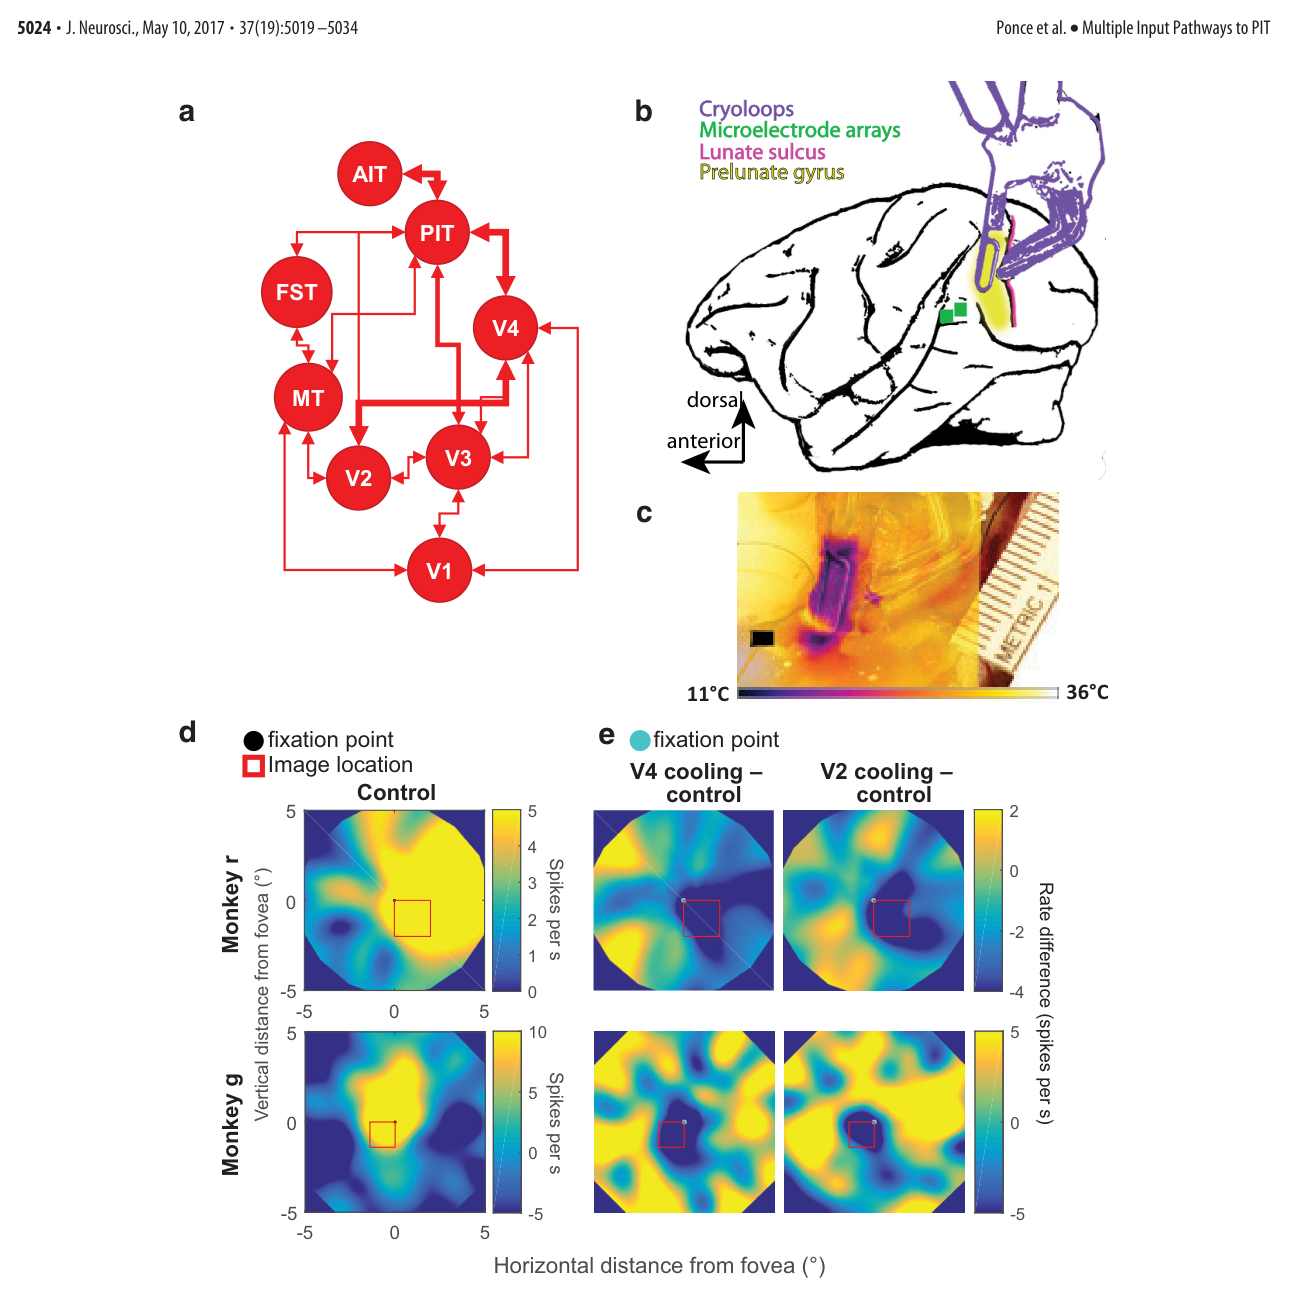
图 2 · 冷却降低放电率与分类精度
原文图注:Figure 2. Effects of cooling on firing rate and classification accuracy. a, Top, Data from one cooling session (Monkey R, day 1). The evoked spike rates from 41 visually responsive PIT sites (rows) recorded concurrently before, during, and after cooling of V4 and V2|3. Each column represents one image presentation. Solid lines indicate the onset of each cooling condition. Broken lines indicate the onset of the rewarming periods. Bottom, Mean firing rate across each temperature condition. b, Top, Average firing rate activity (z scored) for all channels during each temperature condition. Bottom, Median classification accuracy for all images during each temperature condition. c, Mean accuracy for each image before and during cooling (baseline-corrected; magenta represents control, green represents V4 cooling, blue represents V2|3 cooling). The x-axis indicates all 293 images.
读法:a 的栅格图按时间轴排列,可以直观看到冷却开启(实线)后诱发放电变稀、复温(虚线)后恢复;下方的条件均值显示放电率下降约三分之一。b 上排是各温度条件下 z 分数化活性的汇总,下排是解码精度的中位数——注意精度在 V4 冷却下掉得比 V2|3 更多,而放电率的下降却并无一致的 V4 优势,这一"不对称"正是本文的核心发现。c 把 293 张图按类别排开逐张对比三种条件的解码精度(品红对照、绿 V4、蓝 V2|3),可见 V4 冷却的绿点普遍更低。支撑结果第 1、2 条。
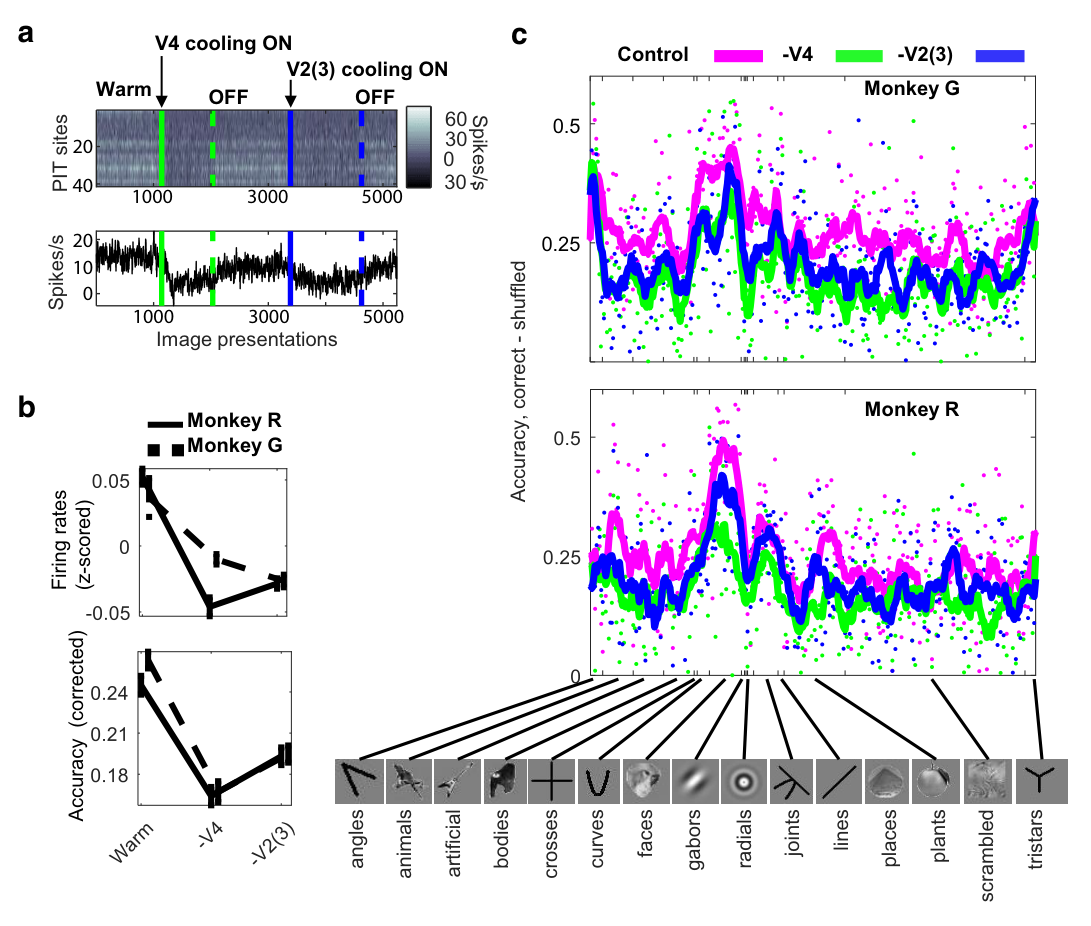
图 3 · 活动空间中的类别领土迁移
原文图注:Figure 3. Effects of cooling on categorization. a, Two-dimensional plot of activity space for Monkey G, pseudopopulation 2. Top, Control (warm) data. Middle, V4 cooling. Bottom, V2|3 cooling. b, K-means clustering of points in a, using three centroids. c, Tracking the location of two images. Faded images represent the control 2-D plot. The two saturated images are tracked before cooling (red dot), during V4 cooling (green dot), and during V2|3 cooling (blue dot). d, Fraction of images changing centroid labels during cooling (green represents V4 cooling; blue represents V2|3 cooling; solid lines indicate Monkey R; dashed lines indicate Monkey G), as a function of the number of centroids. Error bars indicate mean±SE after 100 K-means repetitions. Asterisks indicate if the difference in fractions between ΔV4 and ΔV2|3 conditions have ≤0.05 probability of arising from the same distribution (randomization test). e, Category classification accuracy before cooling (magenta), during V4 cooling (green), and V2|3 cooling (blue).
读法:a 用多维标度把高维群体向量压到二维,对照条件下呈"光谱"而非分立簇——面孔与线图位于光谱两端,冷却后光谱周长收缩但整体组织不变。b、c 演示 K-means 追踪法:先在对照数据上定质心,再统计冷却时有多少图像"搬家";d 是核心定量面板——横轴为质心数,纵轴为搬家的图像比例,绿线(V4)在两猴都系统性高于蓝线(V2|3),星号标记随机化检验显著的位置。e 给出 15 类逐类精度,同样绿低于蓝。支撑结果第 2 条中"V4 冷却更深地破坏类别/图像编码"的论断。
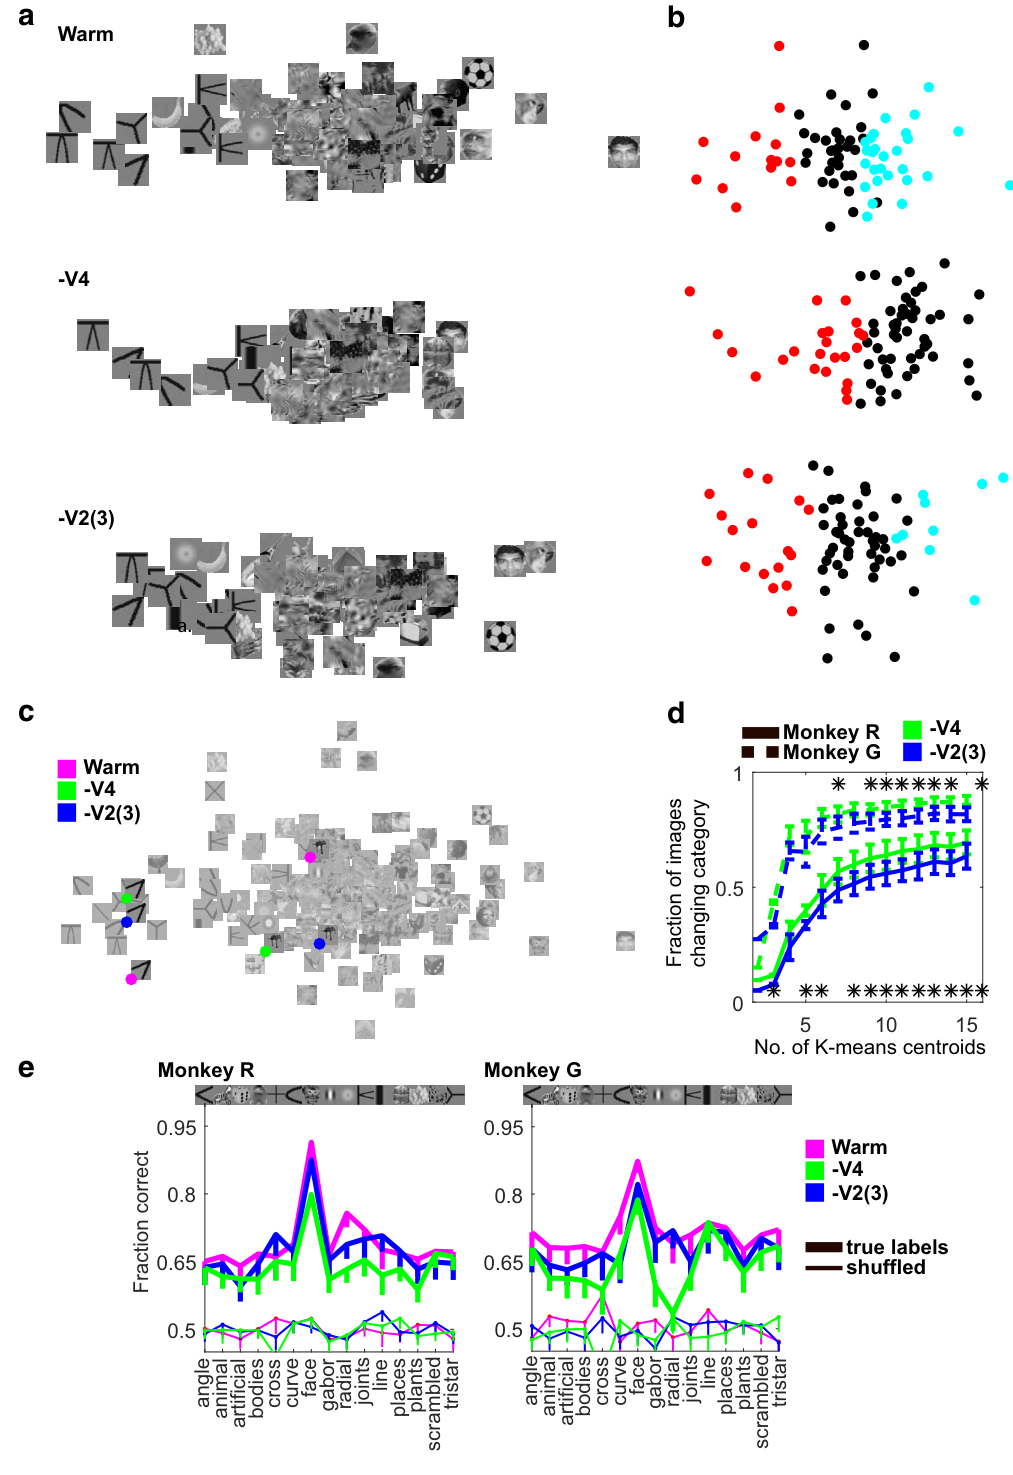
图 4 · 冷却轨迹的投影分解与单点选择性
原文图注:Figure 4. a, Projection analysis. Schematic. The axes represent the hypothetical responses of two units in response to multiple presentations of a single image i before cooling (black dots) and during cooling (blue dots). The mean responses to the image are noted by v_i^warm (control) and v_i^cool (cooling). Thick black line indicates the axis between the mean control response and the minimum response vector v_min. Blue line indicates the trajectory vector t_cool between v_i^warm and the mean cooling response v_i^cool. Orange and purple lines indicate the parallel and perpendicular components, respectively, of the cooling trajectory vector. b, Mean parallel and perpendicular components of the cooling trajectory vectors for each deactivation condition and monkey. c, Scatter plots of F statistics (green represents warm vs ΔV4; blue represents warm vs ΔV2|3). Dashed black line indicates unity. d, Differences in slopes expected given a mixed temperature distribution.
读法:a 的示意图是理解本文概念框架的钥匙:如果冷却只是随机"抽走"发放,轨迹应平行于最小反应向量(纯增益);如果冷却改变表征身份,轨迹应显著垂直于它(旋转)。b 显示垂直分量(旋转)远大于平行分量(增益),且 V4 条件(实/虚线中的一组)的旋转更大。c 把每个位点的冷却 F 值对对照 F 值作散点,斜率小于 1 表示选择性丢失;V4 的斜率更浅。d 给出打乱标签下的斜率差零分布,实验观测差异落在分布尾部之外。支撑结果第 3、4 条。
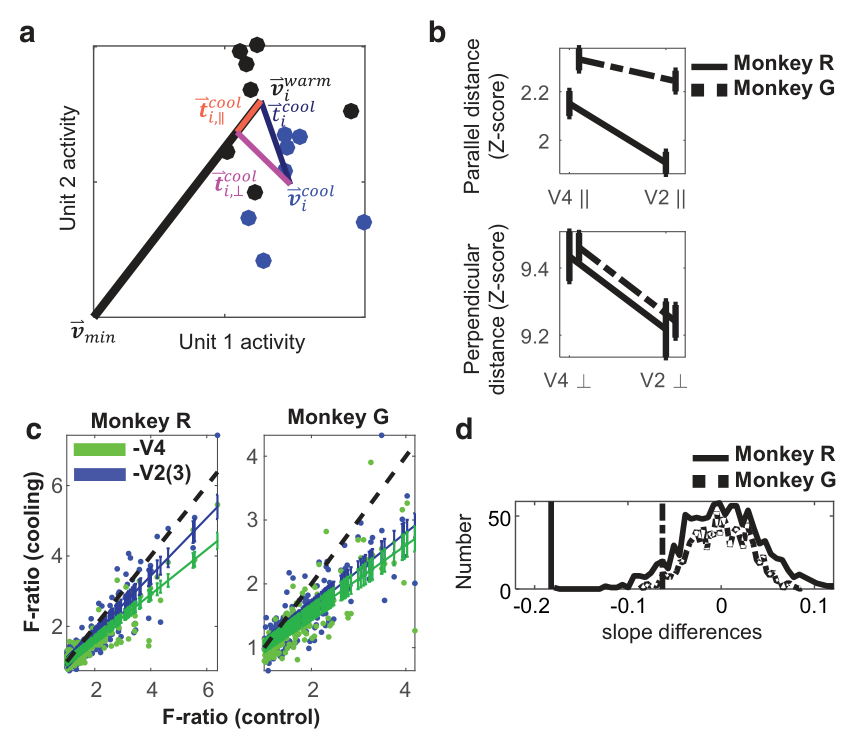
图 5 · 冷却效果的模拟梯度
原文图注:Figure 5. Cooling simulations. a, Vector rotations in N-dimensional space. ai, Hypothetical responses of two units (axes) to three different image presentations (v_i, where i = 1–3) during control conditions; v = mean response vector (asterisk). aii, Difference vectors d_i between mean response vector v and each individual image representation v_i. aiii, Perpendicular components d_i⊥ of difference vectors d_i. aiv, Rotated vectors v_i^rotated obtained after adding d_i⊥ multiplied by scalar factors to v_i. b, Decoding accuracy gradient. Mean accuracy values (baseline-subtracted, ±SE) computed after transforming warm-condition response vectors by various norm (gain) and angular changes. Green and blue circles represent the experimentally measured accuracy values during V4 and V2|3 deactivation.
读法:a 逐格演示"如何在不越出天然调谐超平面的前提下人工旋转群体向量":从对照响应出发求差向量、取其垂直分量、按系数缩放后加回原向量。b 是核心结果图——横轴为旋转角(3°–56°),纵轴为增益(0.1–1),等值线是解码精度;绿圈(实验中 V4 冷却的精度落点)位于比蓝圈(V2|3 冷却)更大的旋转、相近增益处,说明 V4 冷却造成的表征扰动更大,而两种冷却的增益损失几乎相同。支撑结果第 5 条的第一半。
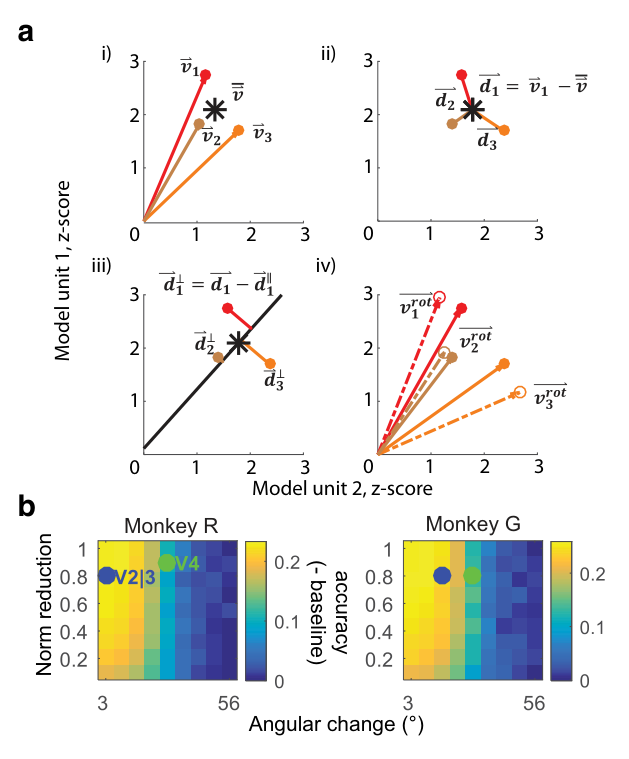
图 6 · HMAX 三通路模型对照生物数据
原文图注:Figure 6. Computational approach to testing units with different input histories. a, Architecture of our HMAX implementation, which included three parallel pathways resulting in three top layer units with different input histories (circles, triangles, and squares). SVMs were used to query each population independently or as a whole group. Six different models were trained with the same architecture but different RF shapes. b, Mean classification accuracy over chance (±SEM) for both animals during the warm, V4 and V2|3 deactivation (black) and for all simulated PIT populations in six models (pink). The label "All 'PIT' units" describes results from querying the full population of short-and long-pathway PIT cells. c, Differences in classification accuracy shown in b, for different implementations of the model and monkeys. "Intact" refers to the "All 'PIT' units" condition in the model implementations and to the precooling condition in the monkeys. "Impaired" refers to the queried subpopulations in the model and to the cooling conditions in the monkeys.
读法:a 的架构图中三种符号(圆、三角、方)代表三种输入史的"PIT"单元:完整四层主干、跳过"V2"的旁路、跳过"V4"的旁路。b 把模型(粉)与猴(黑)并排:两者在"完好"条件下精度不同(模型 46% vs 猴 26%),但"损伤"后的下降幅度相当(模型 5–6%,猴 5–8%)。c 把"完好减损伤"的精度差按条件画出来,直观显示模型与生物数据的可比性,以及模型并未可靠复现"V4 旁路更关键"的不对称——作者以此论证 V4 的优势可能来自其远大于 V2 的解剖投影数量,而非通路内信息的质的差异。支撑结果第 5 条与结论。
讨论
作者对"为什么冷却没有静默 PIT"给了定量回答:暗点只覆盖几度中央视野,且 PIT 至少接收 60 个皮层区(V3A、V4t、LIP、MT、前部 IT、前额叶 9/46 等)与丘脑枕核的输入;按 Markov et al. (2014) 的逆行标记权重,V2 约占 2%(3782 个细胞)、V3 约 12%(19,116)、V4 约 26%(39,911),合计 40%,与同时冷却三区时 38% 的放电降幅惊人地接近。在这个多路冗余的背景下,"平均放电率几乎不变、模式分析才见差异"就说得通了——作者因此主张未来损伤研究必须区分驱动量损失与表征损失,并使用多变量模式分析。关于是否有特征性分工(低空间频率、更快传导),作者没有找到证据:响应潜伏期在两种冷却间几乎无差别,87 个图像特征也预测不了两种冷却的损失差异;Hegde and Van Essen (2007) 显示 V1/V2/V4 对同一形状集反应相似,提示这些并行通路传递的可能是同一类几何基元、只是空间尺度不同(V4 感受野更大)。方法学上作者坦承一个混淆:V2、V3、V4 彼此紧密互联,冷却任一节点都会掐断主干 V1→V2→V4→PIT,这正是实验设计的一部分(以主干为常量、暴露旁路),但也意味着测得的差异是"扣除主干后的旁路剩余贡献"。最后,作者把这一体系放到当时刚兴起的深度残差网络(ResNets)的语境里:捷径连接与生物旁路对应、赋予网络对"损伤"的鲁棒性(He et al. 2015, 2016;Veit et al. 2016),只是最好的 ResNet 有成百上千层,而视觉系统只有 7–8 层,ResNet 是否真能更好地解释 IT 反应方差仍属开放问题。
一句话总结
我读这篇文章最深的印象是它把"通路重要性"从解剖直觉变成了可操作的分解:放电率的下降只是连接权重的回声,真正的信息量损失要靠解码精度和活动空间旋转才能看见——V4 通路赢在"量"(投影数目庞大)而非"质"(形状类型),甚至模型告诉我们砍掉近半顶层单元也只掉几个百分点。对今天读深度网络的人来说,这就是 2017 年版的"残差连接为什么鲁棒"的神经科学注脚;当然也要记得,两条通路信息的"质"是否真无差异,作者自己也承认受限于刺激集与暗点尺寸,只能算到"未见差异"为止。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[D, G] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: {'issue_id': 'ISSUE_010', 'claim_class': 'OVERCLAIM', 'claim': '冷却差异可直接归因于两条旁路各自的贡献。', 'assessment': '干预具有因果性,但不构成严格的单一路径隔离。'} -> 评注: 干预具有因果性,但不构成严格的单一路径隔离。
- 审校纠偏: {'issue_id': 'ISSUE_011', 'claim_class': 'INTERPRETATION_PRESENTED_AS_FACT', 'claim': 'V4通路的优势来自投射数量,而不是信息类型。', 'assessment': '这是与结果一致的作者解释,未被直接验证。'} -> 评注: 这是与结果一致的作者解释,未被直接验证。
- 审校纠偏: {'issue_id': 'ISSUE_012', 'claim_class': 'OVERCLAIM', 'claim': 'HMAX模型证明了生物旁路和ResNet式残差结构的鲁棒性机制。', 'assessment': '模型仅提供有限的定性类比,ResNet并未在研究中测试。'} -> 评注: 模型仅提供有限的定性类比,ResNet并未在研究中测试。
- 审校纠偏: {'issue_id': 'ISSUE_013', 'claim_class': 'OVERCLAIM', 'claim': '暗点映射证明冷却没有作用于PIT。', 'assessment': '证据支持冷却位置和预期视网膜拓扑,但“证明”措辞过强。'} -> 评注: 证据支持冷却位置和预期视网膜拓扑,但“证明”措辞过强。
- 补充要点: : (第 页)
- 补充要点: : (第 页)
- 补充要点: : (第 页)
- 补充要点: : (第 页)
- 补充要点: : (第 页)