这篇文章问的是一个发展心理学经典问题——客体永久性(object permanence,物体被遮挡后仍然存在的知识)——在成年猕猴的下颞叶(inferotemporal, IT)皮层里有没有神经元层面的对应物。作者让两只从未接受过任何行为训练的猴子观看"物体被遮挡板逐渐遮住、再露出"的动画,用"视觉刺激完全相同、只有预期是否被违背"这一关键对照,在 IT 里找到了惊讶(surprise)与匹配(match)两类信号,以及遮挡期即将结束前重新出现的选择性延迟期活动。
研究背景
物体从眼前消失,并不意味着观察者认为它已不复存在。客体永久性研究正是从这种视觉输入与内部知识的分离出发:经典婴儿实验发现,被遮挡物体以不符合先前情境的方式重现时,注视行为会改变,提示观察者保留了对不可见对象的某种预期。但行为上的预期违背并未说明这类信息由哪些神经元承载,也不能独自裁定它来自先天机制还是早期经验。对于识别物体的视觉系统而言,更具体的问题是:在输入暂时中断后,原来的物体身份能否影响随后对同一个可见刺激的反应。
下颞皮层因其物体选择性成为候选区域。此前在延迟匹配任务中,经过训练的猕猴可表现出样本选择性的延迟活动,以及测试物与样本匹配或不匹配时的响应调制。这些现象具备维持身份、比较先后对象所需的性质,却同时受到大量任务训练的影响:动物必须记住样本才能获得奖励,相关信号可能服务于学得的策略。未接受这类训练的动物证据则较少,已有上颞沟研究主要涉及遮挡期间的选择性活动,尚未充分回答单个神经元是否区分预期与非预期的重现。另一个困难是重复抑制:若同一物体再次出现时反应较弱,未必就意味着神经元编码了遮挡后的预期。
本文让仅接受注视训练的成年猕猴观看遮挡动画,比较同一物体在不同前序身份之后重现的反应,使重现阶段的图像相同,而先前情境不同;另设物体消失后再现的固定点对照,检查单纯重复能否解释结果。作者同时观察遮挡末期的身份选择性,以及它与重现时匹配、惊讶信号的关系,从而把维持与比较放进同一实验。这样的设计能够检验相关信号是否无需专门的工作记忆训练即可出现,却不能排除成年动物的自然经验,也未直接测量动物对物体持续存在的判断。由于效应只见于部分记录单元,且没有因果扰动,合理的结论边界是寻找客体永久性的候选神经信号,而非证明下颞皮层独自实现了这项能力。
研究思路
设计的核心是一组"视觉上完全相同"的对照:物体 A 被遮挡后,露出 A(预期出现),或遮挡 B 之后露出 A(非预期出现)。两种条件下到达视网膜的刺激一致——同样是从遮挡板后逐渐显现的同一物体——因此任何系统性的神经响应差异只能来自神经元内部反射性生成的预期或违背信号,而不是刺激本身。为了避免动物对某一条件形成任务期望,预期与非预期试次等概率出现。另一个关键决策是控制条件的选择:作者本想用"隐形遮挡板"做对照,但那同样会产生遮挡知觉,于是改用无任何运动物体的固定点对照——物体被注视点替换 1,000 ms 后再现,物体的完全可见时长与遮挡条件严格相等,从而把"重复呈现导致的重复抑制(repetition suppression)"这类低级解释也纳入检验。整个实验只训练猴子保持注视,因此任何预期都只能来自先天先验或自然视觉经验。
方法
被试为两只约 7 岁的成年雄性猕猴(Macaca radiata,Ka 与 Sa),只在植入前接受过注视训练。记录位点是左半球前腹侧 IT(MRI 验证:Ka 前部 +14 mm、外 +13 mm;Sa 前部 +19 mm、外 +15 mm),用 24 通道微电极(100 μm 间距)每天插入一个位点,共 45 个位点;去除通道间相关性过高的重复单元后得到 788 个单元(644 单元 + 144 多单元;Ka 487、Sa 301)。每个位点从 24 个物体图库中为一个视觉响应最好的通道选出偏好与非偏好物体 A、B,以四种组合(A 遮 B 出、A 遮 A 出、B 遮 A 出、B 遮 B 出)各重复 8 次呈现,共 32 个遮挡试次与 32 个固定点对照试次随机穿插,每试次 2.45 s,注视窗 4°×4°,保持注视即得果汁。
遮挡试次的时间线是:注视点出现,物体(2°×4°)在注视点呈现 200 ms;遮挡板(砖墙,2°×8°)出现在左外侧 8° 处并以 8°/s 右移,约 490 ms 后接触物体、再 250 ms 后完全遮住;完全遮挡 750 ms 后遮挡板继续右移使物体重现,250 ms 后完全可见并保持 500 ms。固定点对照仅在"遮挡物接触物体的时刻(物体出现后 700 ms)物体被注视点替换 1,000 ms"这一点上不同。分析以"每个神经元×每个物体"为一对(788×2=1576 对),在物体出现后 50–750 ms 窗内对预期与非预期条件的发放率做秩和检验(α=0.05);时间进程用拆半法(一半试次定效应、另一半画时间曲线)避免"双挖"(double dipping)偏倚;记忆信号比较完全遮挡期最后 250 ms 内"遮 A"与"遮 B"两种条件;各指数(惊讶、记忆、视觉偏好)均为形式的调制指数,并用 Pearson 相关考察指数间关系。
主要结果
- 存在两类相反的信号,且显著多于"纯噪声"预期:1576 对响应中有 67 对(4%)在出现后 50–750 ms 窗内预期与非预期条件差异显著,涉及 64 个细胞(8%);其中 45 个为惊讶效应(非预期出现响应更强),22 个为匹配效应(预期出现响应更强,图 1B,C)。45/22 的不均衡显著偏离偶然预期的对半分(p=0.007,卡方检验),且两只猴子方向一致(Ka 31/13,p=0.01;Sa 14/9,p=0.4);效应强度拆半后高度可重复(r=0.75,p<0.00005,图 2C)。行为上,注视精度(预期 88% vs 非预期 87.5%)与注视位置在两条件间均无系统差异。
- 两类信号同时达峰、略有先后:用拆半法得到的无偏时间进程显示,惊讶与匹配信号都在物体出现后约 130 ms 达到峰值;惊讶信号总体更强,匹配信号上升更早(图 2A,B)。两类信号在物体完全可见之前就已出现。
- 选择性延迟期活动在重现前被"重新激活":29 个神经元在完全遮挡期最后 250 ms 内对被遮挡物体表现出显著的选择性延迟活动;这种选择性在遮挡刚开始时并不存在,而是在物体即将出现的时刻才恢复(图 2D)。延迟期记忆调制与视觉期的物体偏好显著相关(r=0.44,p=0.019,图 3A),说明"记忆选择性与视觉选择性出自同一批偏好"。记忆信号在记录前后两半间无增强趋势(0.39 vs 0.44,p=0.55),惊讶指数的绝对值也无下降(0.21 vs 0.23,p=0.7),排除了"猴子在实验中逐渐学会期待意外"或习惯化的解释。
- 记忆与匹配信号绑定在同类细胞上:对每个物体分别计算惊讶指数与记忆指数后发现,匹配效应越强的物体其记忆信号越强(r=−0.56,p=0.007),惊讶效应亦然(r=−0.36,p=0.015;图 3B);bootstrap 显示这些相关极少为正(4%/4.5%),且在两只猴子中都成立。作者据此提出两群细胞的分工:带记忆信号的细胞在重现前恢复选择性活动、并在同一物体按预期重现时给出匹配信号;另一群更大的细胞则只在出现方式违背预期时发放更强的惊讶信号。
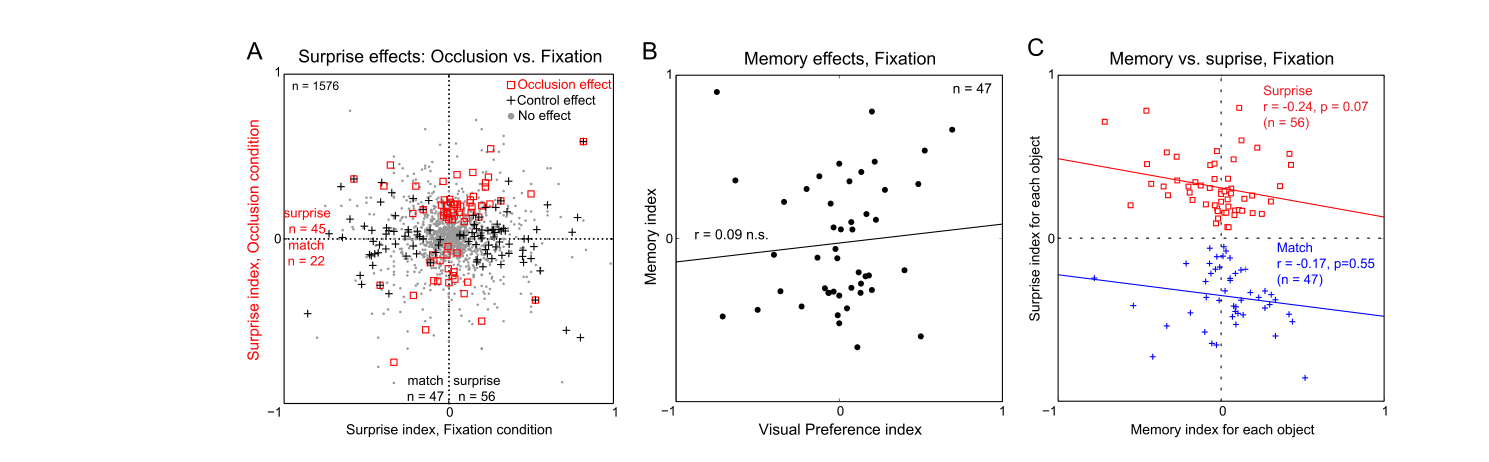
- 遮挡是前提,不是简单重复:固定点对照里,图 1 的两个示例神经元都不再有条件间差异(图 4)。总体上,遮挡条件与对照条件的惊讶指数毫无相关(r=0.01,p=0.76,图 5A);两条件显著效应的重叠(8 对)不高于独立分布预期(4.6 对,p=0.2);对照条件 108 对(6.8%)显著、惊讶/匹配为 56/47(54%,不偏离对半,p=0.43),而遮挡条件为 45/22,两者分布差异显著(p=0.0001);对照条件下 47 个"记忆效应"细胞的选择性延迟活动与视觉偏好无关(r=0.09,p=0.55),记忆与惊讶/匹配之间也无系统关系(图 5B,C)。结论是:IT 的惊讶/匹配信号不能归结为刺激在时间上的简单重复,而是遮挡知觉特有的。
图注解读
图 1 · 遮挡任务与两个示例神经元
原文图注:Figure 1. Example surprise and match responses in IT. (A) On each trial, an object appeared at fixation and an occluder moved continuously from left to right across the screen and occluded the object when it passed across it. (B) Responses of an IT neuron with a surprise signal i.e. higher response for unexpected emergence (red) compared to expected emergence (blue). Average firing rate (in 20 ms bins) is shown in bars, and tick marks in each row represent the times of individual spikes in a trial. Images above and below the responses show the schematic of the screen content at the corresponding points in the trial. Object images reprinted with permission from Hemera Photo Objects. (C) Responses of an IT neuron with a match signal i.e. a higher response for expected compared to unexpected appearance of an object.
A 图画出试次时间线:物体在注视点出现、遮挡板从左向右移过并遮住物体、再从右侧露出同一个或另一个物体。B、C 是栅格图(每行一个试次的 spike 刺状标记,柱状为 20 ms bin 的平均发放率),上方小图给出对应时刻的屏幕内容。读图关键在于比较蓝色(预期出现)与红色(非预期出现)两组柱:B 神经元的红柱更高(惊讶型),C 神经元的蓝柱更高(匹配型)。这张图定义了全文要刻画的两种效应,支撑主要结果 1。
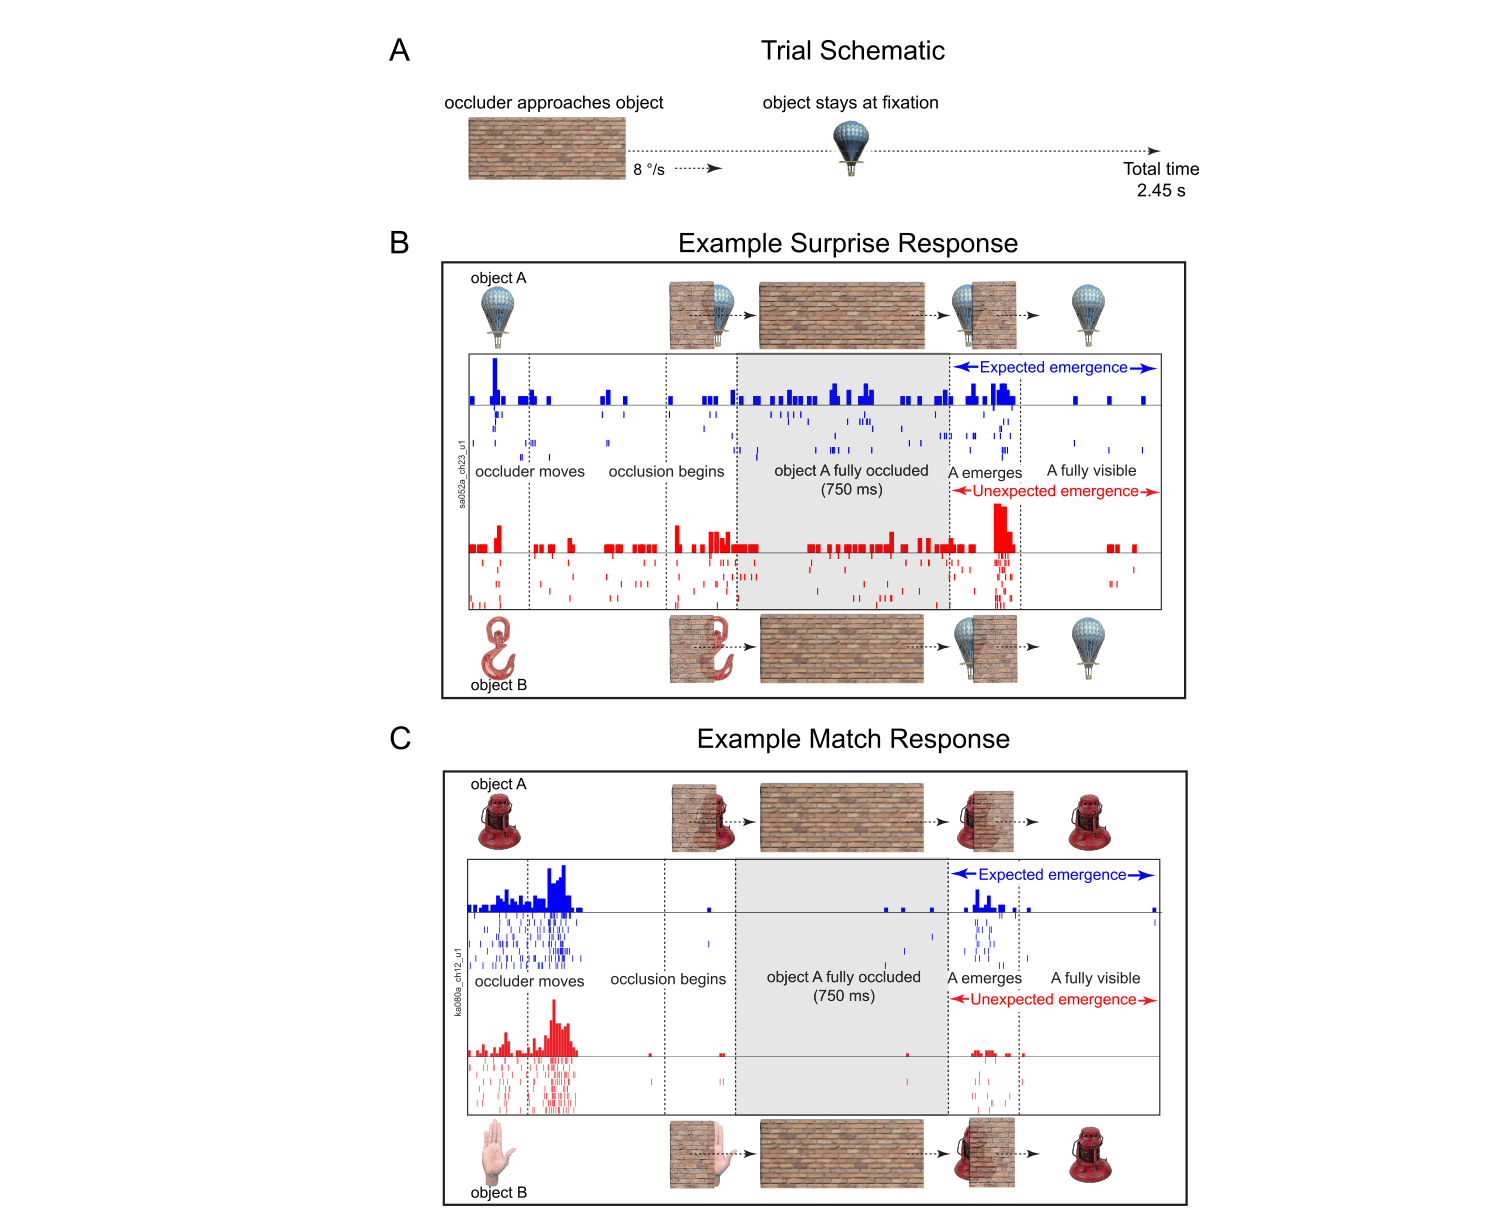
图 2 · 惊讶、匹配与记忆信号的时间进程
原文图注:Figure 2. Time course of surprise, match and memory signals in IT neurons. (A) Unbiased estimates of the time course of surprise responses. Blue curves represent the average normalized response (in 20 ms bins) to expected emergence of an object (blue) across neurons with a significant surprise effect. Red curves are the corresponding time courses for the unexpected emergence of the same object. Shaded regions around the solid lines represent standard errors of the mean. The gray region represents the period in which the object was completely hidden behind the occluder. (B) Unbiased estimates of the time course of match responses to expected emergence (blue) and unexpected emergence (red). Other conventions are the same as in (A). (C) Surprise index calculated from odd-numbered trials plot…
A、B 分别给出惊讶型与匹配型神经元对预期(蓝)/非预期(红)出现的平均归一化时间进程,灰带为物体被完全遮挡的时段。由于采用拆半法估计,曲线不受"先选效应再画曲线"的循环偏倚影响。读图时注意两点:红蓝曲线在物体出现后约 130 ms 同时拉开最大差距,且差异在物体完全可见之前就已发生。C 图为拆半后奇数试次 vs 偶数试次的惊讶指数散点,正相关(r=0.75)说明效应在试次间高度稳定;D 图显示 29 个记忆神经元对偏好(蓝)与非偏好(红)物体的响应在遮挡期后段才分离——选择性延迟活动是"临重现前"重新出现的。此图支撑主要结果 2 与 3。
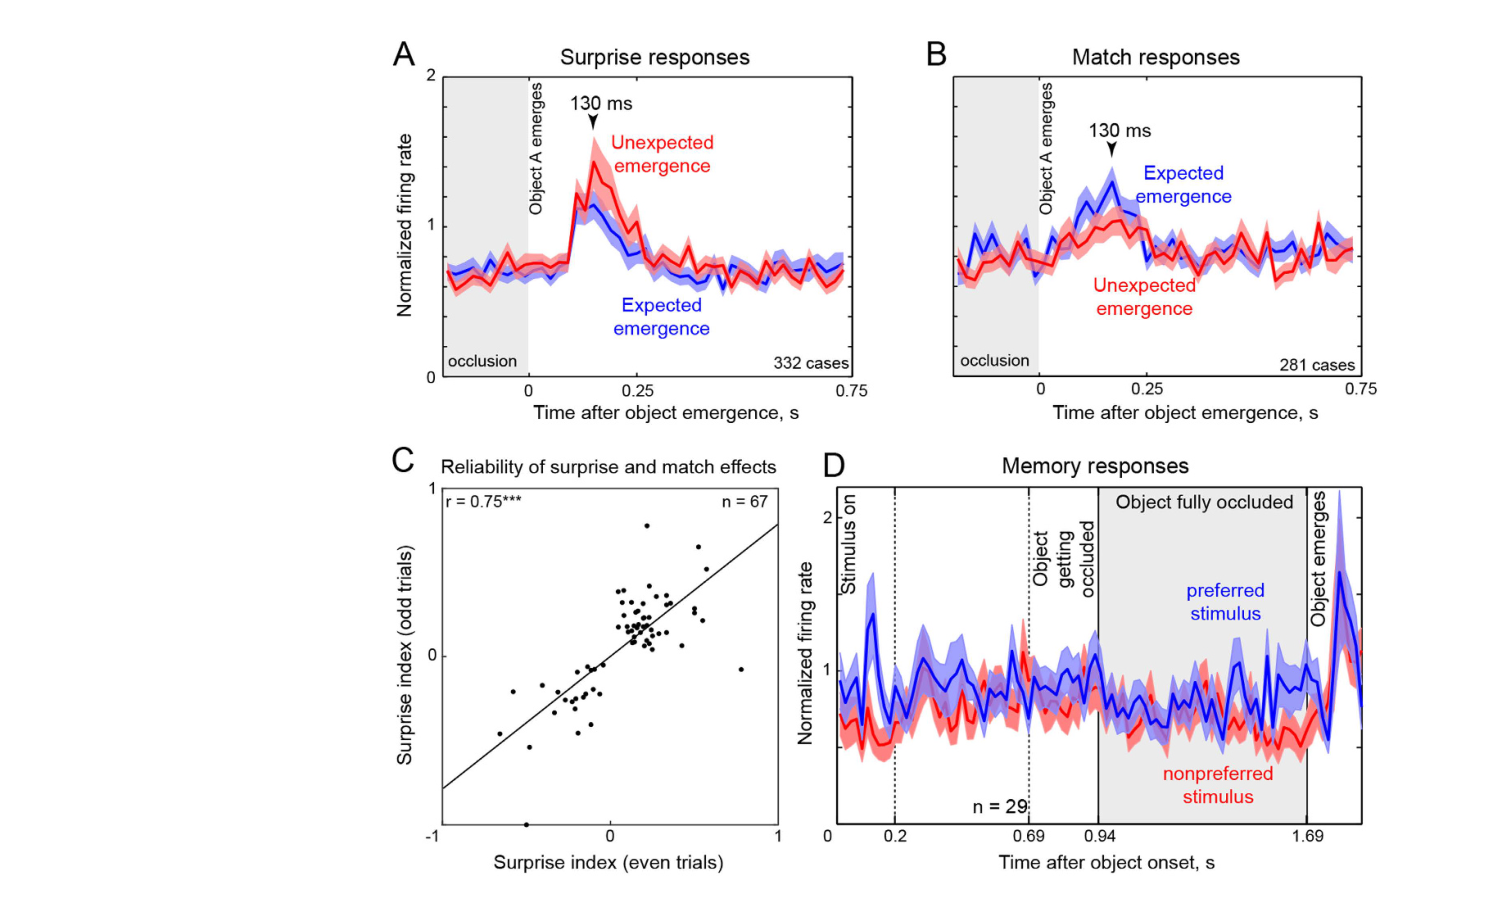
图 3 · 记忆信号与视觉偏好、惊讶/匹配信号的关系
原文图注:Figure 3. Memory signals during occlusion conditions. (A) Memory index plotted against visual preference index for neurons showing a significant memory effect (n = 29). (B) Surprise index for each object plotted against the memory index for that object in the occlusion conditions, for significant surprise effects (n = 45, red squares) and significant match effects (n = 22, blue crosses).
A 图横轴是视觉期(出现后 50–200 ms)的物体偏好指数,纵轴是遮挡末段的记忆指数,29 个记忆效应神经元显著正相关(r=0.44,p=0.019),即遮挡期"惦记"的对象与视觉期偏好的对象一致。B 图把每对效应的惊讶指数(正值=惊讶、负值=匹配)对该物体的记忆指数作散点:红方块(惊讶效应)与蓝十字(匹配效应)都呈显著负相关(r=−0.36 与 −0.56),含义是记忆信号强则匹配强、惊讶弱。这张图支撑主要结果 4 的"记忆与匹配绑定"结论。
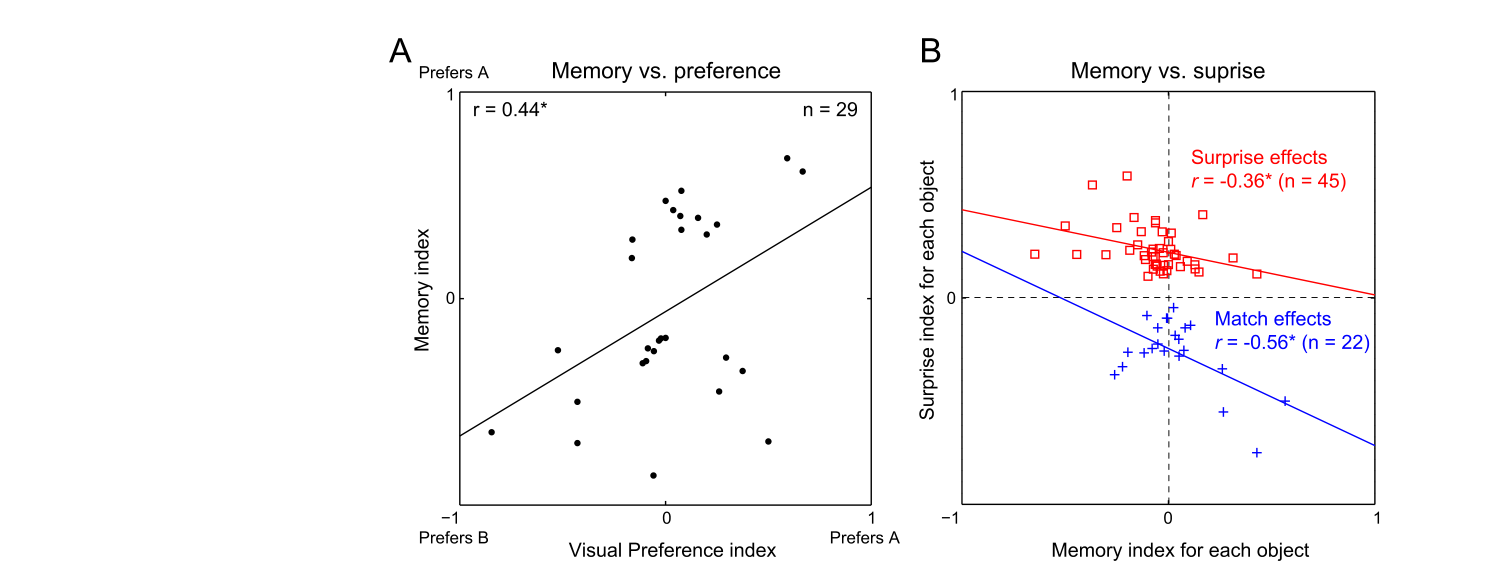
图 4 · 固定点对照下的示例神经元
原文图注:Figure 4. Example responses in the fixation conditions. (A) On each trial in the fixation control conditions, an object appeared at fixation and was replaced by a fixation dot, followed by either the same or different object. (B) Responses of the Fig. 1B neuron in the fixation control conditions. All conventions are identical to Fig. 1. Object images reprinted with permission from Hemera Photo Objects. (C) Responses of the Fig. 1C neuron in the fixation control conditions.
A 图给出对照试次的时间线:没有遮挡板,物体被注视点替换 1,000 ms 后由同一或另一物体接替。B、C 把图 1 中惊讶型与匹配型示例神经元放到对照条件下重新作图,格式与图 1 完全一致。读图要点:在同样的"同一/不同物体先后出现"结构下,两群柱子几乎无差别——惊讶与匹配信号在去掉遮挡后消失了。这张图是主要结果 5 的示例级证据。
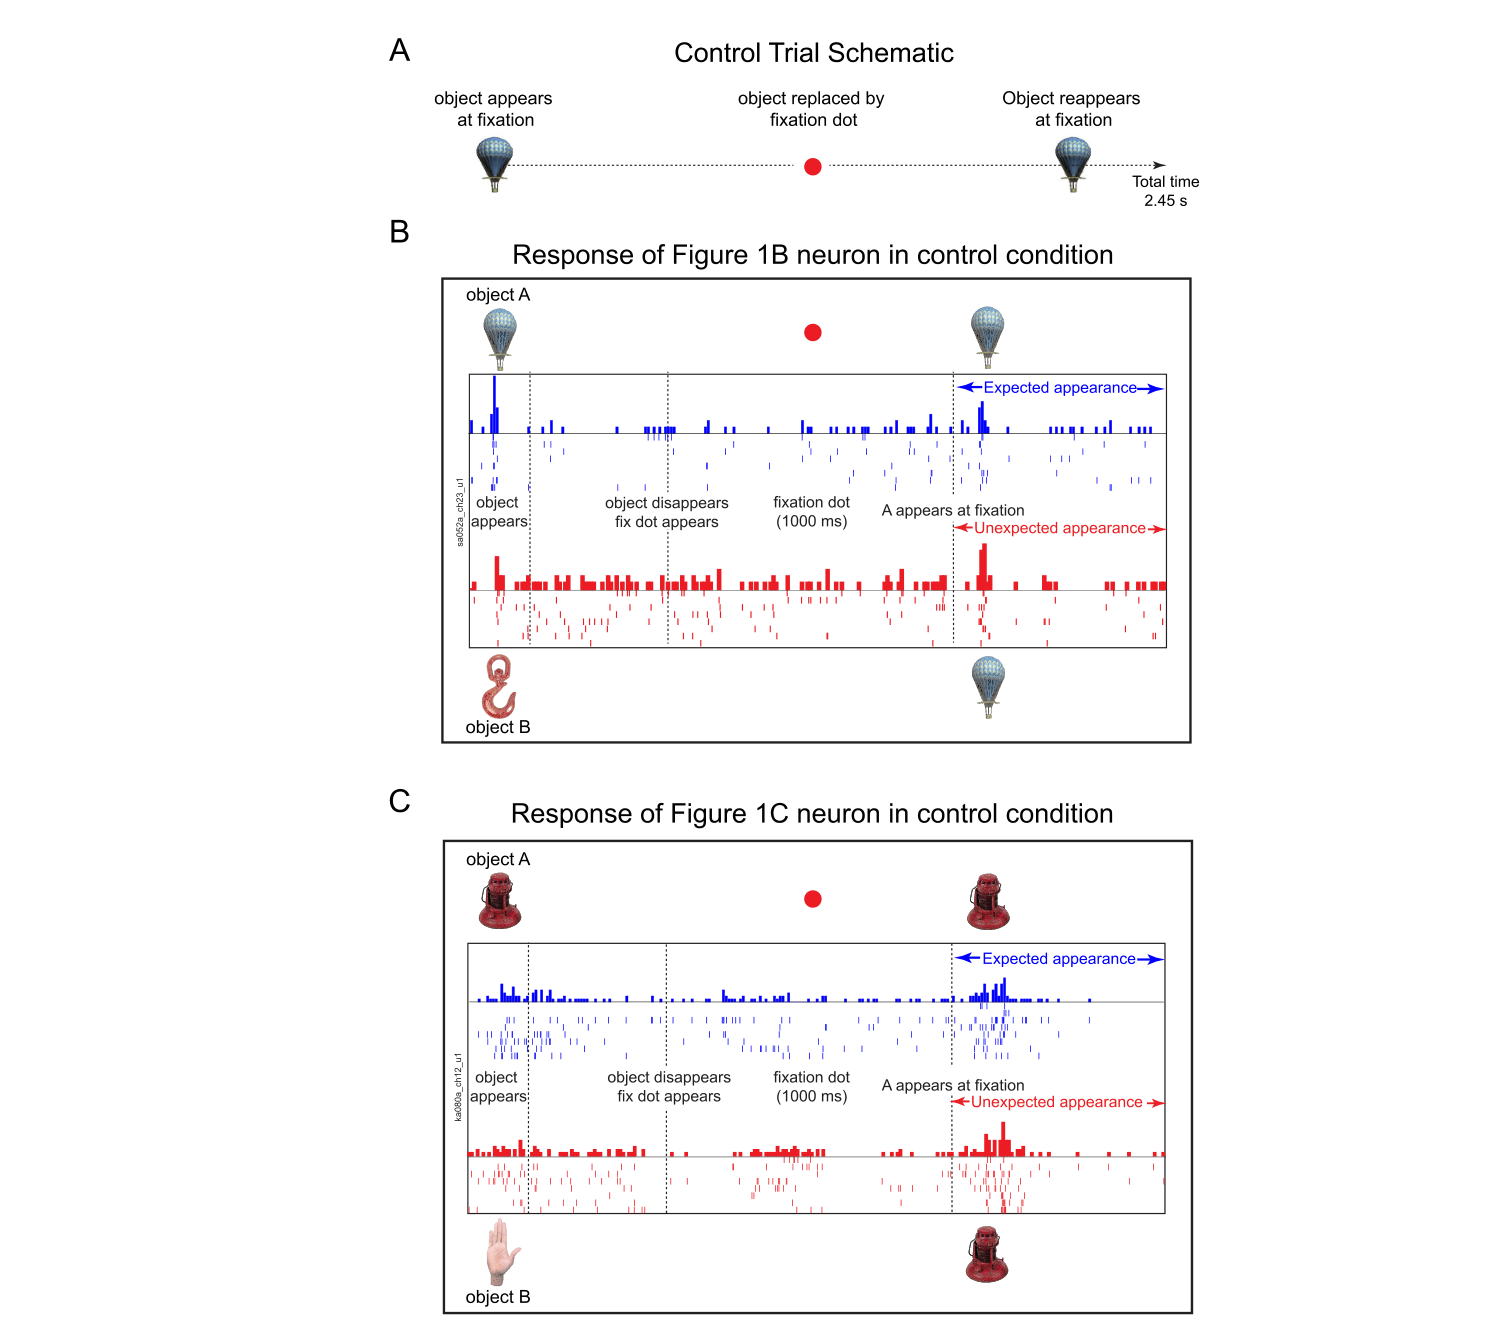
图 5 · 遮挡与对照条件的系统比较
原文图注:Figure 5. Surprise and match signals in occlusion and fixation conditions. (A) Surprise index for the occlusion condition plotted against surprise index for the fixation control conditions (2 pairs/neuron × 788 neurons = 1576 data points). Red squares and black crosses indicate response pairs with a significant effect (p < 0.05) in the occlusion and fixation conditions respectively. Gray dots indicate response pairs with no significant effect. (B) Memory index plotted against the visual preference index for neurons with significant memory effects. (C) Surprise index for each object plotted against the memory index for that object in the fixation conditions, for significant surprise effects (n = 56, red squares) and significant match effects (n = 47, blue crosses).
A 图把 1576 对响应在两种条件下的惊讶指数互相作散点:点云呈圆形、无相关(r=0.01),红方块(遮挡显著)与黑十字(对照显著)几乎不落在彼此的位置上,重叠仅 8 对。B、C 用与图 3 相同的分析重做对照条件:记忆指数与视觉偏好不再相关(r=0.09),惊讶/匹配与记忆也无系统关系(r=−0.24 / −0.17,均不显著)。整张图把"遮挡条件下的信号是遮挡知觉特异的、而非重复呈现的副产物"这一结论定量地钉死,支撑主要结果 5。
讨论
作者用四条理由回应"4% 显著是否只是机会波动"的质疑:机会波动应给出对半的惊讶/匹配比(实际 45/22 显著偏离)、试次间应不稳定(实际拆半相关 0.75)、记忆信号与视觉偏好之间应无关系(实际 r=0.44)、信号强度与记忆强度应无相关(实际都显著)。他们还专门讨论了一个统计哲学问题:在异质群体中检测稀少而特化的亚群时,把全体单元当作同质总体做多重比较校正是错误的——就像电极阵列只有少数触点落在视皮层时,"只有 5% 的单元有视觉响应"不能据此否认定性结论。与既往文献的对话集中在延迟匹配-样本任务中的 match/nonmatch 信号(Baylis & Rolls 1987;Miller & Desimone 等):本文的贡献在于这些信号在无训练动物身上即可出现,且记忆与匹配信号相互关联、遮挡与对照条件下的信号性质不同、惊讶效应在遮挡下远多于对照(尽管对照的刺激间隔更短、按理重复抑制应更强)。作者坦承因果问题未决——前额叶与嗅周皮层在匹配任务中的 match/nonmatch 效应比例更高(IT 约 30%、嗅周皮层约 48%),IT 的少量效应可能只是稀疏反馈的下游;STS、MT、FEF、前运动区也都参与追踪不可见物体,但其是否编码惊讶/匹配信号未被检验。他们猜测惊讶效应占优可能源于对非预期出现的注意,并把这批信号解读为 IT 中"过渡惊讶"信号(Meyer & Olson 2011 的统计学习)的一种形式——由于效应出现在任意挑选的物体上,它应是一种编码自然视觉中时空规律性的通用线路,而非对特定物体的配对学习;至于客体永久性在人类婴儿中是先天还是习得,本文也无法裁定。
一句话总结
该研究的独特之处在于利用“物理刺激相同、内部预期不同”的精细实验设计,将发展心理学的预期违背范式迁移至单细胞电生理记录:在未经行为训练的成年猕猴下颞叶中,证实了一小群神经元能够在遮挡期间维持客体信息,并对随后的重现方式表现出特异性的惊讶或匹配响应。作者通过严谨的检验论证了稀疏特化亚群在异质神经元群体中的统计显著性与生物学意义。同时,该研究的局限性亦十分明确:效应仅见于 4%–8% 的神经元、实验采用被动注视范式,且单只动物内部存在个体差异,这表明下颞皮层具备承载客体永久性信号的潜在神经回路,但尚不足以构成该认知能力的全部充分神经基质。