这篇文章用 PET 探讨正常人脑将轮廓整合成整体知觉(wholistic integration)的区域,并将自下而上整合与储存知识调制的效应区分开。实验任务始终是判断图形偏圆还是偏椭圆,刺激变化主要在于轮廓碎片是否对齐,从而在两个分析中分别考察形状整合与可识别性效应。
研究背景
物体识别模型常把形状知识、意义和名称分别安排为可访问的表征,但在访问这些知识之前,视觉系统还需要把零散边缘组织成一个整体。关于错觉轮廓的生理与成像研究已经揭示局部元素如何形成边界,却不能自动解释多段轮廓怎样成为完整物体形状。视觉失认病例提供了区分这两个层次的线索:双侧枕颞损伤后,局部轮廓加工可能仍在,整体整合却出现困难。由于这种病例少、损伤范围又较广,病变位置不足以精确确定整合机制。图像打乱后梭状回响应降低的成像结果也有歧义,因为打乱同时破坏了形状组织和可识别性。
储存知识的介入进一步增加了问题的复杂性。行为研究表明,即便只要求判断全局形状,物体之间的语义关系仍可能影响反应,而且这种影响依赖局部碎片能否沿轮廓共线排列。这提示“只做物理判断”不保证记忆加工缺席:轮廓组织可能使图像被识别,已激活的知识又可能调节后续知觉。于是,需要区分不依赖识别的整合活动与随可识别性改变的活动,而不能把所有腹侧通路响应都归入其中一端。自然物和人造物的差异也有相同的定位问题:类别效应究竟来自整合本身,还是整合之后对熟悉形状知识的访问?
Gerlach 等人保持圆或椭圆判断不变,比较完整线图、仍然对齐且可识别的共线碎片图,以及翻转碎片后不可识别的非共线图。先寻找所有图像相对简单形状基线的共同活动,再比较可识别与不可识别条件,设计由此尝试把整体整合的共同基础与知识相关调制分开,并进一步检查类别效应的位置。研究指向后部枕颞整合与更前部知识通达之间的分工,但对比隔离并不是对神经过程的直接切割。可识别条件下后部活动增强与再入加工相容,却没有直接测到反馈的方向和时序;碎片安排及任务负荷也仍须结合控制结果讨论。因此本文要建立的是知觉与知识互动的可检验定位框架,而不是仅凭 PET 血流差异就证明一个完整的前馈—反馈回路。
研究思路
研究的核心是将整合与知识效应分置于两个正交分析中。任务始终是判断整体形状是圆还是椭圆(按键作答),要求基于线画本身而非所画物体。被试需要将局部轮廓整合成全局形状,而不论线条是否完整。分析首先以基线(单条轮廓的圆/椭圆)对比全部六种图像条件,并逐项掩膜,用于定位对各类刺激(无论是否碎片、是否可识别)均激活的区域,反映自下而上的整体整合;随后进行可识别(原图与共线碎片)对不可识别(非共线碎片)的跨类别联合分析,寻找受储存知识调制的区域。碎片刺激的制作控制了对比条件:共线版删去约一半轮廓,碎片仍沿虚拟轮廓对齐(可识别);非共线版将碎片逐一镜像翻转且不重叠,依旧围绕虚拟轮廓但不再对齐,刺激不可识别,经 10 名独立评判在 200 ms 呈现下均未命名确认。第三步对可识别任务进行“任务类型(原图 vs 共线)× 类别(自然物 vs 人造物)”因子分析,检验类别效应是否出现在该阶段;刺激选自标准化图库(32 种自然物、32 种人造物,形状均明确偏圆或偏椭圆)。
方法
10 名右利手健康志愿者(4 女 6 男,22–27 岁,平均 24.5 岁),7 个任务各重复两次、共 14 个扫描条件。PET 用 18 环 GE-Advance 扫描仪 3D 采集(35 层,层间距 4.25 mm,面内分辨率约 5 mm),每人静脉团注 14 次 H₂¹⁵O(340 MBq),扫描间隔 8–10 min;任务在示踪剂到达脑前约 18 s 启动、持续到采集前 30 s 结束,任务结束后看空白屏 60 s,总采集 90 s(该协议旨在减少洗出、提升计数统计比)。分析用 SPM-96:刚体对齐、与结构 MRI 配准、按 MNI 口径的 Talairach 图谱标准化(2×2×2 mm 体素)、16 mm 各向同性高斯平滑、全局计数比例归一;逐体素给出 SPM{Z},体素阈值 P<0.05 经多重比较校正(Z>4.4),联合分析与主效应均用 Price 与 Friston 的认知联合法(两简单对比之和再剔除二者差异显著的体素)并以掩膜保证每个简单对比都有贡献。每任务 32 个刺激,白绘黑底,屏幕距眼 75 cm;刺激呈现 200 ms、间隔 1300 ms,任务共 48 s;每任务 16 圆 16 椭圆,任务顺序在被试间随机。错误率按偏离实验者评定的幅度计算,行为分析纳入正确与错误反应的 RT(单独用正确 RT 不改变结果)。
主要结果
- 行为上基线条件确如设计所愿:RT 416±88 ms,显著快于其他所有任务(任务主效应 F(6,131)=7.41,P<0.001;Dunnett 事后比较均 P<0.01),错误率最低(1.5%);六种图像任务 RT 在 571–670 ms、错误率 8.9%–21.0%,自然物略慢于人造物(表 2、3)。
- 整体整合的定位(图 2 黄/浅蓝,表 1):全部图像任务对基线的总对比(并以六个单独对比掩膜)给出双侧腹侧枕叶与颞叶极后部激活——主峰在双侧下枕回(BA 18;左 −28,−94,−8,Z=8.15;右 22,−98,−16,Z=7.87),激活向上进入中枕回(BA 19)、向前进入左后梭状回 BA 37(−46,−66,−18,Z=7.93)与右下颞回 BA 37(46,−68,−14,Z=7.86)。依解剖与成像证据,下枕回峰可能对应 V2,与错觉轮廓成像结果非常相似。
- 两个混淆被排除:未见 V1 激活(若有轮廓量差异效应应有 V1);五处峰区的平均调整 rCBF 与 RT 无显著相关(Pearson r,N=12,P>0.25),且轮廓更多的原图与轮廓更少的共线图间无一致血流差别(图 3)——故激活反映整体整合,而非视觉复杂度或判断难度。
- 储存知识的调制(图 2 深蓝,表 4):可识别 vs 不可识别的跨类别联合分析主要落在左半球——左后下颞回 BA 37(−48,−66,−12,Z=5.69)、左中枕回 BA 19(−38,−80,16,Z=5.19)、左前梭状回 BA 37(−34,−40,−18,Z=5.67),外加右后下颞回 BA 37(44,−76,−16,Z=4.48);右前梭状回(34,−36,−18,Z=3.75)仅当掩膜阈值降到未校正 P<0.05 才出现,说明该差偏左。关键的结构分离:左前梭状回激活不在"排除知识效应的整体整合"对比中出现(即便降阈值也没有;图 2 只有深蓝无浅蓝),故其反映对物体知识的通达——最像把视觉形状匹配到记忆(相当于通达结构描述系统);而后部梭状回/下颞回与左中枕回既参与整合又被知识调制(黄蓝重叠)。行为上可识别与不可识别刺激的 RT 并无总差(636 vs 621 ms,t116=−0.49,P=0.62)——作者据此声明行为总体差异的缺失并不构成反证(轮廓间距等未控因素可掩盖)。
- 类别效应只利于自然物一侧、且不与整合过程绑定(图 2 红):唯一显著的主效应是自然物——左前梭状回(−42,−42,−22,Z=4.86)与右下颞回更前部(44,−46,−4,Z=4.55)激活更强,且右下颞回的这个焦点比"可识别效应"的位置更靠前;无任务×类别交互、无任务或类别专属效应(即便未校正 P<0.001)。行为上自然物 RT 更慢(类别主效应 F(1,18)=15.5,P<0.001)、错误率更高,但不可识别的非共线版同样偏慢(t19=−6.48,P<0.001),故不能把 RT 差归属到整合过程。此外顶叶未见参与单物体整体整合,与特征整合理论(Treisman 与 Gelade)的预期相悖;作者猜与只呈现单个物体、限制跨物体竞争有关。
图注解读
图 1 · 刺激样例
原文图注:Fig. 1. Examples of the stimuli presented in the task with: (a) outline drawings of natural objects, (b) collinear drawings of natural objects, (c) non-collinear drawings of natural objects, (d) outline drawings of artifacts, (e) collinear drawings of artifacts, and (f) non-collinear drawings of artifacts.
读法:六格对应六个图像任务:自然物与人造物的线条原图(a、d)、碎片对齐可识别的共线版(b、e)、碎片翻转后不可识别的非共线版(c、f)。任务(圆/椭圆判断)、每任务刺激数量与呈现时长保持恒定,主要变量为轮廓碎片的对齐性,从而将整合操作与识别效应区分开,对应“研究思路”节。
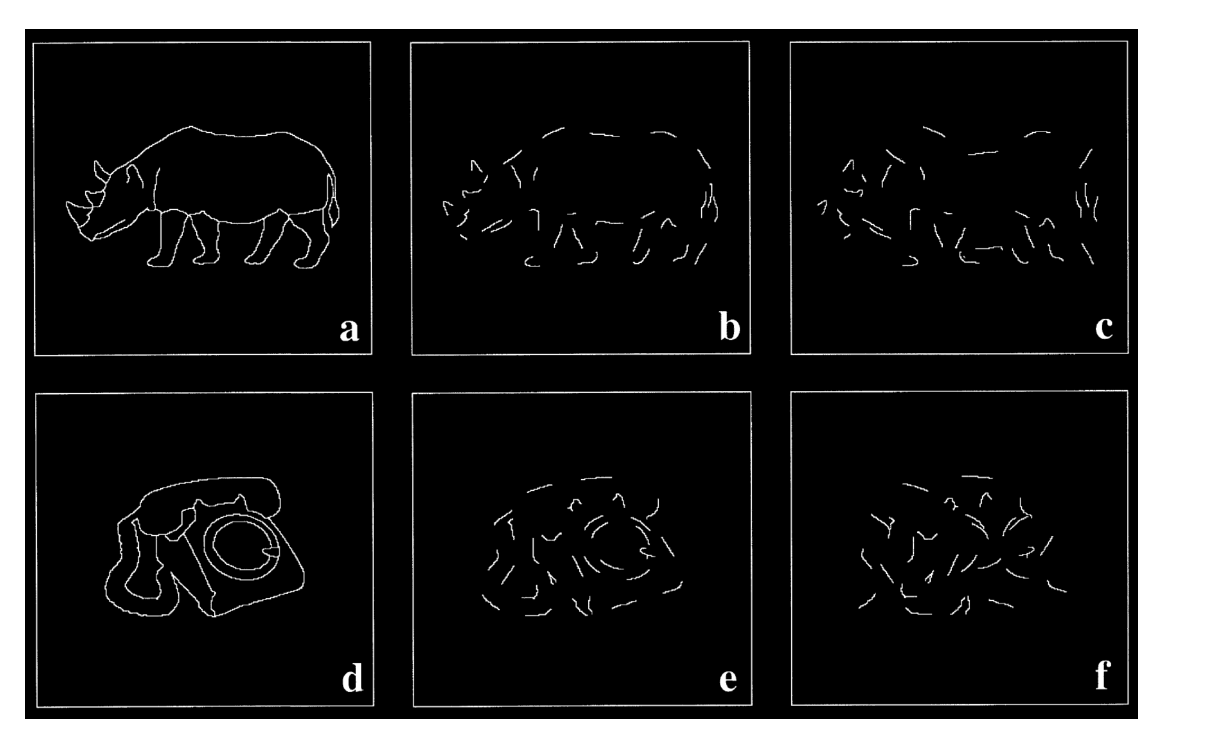
图 2 · 三组对比的皮层叠加图
原文图注:Fig. 2. Six horizontal sections showing the areas associated with: wholistic integration = yellow, recognizable vs. unrecognizable objects = dark blue, natural objects vs. artifacts = red, the overlap between wholistic integration and recognizable objects = light blue. The activated areas are superimposed on a template anatomical MRI scan in co-registration with the Talairach atlas. The SPM{Z}'s were thresholded at a level of P < 0.001 uncorrected (Z > 3.09). In each slice, the left cerebral hemisphere is displayed to the left.
读法:六个水平切面上,黄色区 = 整体整合(全部图像任务 vs 基线并经掩膜)、深蓝区 = 可识别 vs 不可识别、红色区 = 自然物 vs 人造物,黄蓝交叠的浅蓝区 = 既做整合又被可识别性调制的区域;左半球画在左边。注意图上阈值(Z>3.09,未校正)低于正文正式阈值(Z>4.4 校正),是用于展示空间分布的放宽阈值。这张图是主要结果第 2、4、5 条的空间证据:下枕回几乎只有黄色(不受可识别性影响),后部梭状回/下颞回黄蓝相间(整合+知识调制),左前梭状回只有深蓝(只管知识通达,不管整合)——"知觉 vs 记忆"的解剖分离被颜色直接画了出来。
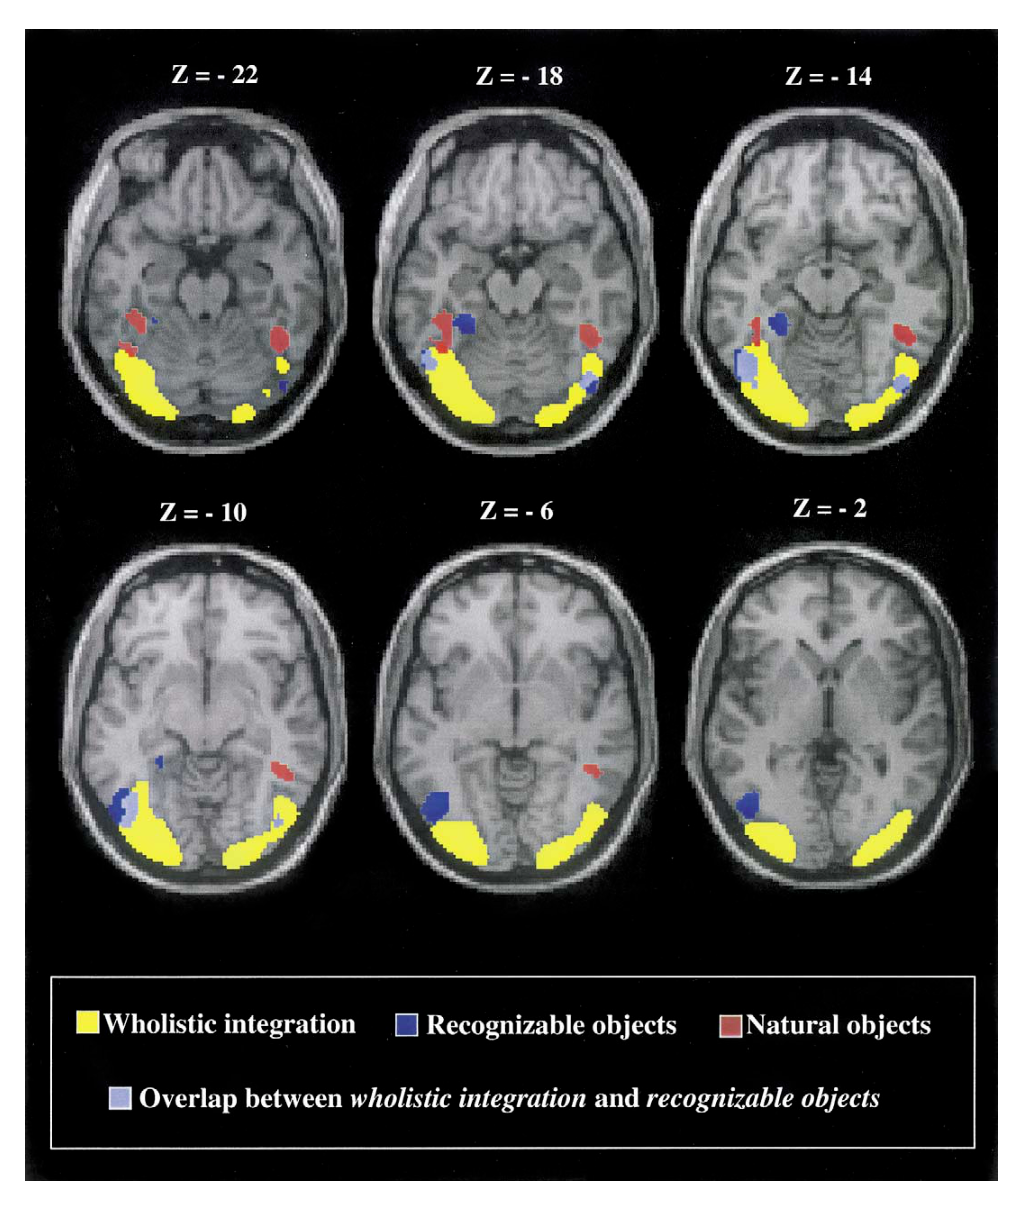
图 3 · 五处峰区在七个任务下的 rCBF 曲线
原文图注:Fig. 3. Plots of the mean adjusted rCBF value for the seven conditions in each of the five regions associated with peak-activations in the contrast between the baseline tasks and the tasks with pictorial stimuli. There are three points to note from this figure: (i) there appears to be no consistent relationship between the mean rCBF values and the mean RTs (given in Table 3) for the tasks with pictorial stimuli suggesting that these activations do not reflect task difficulty per se, (ii) there is no consistent difference between tasks with outline drawings and tasks with collinear forms suggesting that these activations are unlikely to reflect differences in visual complexity related to the amount of contour present in the stimuli, and (iii) differences between tasks with recognizable and tasks……
读法:摘要注在原文即被截断于第 (iii) 点,据正文其含义为:可识别与不可识别的血流差别只在下枕回以前的区域出现。每块小图对应表 1 中一处峰区,横轴为七个任务、纵轴为平均调整 rCBF。它的作用是给作者"排除难度与复杂度混淆、并说明下枕回不受知识调制"的说法提供原始数据支撑,对应主要结果第 3、4 条。
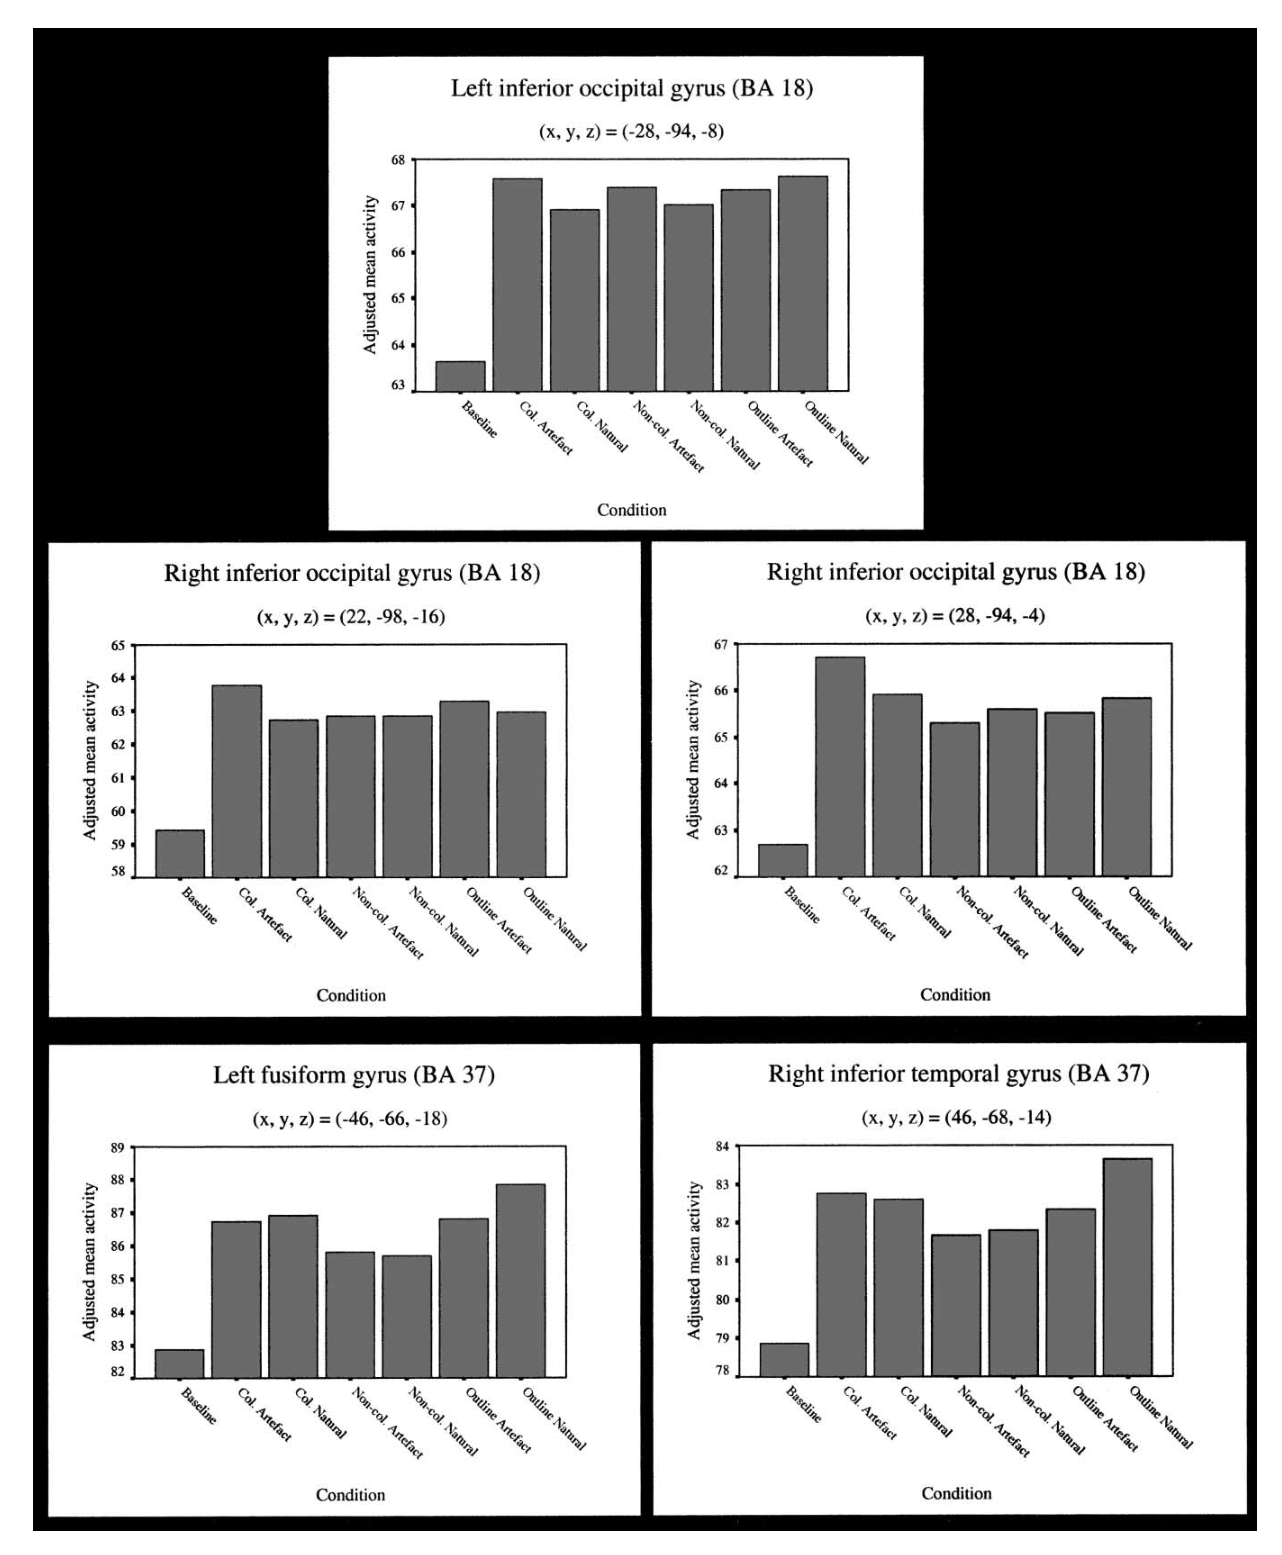
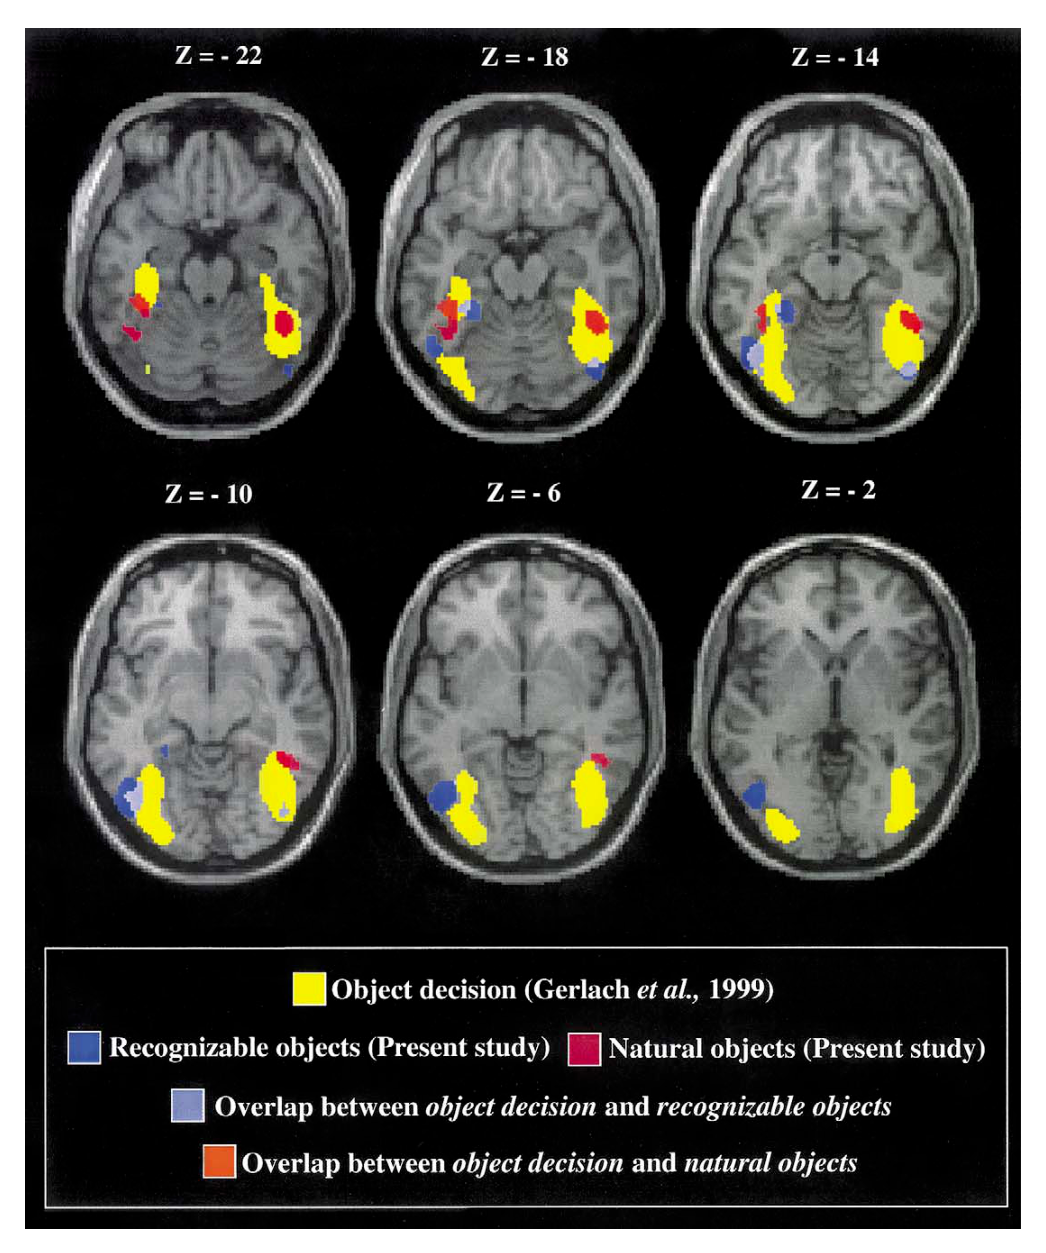
图 4 · 与前作物体决定研究的叠加
原文图注:Fig. 4. Six horizontal sections showing the areas associated with: object decision vs. pattern discrimination [17] = yellow, recognizable objects vs. unrecognizable objects = dark blue (present study), natural objects vs. artifacts = red (present study), the overlap between object decision and the processing of recognizable objects = light blue, and the overlap between object decision and natural objects = orange. The activated areas are superimposed on a template anatomical MRI scan in co-registration with the Talairach atlas. The SPM{Z}'s were thresholded at a level of P < 0.001 uncorrected (Z > 3.09). In each slice, the left cerebral hemisphere is displayed to the left.
读法:黄色 = 前作 [17] 的物体决定减图案辨认(物体决定任务被认为主要触及储存的结构知识);深蓝与红 = 本研究的"可识别减不可识别"与"自然物减人造物";浅蓝 = 物体决定与可识别加工程重叠,橙色 = 物体决定与自然物加工的重叠。读点在于:物体决定激活区与本研究可识别加工大量重叠(浅蓝),而自然物一侧与它重叠得更醒目(橙色)——跨研究汇聚出"左前梭状回/右前下颞是结构知识通达带、自然物尤其需要感知分化"的主线,对应主要结果第 4、5 条。
讨论
对可识别刺激在梭状回/下颞回后部更强激活,作者的解释是自上而下的再入(re-entrant)加工而非"轮廓更难整合"——因为行为上并无共线性效应。证据链是:同一对比还激活了此前与储存结构知识通达相关的左前梭状回;可识别刺激激活储存的结构表征,这种再入增强放大了该区自下而上的整合。偏侧化上左半球更明显,但联合分析可能掩盖右半球——更前部的右下颞回只在自然物条件下激活,提示右半球同样接触储存知识,这与失认症患者典型的双侧腹后部损伤相合。数据还支撑一个表述干净的双分离:后区(下枕回与后部梭状回/下颞回)在刺激完全不可识别时也做知觉加工(整合),前区(左前梭状回与更前的右下颞回)只在可识别时投入(储存视觉知识通达)——知觉与记忆阶段因此在功能与解剖上都可以分离。作者指出这难以用不区分知觉与记忆两阶段的模型解释,却与失认症里统觉型/联想型的长期区分一致。顶叶的零结果对特征整合理论是个问题——按该理论特征结合要通过顶叶介导的聚焦注意——作者给的解释是单物体呈现限制了跨物体的整合竞争(顶叶可能经注意偏向之间的竞争起作用,或它维持特征与位置的联结,而物体内部的整合由腹侧视觉区负责;腹侧而非背侧损伤才出现物体内部特征关系的问题)。
关于自动性与类别:被试只被要求注意整体形状,储存的结构知识仍被激活,这直接支持 Boucart 与 Humphreys"不会不加识别地只注意全局形状"的结论;最有力的证据是类别效应出现在左前梭状回与更前部的右下颞回——若被试没有认出刺激,这种效应难以解释。类别效应本身则接续 Humphreys 等的假设:自然物彼此在视觉上更相似、感知上更难区分,识别它需要更大的感知分化;前作在困难物体决定中已见右下颞回与前右梭状回 rCBF 升高且自然物激活面积更大、更双边,本研究在一个强调整体整合的范式里再现了同样的模式——自然物在视觉长期记忆中激起的结构相关表征范围更广。人造物没有专属激活这一点也有交代:以往的人造物特异性激活多来自"工具 vs 动物"的对照,可能只适用于工具子集;即便把工具以外的人造物纳入(作者 [17,18] 的做法),物体决定任务上也不见人造物种别效应,但在要求通向语义的任务上见到了(左运动前区皮层在人造物分类时强于自然物分类与对人造物的物体决定)——合起来看,人造物的类别效应不出现在"匹配视觉记忆"的早期阶段,而只在触及语义的后期阶段;本研究的任务更可能通达结构而非语义知识,故此处的"人造物零效应"与该观点自洽。
一句话总结
该研究通过与识别内容无关的物理判断任务,考察了无意识参与下的物体知识激活过程:下枕回表现出自下而上的轮廓整合,梭状回活动与可识别性相关,而物体结构知识通达主要反映在更前部区域,展示了知觉整合与结构记忆加工在解剖上的分离可能。