该研究基于具备突触可塑性的脉冲神经网络模型,探讨了局部兴奋/抑制(E/I)失衡如何通过网络自组织演化扩散至全脑网络。模拟结果显示,局部 E/I 比率升高会通过脉冲时序依赖可塑性(STDP)驱动突触过度连接,降低神经活动的时间复杂度,并削弱网络对外部输入的信息传递能力。该模型为自闭症谱系障碍等神经精神疾病中观察到的“局部过度连接”与“脑电低复杂度”提供了可能的计算环路机制解释。
研究背景
兴奋与抑制的动态平衡是神经网络维持生理活动与信息传递的基础。自闭症谱系障碍(ASD)等神经精神疾病在中间神经元、受体亚型及动物模型中均表现出 E/I 失衡迹象;脑电(EEG)与脑磁图(MEG)研究亦常报告患者神经活动的多尺度熵等非线性复杂度降低。与此同时,脑连接研究呈现出局部过度连接与长程连接减弱并存的复杂表现。这些在不同时空尺度下观察到的病理特征之间是否存在因果联系,以及神经活动复杂度下降究竟源于局部环路失调还是网络拓扑改变,尚缺乏明确的环路演化机制解释。
既往计算模型多采用全局抑制减弱方案考察放电动力学、振荡稳定性或信息传递,难以直接解释局灶性环路失衡如何波及其他未受损区域。此外,部分研究在预设过度连接的静态拓扑下分析复杂度,未阐明病理连接结构随神经活动演化的动态形成过程。脉冲时序依赖可塑性(STDP)为连接与活动的双向互塑提供了可能途径:局部抑制减弱改变神经元放电时序,放电时序通过 STDP 调节突触权重,重塑后的突触结构反过来进一步调节全网活动模式。因此,核心问题在于检验在活动与连接的闭环反馈中,局部 E/I 扰动是否足以自组织驱动全局病理表型,以及突触可塑性在其中发挥的关键作用。
本研究构建了由多个相互连接的神经元群组成的脉冲神经网络,仅在单个神经元群中调控抑制性中间神经元数量或突触抑制强度,并允许兴奋性突触遵循 STDP 规则进行自组织更新。研究从两群拓展至十群环状网络,系统分析了突触权重、放电率、多尺度熵复杂度及外部输入信息传递的变化,并设置无突触可塑性条件作为对照。需要指出的是,该模型固定了抑制性突触权重,简化了神经元亚型与网络解剖拓扑,未包含抑制性可塑性及突触稳态调节机制;因此,该计算实验旨在检验特定假设下的环路自组织动力学,不能直接推论真实临床疾病的完整病理过程,亦不能将电生理复杂度直接等同于高级认知与行为表现。
研究思路
研究假设突触结构与神经元活动之间存在双向耦合的正反馈环路,局部 E/I 失衡在该环路中被逐步放大:抑制减弱导致局部放电率上升,频繁放电促使 STDP 强化兴奋性突触连接;增强的突触连接进而提升神经元同步化放电程度,使活动的多尺度熵复杂度降低;此异常动力学随后沿群间长程投射扩散至全网。为检验该机制,研究仅在单个神经元群内独立操控抑制性神经元数量(NI)与抑制性突触权重(WIE),兴奋性连接则完全由 STDP 自组织演化。评估指标覆盖结构与功能两方面:结构层面测量自组织演化后的群内与群间平均突触权重;功能层面通过多尺度熵(MSE)量化动态复杂度,并通过互信息(MI)与传递熵(TE)评估网络对时变外部输入的编码与传递效率。模型首先在两群系统中阐明微观机制,随后拓展至对称同质的十群环状网络以验证局部病灶的全局扩散效应。
方法
网络模型由若干神经元群组成,每群包含 800 个兴奋性神经元(采用 Izhikevich 模型的规则放电 regular-spiking 神经元)与 NI 个抑制性神经元(快速放电 fast-spiking 神经元,对应小清蛋白阳性中间神经元)。每个兴奋性神经元建立 70 个群内连接与 30 个群间连接(符合皮层锥体神经元局部与长程投射约 7:3 的解剖比例),传导延迟分别设定为 2–4 ms 与 4–10 ms;抑制性神经元仅建立 100 个群内连接,无群间长程投射,且其突触权重固定不变。兴奋性突触权重遵循 Pfister 与 Gerstner 的三联 STDP 规则进行更新。仿真总时长为 1520 s,积分步长为 0.05 ms,STDP 机制在仿真第 5 s 至 1500 s 期间生效,全程施加 0.6 Hz 的齐次泊松背景输入。局部 E/I 调控参数设置如下:NI ∈ {100, 150, 200(基线), 250, 300}、WIE ∈ {0.0125, 0.01875, 0.025(基线), 0.03125, 0.0375};十群模型选取三种典型条件进行对比分析:H-E/I(高 E/I 条件,NI=100 且 WIE=0.0125,抑制最弱)、B-E/I(基线条件)以及 L-E/I(低 E/I 条件,NI=300 且 WIE=0.0375,抑制最强),每种实验条件独立重复仿真 20 次。
数据分析中,各神经元群的总体活动通过局部平均电位(LAP,即群内兴奋性神经元膜电位的瞬时均值)表征。MSE 计算方法为:将 LAP 信号下采样至 1 ms,对 100 个粗粒化尺度依次计算样本熵(嵌入维数 m=2、相似性容限 r=0.15),整体复杂度定义为 100 个尺度上样本熵的累加和。信息传递测试方面,在仿真第 1515 s 向特定神经元群施加持续 5 s 的非齐次泊松外部输入(瞬时频率满足 λ(t) = 25 sin²(2πt)),计算各群活动与输入信号之间的互信息(MI),以及从受刺激群流向其余各群的传递熵(TE,采用 JIDT 工具包中的 Kraskov 估计器计算,历史窗口长度 k=140,对应 7 ms)。统计检验方面,两群模型中各参数组合与基线组(NI=200、WIE=0.025)采用 Welch's t 检验,十群模型的三条件差异采用 Tukey 事后检验。
主要结果
- 局部 E/I 比率升高驱动全网络突触连接权重普遍增强(图 2):在两群模型中,当失衡群的 E/I 比率升高(抑制减弱)时,失衡群自身的群内连接、平衡群的群内连接以及双向群间连接权重均显著增大;反之当 E/I 比率降低时,失衡群连接轻微增加,平衡群连接略有减弱。
- 高 E/I 条件导致两群放电率同步上升(图 3):两群的兴奋性与抑制性神经元放电率均随 E/I 比率升高而增加,这与突触连接权重的自组织增强相对应。
- 神经活动复杂度随 E/I 比率升高而显著下降(图 4):两群的 MSE 总和均随 E/I 升高而单调降低,且降幅主要集中在较粗的尺度因子上;由于粗粒化处理相当于低通滤波,这反映了低频信号时间复杂度的明显缺失。关键对照表明:在移除 STDP 机制的对照网络中,即使局部 E/I 失衡,放电率与复杂度依然保持较低水平,且平衡群未受失衡群波及,证实了“局部失衡驱动全局复杂度下降”依赖于突触可塑性的自组织介导。
- 十群模型中局部高 E/I 导致全网过度连接与广泛低复杂度(图 5、图 6):在 H-E/I 条件下,所有神经元群的群内与群间突触权重均显著高于 L-E/I 与基线组,且失衡群周围的连接强化最为突出;复杂度显著降低的节点与突触连接增强最明显的节点高度重合,尤其是接收较多传入群间连接的神经元群复杂度下降最为剧烈。
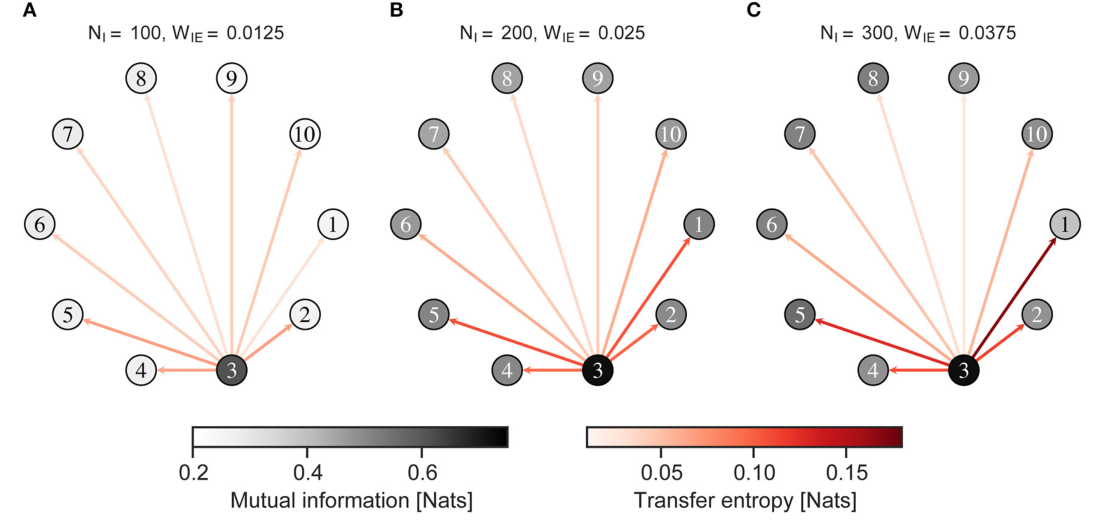
- 局部高 E/I 全局性抑制信息传递效率(图 7、图 8):无论将外部时变输入注入失衡群 1 还是平衡群 3,H-E/I 条件下全网各群与输入信号的 MI 以及输入群向外输出的 TE 均显著低于基线和 L-E/I 条件;在 L-E/I 条件下 TE 略有升高,但当输入给予平衡群 3 时,失衡群的 MI 略低于基线(Tukey 检验 p = 0.017)。
图注解读
图 1 · 神经元群模型:两群与十群两种配置
原文图注:Neuron group model. (A) Intra- and interconnections in a model with two neuron groups. (B) A network model using ten neuron groups. Each neuron group comprises excitatory (red nodes) and inhibitory (blue nodes) neurons, as shown in (A). Excitatory neurons have intra- (black arrows) and interconnections (purple arrows), and inhibitory neurons have intraconnections only. Each white circle indicates a neuron group and purple arc arrows show connections between neuron groups. ……
该示意图展示了计算模型的网络架构:红色与蓝色节点分别代表兴奋性与抑制性神经元,黑色箭头表示群内连接,紫色箭头表示群间长程连接;核心设置在于仅对 1 号群(失衡群)的抑制性中间神经元数量(NI)及突触权重(WIE)进行操控,其余各群保持基线参数。该图说明了局部病理扰动的具体拓扑位置,对应方法部分对网络构建的描述。
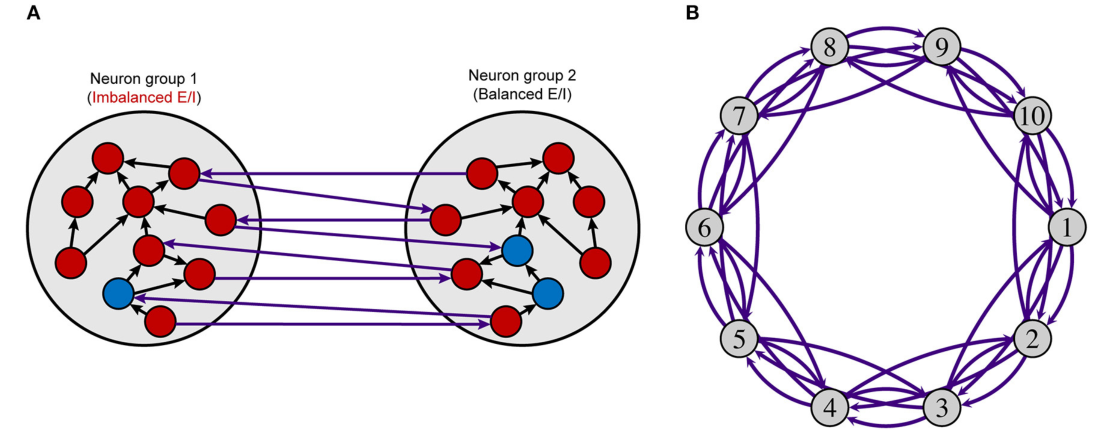
图 2 · 两群模型:E/I 比升高后群内与群间连接权重全面增强
原文图注:The average weights of intra- and interconnections after self-organization in the model with two neuron groups. (A) The average weights of intraconnections in the imbalanced neuron group. (B) The average weights of intraconnections in the balanced neuron group. (C) The average weights of interconnections from the imbalanced neuron group to the balanced neuron group. (D) The average weights of interconnections from the balanced neuron group to the imbalanced neuron group. The x- and y-axes show the number of inhibitory neurons (NI) and weights from inhibitory neurons to excitatory neurons (WIE) in the imbalanced neuron group, respectively. ……
该图展示了两群模型自组织演化后的突触权重分布:横轴为失衡群抑制性神经元数量 NI,纵轴为抑制性突触权重 WIE,二者共同决定局部 E/I 比率(左下角代表抑制最弱、E/I 最高的参数组合)。各格点数值为 20 次仿真的平均权重与标准差,星号标示相比基线参数的 Welch's t 检验显著性。结果显示高 E/I 区域的突触权重显著高于基线,且子图 (B)、(C)、(D) 同步升高,表明局部失衡效应通过长程投射扩散至平衡群,对应“主要结果”第 1 条。
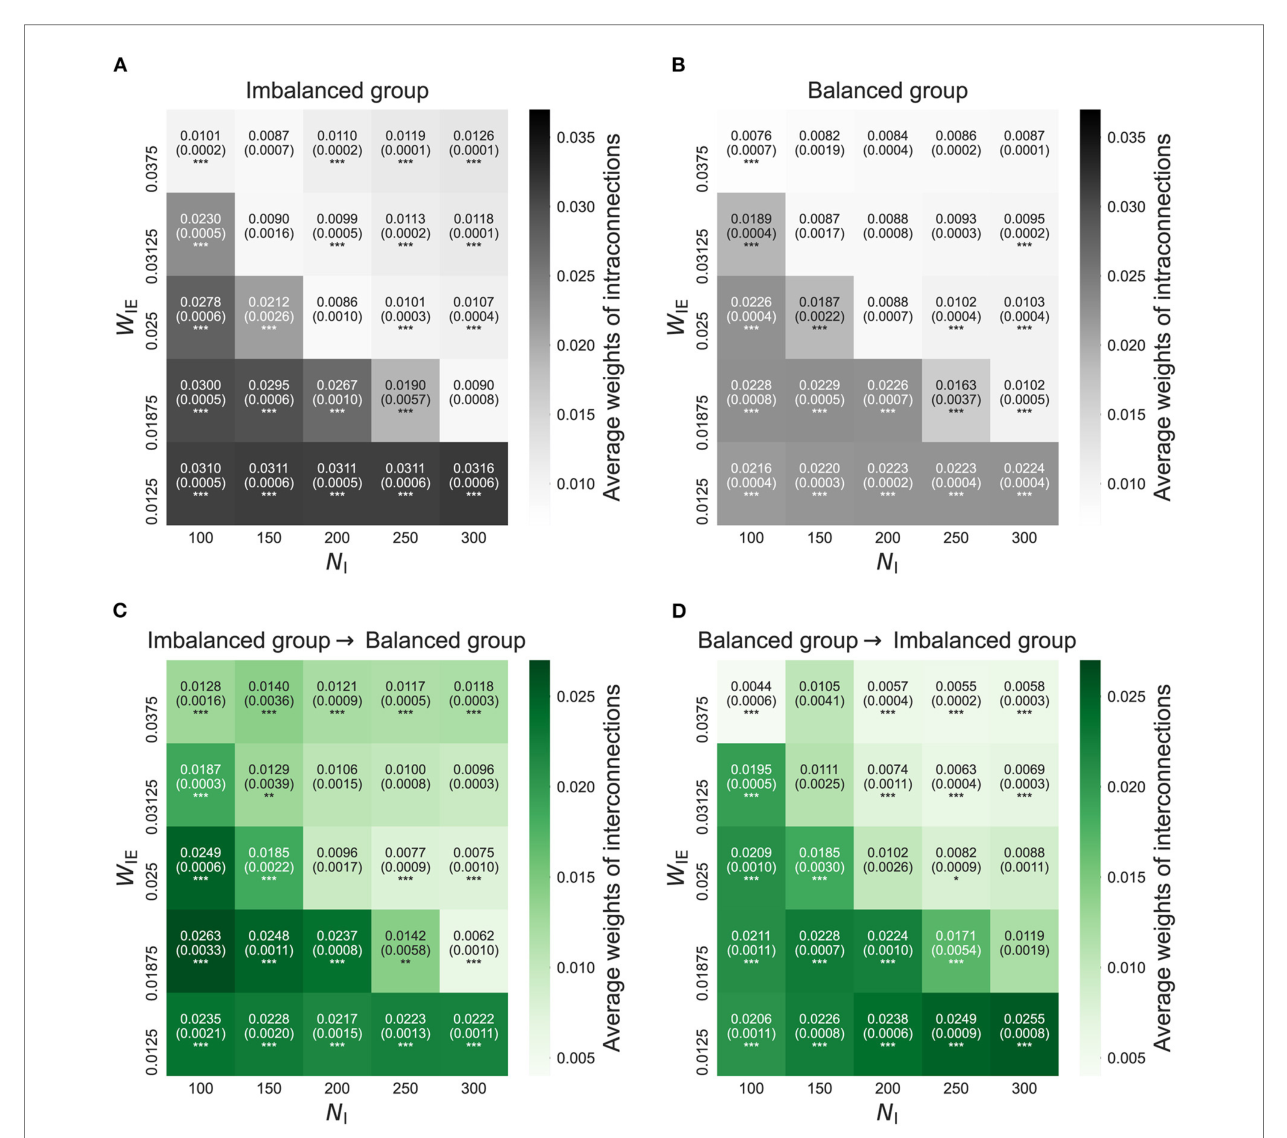
图 3 · 两群模型:两个群的放电率都随 E/I 比升高而上升
原文图注:Firing rate after self-organization in the model with two neuron groups. (A) Firing rate of excitatory neurons in the imbalanced neuron group. (B) Firing rate of excitatory neurons in the balanced neuron group. (C) Firing rate of inhibitory neurons in the imbalanced neuron group. (D) Firing rate of inhibitory neurons in the balanced neuron group. The x- and y-axes show the number of inhibitory neurons (NI) and weights from inhibitory neurons to excitatory neurons (WIE) in the imbalanced neuron group, respectively. ……
该图参数坐标与图 2 一致,记录各神经元亚群的平均放电率。由 (A) 和 (B) 可见,随抑制强度减弱(NI 与 WIE 下降),失衡群与平衡群的兴奋性神经元放电率均同步上升;(C) 和 (D) 显示抑制性神经元放电率亦呈类似上升趋势。这一结果验证了“局部抑制减弱→全网放电率升高→STDP 突触强化”这一机制链条,对应“主要结果”第 2 条。
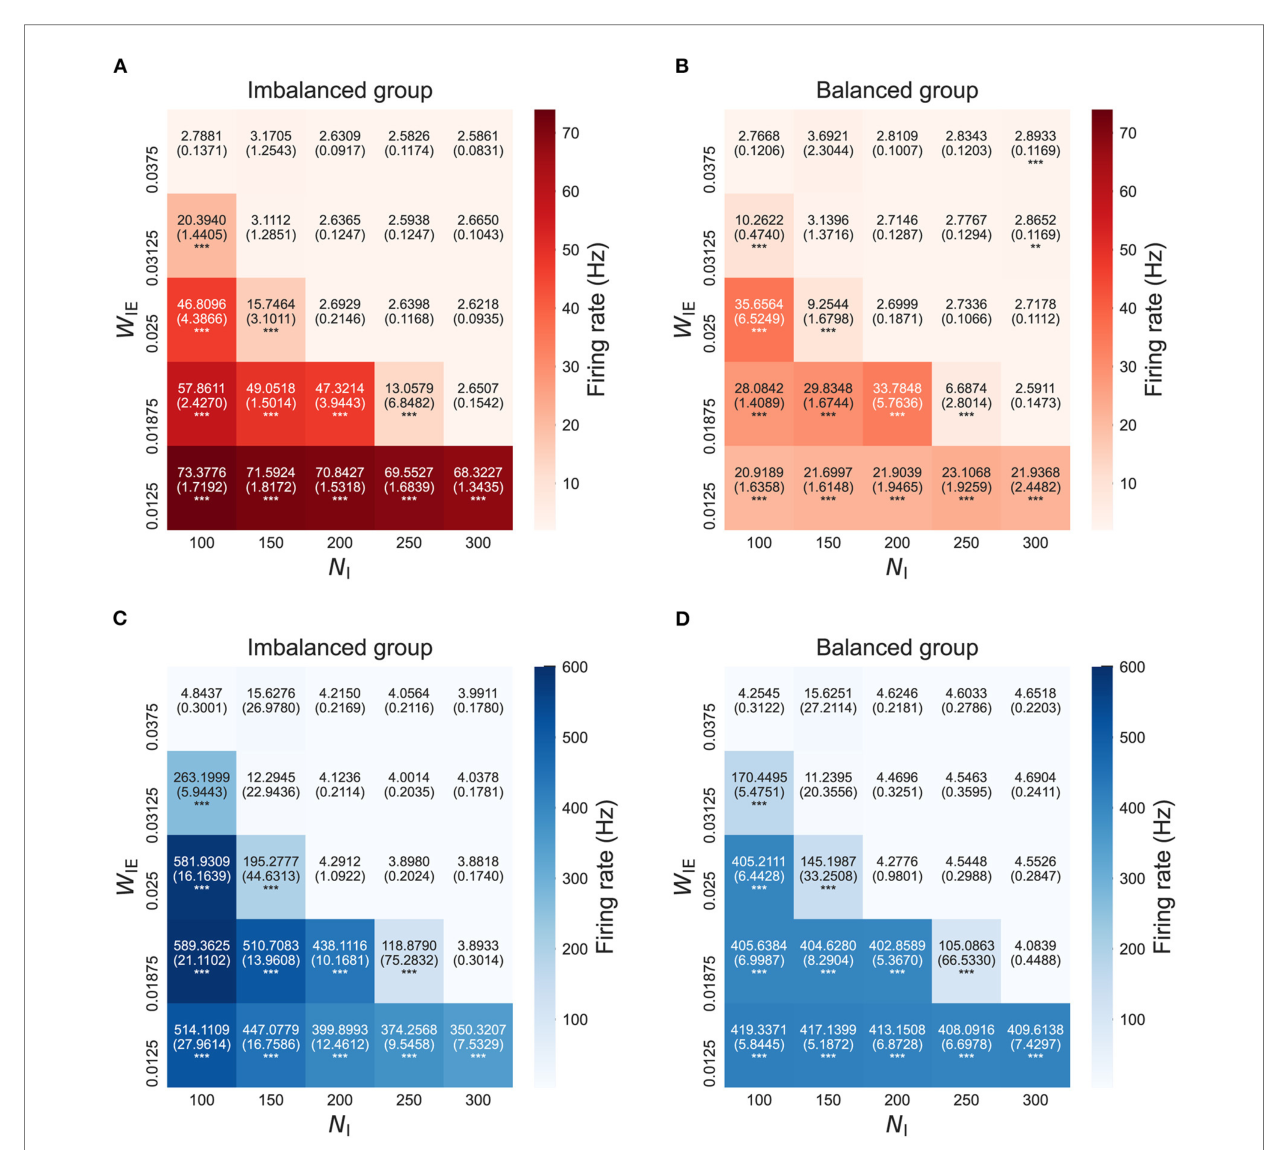
图 4 · 两群模型:复杂度在两个群中都随 E/I 比升高而下降
原文图注:Complexity of neural activity after self-organization in the model with two neuron groups. (A) Complexity of neural activity in the imbalanced neuron group. (B) Complexity of neural activity in the balanced neuron group. The x- and y-axes show the number of inhibitory neurons (NI) and weights from inhibitory neurons to excitatory neurons (WIE) in the imbalanced neuron group, respectively. Color indicates the summation of the sample entropy for all 100 scale factors. ……
该图通过颜色热图展示各参数格点下 100 个尺度因子的样本熵之和(多尺度熵复杂度)。结果显示左下角高 E/I 区域在 (A) 和 (B) 中均呈现明显的低复杂度,且与基线相比差异达统计显著水平。平衡群 (B) 在未受直接参数操控的情况下复杂度同样降低,证实低复杂度模式可通过群间连接向外传播,对应“主要结果”第 3 条。
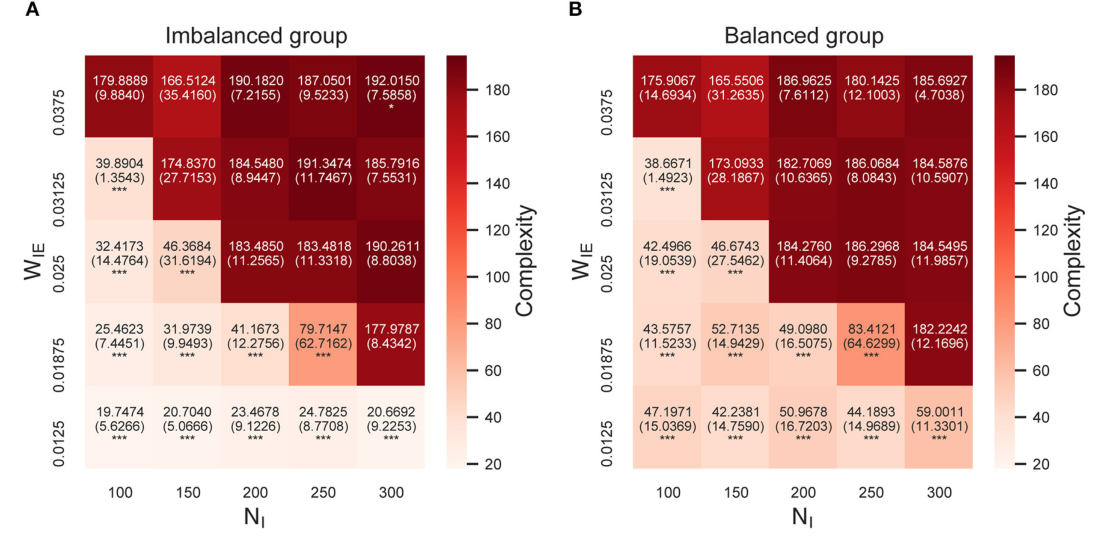
图 5 · 十群模型:局部高 E/I 诱导全网过度连接
原文图注:The average weights of intra- and interconnections after self-organization. Each numbered circle indicates a neuron group with its index. The color of the node indicates the average weights of intraconnections. Purple arrows indicate the average weights of interconnections from one neuron group to another. Neuron group 1 has an imbalanced E/I ratio. (A) High-E/I. (B) Base-E/I. (C) Low-E/I. ……
该图以环状拓扑展示十群模型的连接结构:节点颜色表示群内平均突触权重,紫色箭头粗细与色调表示群间连接权重;对比高 E/I (A)、基线 (B) 与低 E/I (C) 条件可见,在 H-E/I 条件下整个环状网络的节点颜色与连接箭头普遍增强,且以 1 号失衡群周边的长程连接增强最为突出。该图证实了局灶性 E/I 失衡能够在同质环状网络中诱导全局过度连接,对应“主要结果”第 4 条前半部分。
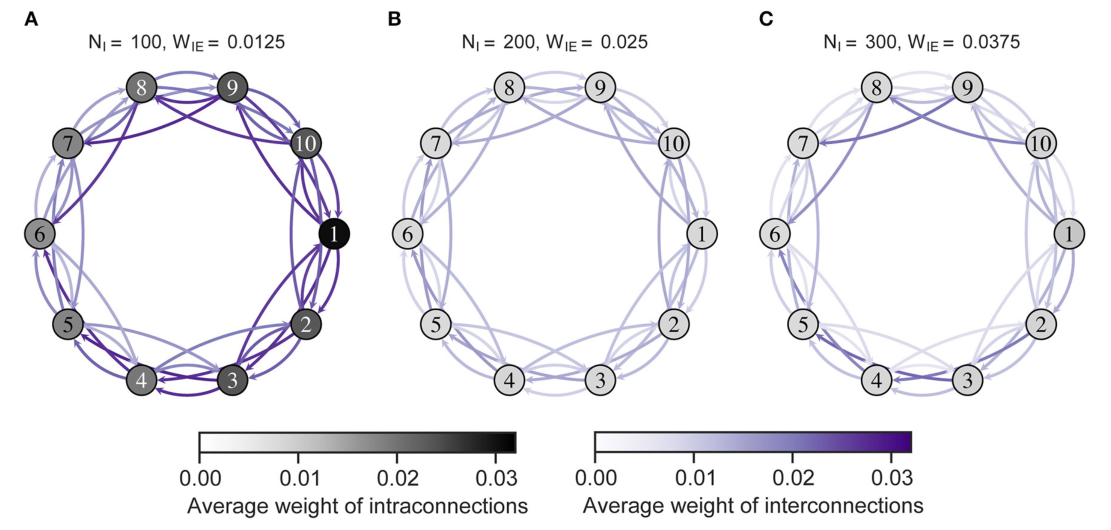
图 6 · 十群模型:低复杂度的群正是连接被增强的群
原文图注:Complexity of neural activity in the neuron group after self-organization. Each numbered circle indicates a neuron group with its index. The color of the node indicates the complexity of neural activity in the neuron group that is the summation of the sample entropy for all 100 scale factors. Purple arrows indicate the average weights of interconnections from one neuron group to another. Neuron group 1 has an imbalanced E/I ratio. ……
该图拓扑结构同图 5,节点颜色代表各群神经活动的 MSE 复杂度。对比 (A) 与图 5(A) 显示:H-E/I 条件下全网各节点的复杂度普遍降低,且复杂度最低的节点与图 5 中突触连接增强最明显、特别是接收较多传入投射的神经元群高度一致。该图在网络拓扑上直观展示了“过度连接”与“低复杂度”的空间对应关系,对应“主要结果”第 4 条后半部分。
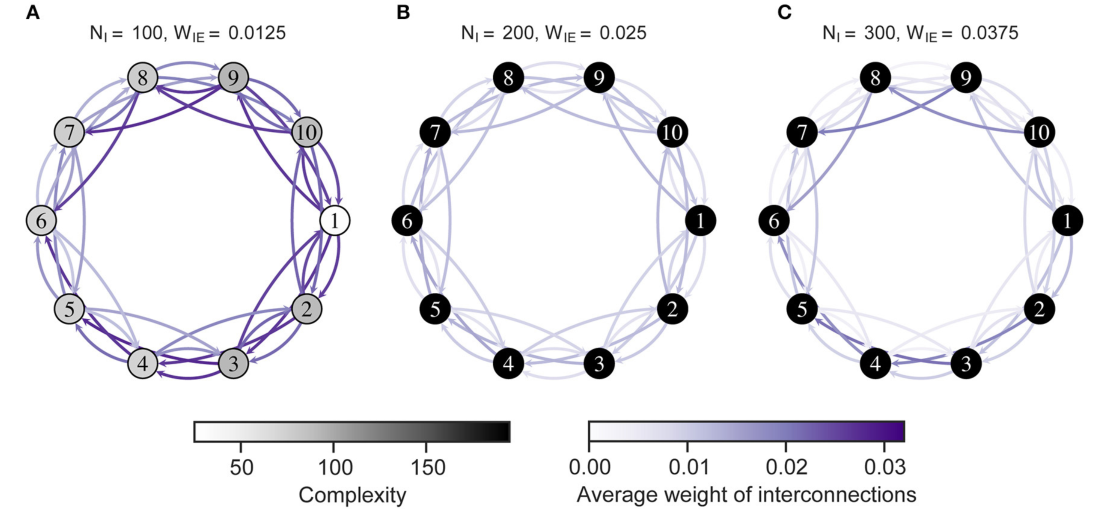
图 7 · 信息传递测试之一:外部输入注入失衡群 1
原文图注:Mutual information and transfer entropy in the neuron group after self-organization. Each numbered circle indicates a neuron group with its index. The color of the node indicates the mutual information between neural activity of the neuron group and the external input. Red arrows indicate the transfer entropy from neural activity of one neuron group receiving external input to another. Neuron group 1 has an imbalanced E/I ratio. The external input was fed into neuron group 1. ……
该图展示了时变外部输入施加于失衡群 1 时网络的信息传递指标:节点颜色表示各群活动与外部输入的互信息(MI),红色箭头表示从输入接收群(群 1)流向其他群的传递熵(TE)。在 H-E/I 条件 (A) 下,全网节点的 MI 整体降低且 TE 显著减弱,表明尽管输入直接施加于失衡群,其向全网的信息传递效率却受到明显抑制,对应“主要结果”第 5 条前半部分。
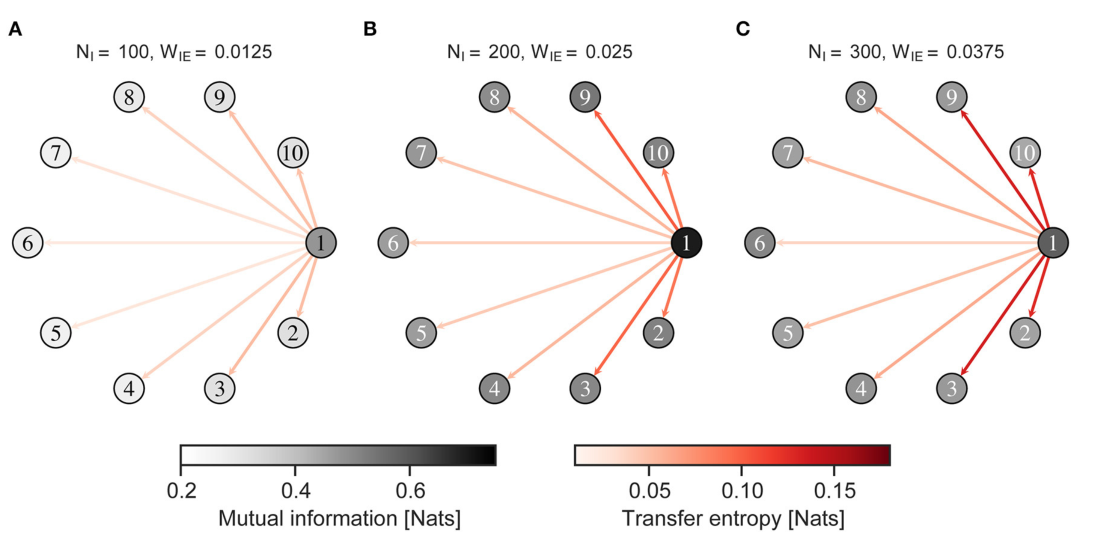
图 8 · 信息传递测试之二:外部输入注入平衡群 3
原文图注:Mutual information and transfer entropy in the neuron group after self-organization. Each numbered circle indicates a neuron group with its index. The color of the node indicates the mutual information between neural activity of the neuron group and the external input. Red arrows indicate the transfer entropy from neural activity of one neuron group receiving external input to another. Neuron group 1 has an imbalanced E/I ratio. The external input was fed into neuron group 3. ……
该图与图 7 结构一致,外部输入改设于未受扰动的平衡群 3。该对照实验排除了信息传递下降仅由输入靶点位于病理群所致的可能。结果显示在 H-E/I 条件下,输入置于正常群时全网 MI 与 TE 依然显著下降;在 L-E/I 条件下失衡群的 MI 略低于基线(Tukey 检验 p = 0.017)。该结果证实高 E/I 失衡引起的信息传递损伤具有全局性,对应“主要结果”第 5 条后半部分。
讨论
作者将模拟现象归纳为四阶段动力学机制: 1. 局部抑制减弱提高神经元兴奋性,使其对输入刺激更敏感; 2. 高频放电通过 STDP 强化局部及群间兴奋性突触连接; 3. 突触过度连接提高神经元集群的同步放电水平,从而降低时间序列的非线性动力学复杂度; 4. 失衡群的高频放电经群间连接传入未受损区域,驱动全网连接同步增强与复杂度下降,而 STDP 在同步活动中进一步固化过度连接,形成自组织放大循环。 该机制对应了临床神经精神疾病的实证发现:ASD 中报告的局部神经元密度增高、皮层过度连接,以及在 EEG、MEG 与 fNIRS 研究中观察到的神经活动低复杂度,均与模型演化结果一致。模型进一步预测,特定脑区的低复杂度可能是由于过度增强的传入连接汇聚了过多突触输入所致。此外,全网信息传递效率的下降也为 ASD 患者常见的感觉过敏或迟钝,以及精神分裂症的感觉门控缺陷提供了潜在的环路解释——表明感觉加工异常的根源可能并不局限于感觉皮层本身。
作者指出了该模型的数项简化与局限: 首先,模型中抑制性突触权重固定,未引入抑制性 STDP 与细胞内在稳态可塑性机制,而生理学调控可能会在一定程度上代偿或缓冲 E/I 失衡效应; 其次,神经元亚型仅包含规则放电兴奋性神经元与快速放电抑制性神经元,未考虑突发放电型神经元及生长抑素(SST)阳性中间神经元等多样性细胞成分; 第三,网络拓扑采用同质的对称环状结构,而生物脑网络具备异质性连接与小世界拓扑特性,真实大脑中兴奋/抑制失调表现出的活动亢进与减退并存现象(以及 ASD 中局部过度连接与长程欠连接并存)可能受复杂拓扑约束; 最后,模型输入为无结构的泊松序列,未与感知输入、环境交互或具体的认知行为任务相结合。
一句话总结
该研究通过计算建模将局部 E/I 失衡、突触可塑性(STDP)、过度连接与神经活动复杂度降低构建为闭环的自组织因果链,并经去可塑性对照证实过度连接是 STDP 介导的动力学演化产物;为理解神经精神疾病中局部环路异常向全局网络病理状态的扩散提供了定性的机制模型。