这篇文章用猴下颞叶(inferior temporal,IT)皮层单神经元记录加人类心理物理实验,回答一个老问题:对称性为什么在知觉中如此特殊。作者的答案出人意料地"反专门化"——对称物体在单神经元层面没有任何特殊的计算:整物反应始终等于各部件反应之和,唯一的特殊之处是对称物体在表征空间里彼此更"有区分度"(distinctive),而这恰恰是线性部件加和与位置不变调谐这两个"通用计算"的几何副产品。
研究背景
对称性既是物体形状之间的关系,也是视觉知觉中一个突出的现象:人能够迅速发现对称图形,对称结构还会影响图形与背景的组织以及物体识别。既往成像与脑刺激研究将高级视觉皮层同对称加工联系起来,但区域参与并没有说明其内部需要何种计算。尤其是,对称并不属于任何一个孤立部件,而取决于两侧之间的对应关系。如果这种整体属性必须通过特殊的部件交互产生,那么对称物体的神经反应应当出现超出各部件贡献之和的成分;这是一项比观察“对称图形激活更强”更直接的机制预测。
另一方面,下颞神经元的已有研究表明,一些整物反应能够用部件贡献的加和近似描述,同一部件在不同位置还可能保留相似的偏好。这为对称的特殊性提出了另一条解释:当两侧采用相同部件时,群体反应重复强化同一方向;当两侧采用不同部件时,反应则混合不同方向。即使单个神经元没有专门的对称增益,两类物体也可能在群体空间中形成不同的距离结构,使对称物体彼此更易区分。这里的缺口是,通用部件计算能否同时解释细胞反应与知觉差异,还是必须引入对称特有的非线性机制。仅有行为优势或平均放电比较,都不足以区分这两个解释。
本文用同一组部件构成对称与非对称形状,在猴下颞皮层检验部件加和模型及其残差,并在人类视觉搜索和对称判断中测量对应的行为差异。组合设计使两侧部件的贡献可以被系统估计,群体距离则把细胞层面的计算与物体的可区分程度联系起来。作者还提出可区分的行为预测:若区分度影响对称判断,对称与非对称物体的反应时应随区分度呈不同方向变化,而一般显著性增强更容易预测两类都加快。这样的证据可支持通用计算足以产生部分对称优势,但不能证明视觉系统不存在任何专门的对称机制。猴记录时未执行对称判断,神经与行为证据来自不同物种;区分度也未覆盖全部判断差异,对称轴方向的经典优势仍未得到充分解释,因此因果联系和适用范围需要保留。
研究思路
设计围绕一个 7×7 的物体矩阵展开:选 7 个任意形状作部件,两两接在一段"茎"(stem)两侧,得到 49 个物体,其中对角线上的 7 个是对称物体,其余 42 个是非对称物体。作者刻意不用孤立的部件做刺激(孤立部件带有额外特征,反应会定性改变),而是用全部组合回归出每个部件在左侧和右侧各自的"激活量"。核心检验是部件加和模型(part-sum model):把每个神经元的整物反应建模为 15 个回归量(7 部件 × 2 位置 + 常数项)的线性和,然后专门问两个问题——对称物体的拟合残差是否更大、对称物体之间在神经表征空间中是否更远。
神经记录与行为实验共享同一套形状,形成跨物种对应:猴 IT 单神经元给出表征侧的证据,人类的视觉搜索(以搜索时间的倒数作为两物体间的行为不相似度)和对称判断任务(反应时)给出知觉侧的证据。最后用一个极简的论证完成闭环:若"区分度"驱动对称知觉,那么判断反应时对区分度的回归在两类物体上应当符号相反(对称物体越有区分度判断越快,非对称物体越有区分度判断越慢)——这一预测与"自下而上显著性"(salience,两类物体都应变快)定性不同,可以干净地区分两种假说。
方法
电生理部分:两只成年雄猴(Ka、Sa),左侧前部 IT 皮层,24 通道多触点探针(Plexon U-Probe)记录,离线 spike sorting 后得到 180 个视觉反应神经元(Ka 93 个、Sa 87 个)。猴子做注视任务,每试次呈现 7 张图,每张 200 ms、间隔 200 ms;刺激共 98 个(49 个水平朝向 + 旋转 90° 的 49 个垂直朝向),长边 4°,白形黑底,每刺激至少 8 次重复。结果分析以水平朝向为主,垂直朝向结果见补充材料(定性一致)。
人类行为共三个实验:实验 1 为视觉搜索(8 名被试),4×4 搜索阵列中一个"异类"(oddball),按键报告其在左或右,共测全部物体对的搜索时间;实验 2 为对称判断(18 名被试),同一批 49 个物体闪烁呈现 200 ms 后加噪声掩蔽,按 S/N 键报告"对称/非对称",为平衡两类试次数量,对称物体呈现 24 次、非对称 4 次,只用每物体前 4 次试次以排除熟悉度效应;实验 3 扩展到 64 个物体(32 对称 + 32 非对称,约束每个对称物体与某个非对称物体共享一个部件,防止靠记部件判断,其中还混入圆、方等无可辨识部件的整体形状),先做视觉搜索(1,024 个对称-非对称物体对)再做对称判断。对照模型包括像素模型(模拟视网膜,7,752 维)和 V1 模型(8 朝向 × 6 空间频率的 Gabor 滤波器组加除法归一化,372,096 维);另用 50 个"人工神经元"(两侧部件选择性相同、数值随机)做群体仿真。
主要结果
- 对称物体没有更强的整体反应,也没有偏离部件加和:示例神经元对对称/非对称物体的平均放电率为 16.0 vs 15.3 Hz(p=.65),全体神经元平均 15.6 vs 15.5 Hz(p=.49)。部件加和模型平均拟合 r=.68(图 2a);以折半信度归一化后,模型相关达 M=1.07(SD=0.25,87 个信度显著的神经元,图 2b),说明模型几乎解释了放电的全部系统性变异。留一交叉验证中对称/非对称物体的残差完全一样(均 .14,p=.33);对称物体的模型-数据相关 r=.86 vs 非对称 r=.87(图 2e),残差 .093 vs .096(p=.64)——作者预期的非线性偏离完全不存在(图 1、图 2)。
- 部件偏好在物体两侧一致:把神经元按某一侧的部件偏好排序后,另一侧部件的反应也系统性地单调变化(平均斜率 −0.043,p<.00005,n=128;图 2c、2d)。这是"对称物体更distinctive"推导成立的关键前提——一种位置不变的形状调谐。
- 对称物体在 IT 表征中彼此更远:对称物体对(n=21)与同样"差两个部件"的非对称物体对(n=420)相比,归一化神经不相似度 .159 vs .145(p=.011,图 2f;原始放电差 4.7 vs 4.3 spikes/s,p=.012;两只猴各自独立显著)。而像素模型(0.86 vs 0.86)和 V1 模型(27.5 vs 27.5)中两类物体对距离毫无差别——这种区分度是高级表征的涌现属性,不是图像或早期视觉加工的平凡结果。
- 行为上同样成立,且神经-行为对接:人类视觉搜索中对称物体对的行为不相似度为 1.26 vs 1.07 s⁻¹(p=.00017,图 3b);以各神经元加权的神经不相似度预测行为不相似度达 r=.74(p<.00005,图 3c)。50 个人工神经元的仿真重现了这一分离(图 3e)——机制层面"混颜料"几何图景得到直接验证。
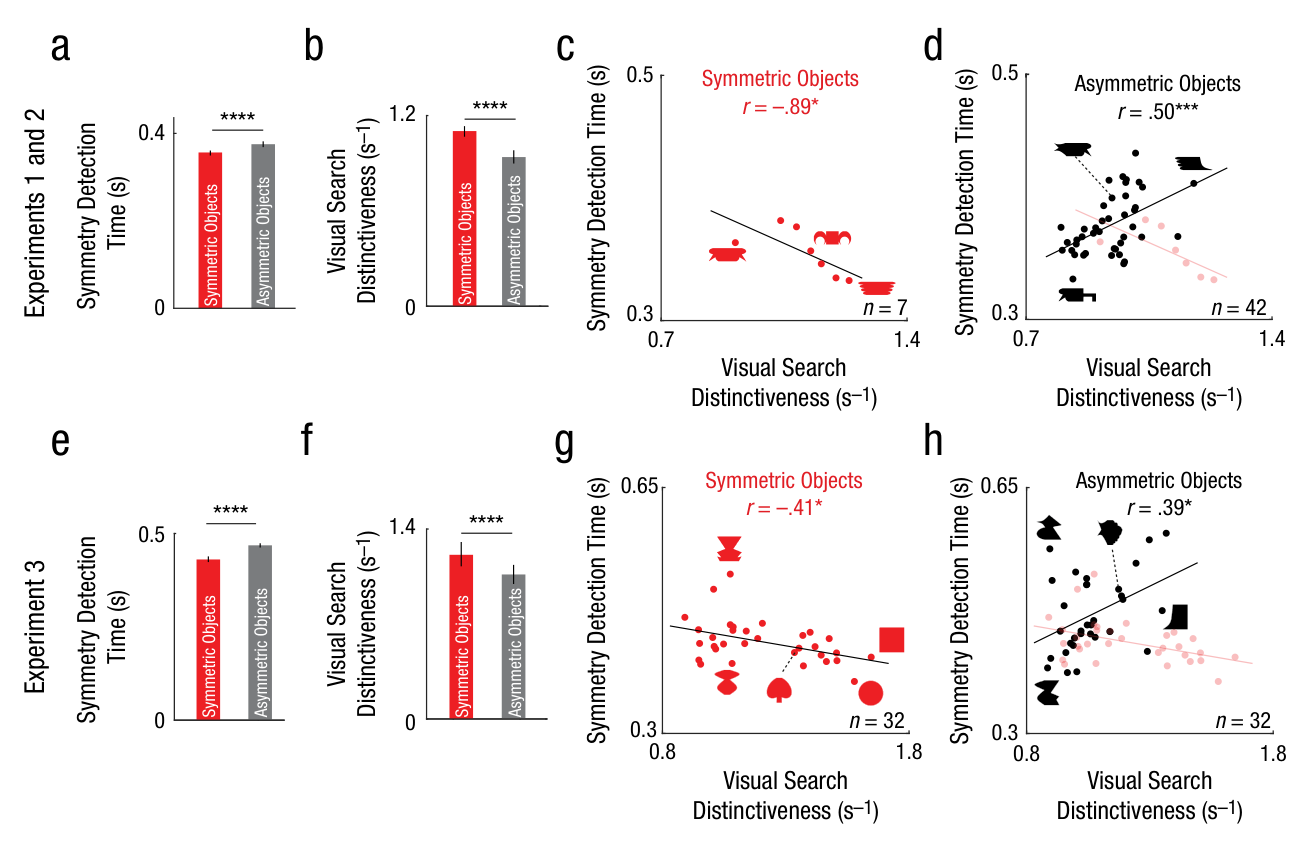
- 区分度预测对称知觉,且符号随物体类型反转:实验 2 中对称判断快于非对称判断(354 vs 377 ms,p=.00002,图 5a),对称物体的区分度更高(1.11 vs 0.94 s⁻¹,图 5b);关键是反应时与区分度的相关在对称物体上为负(r=−.89,p=.012)、在非对称物体上为正(r=.50,p<.0005)(图 5c、5d),两者均接近数据自身的信度上限(rc=.91 与 .53)。实验 3 用 64 个物体(含圆、方等整体形状)复现全部模式:431 vs 470 ms(图 5e)、区分度 1.21 vs 1.06 s⁻¹(图 5f)、相关 r=−.41 与 .39(图 5g、5h)。
图注解读
图 1 · 七部件组合矩阵与示例神经元的反应
原文图注:Fig. 1. Stimuli (a) and example responses in monkey inferior temporal (IT) cortex (b). Each neuron was tested with horizontally and vertically oriented versions of these shapes, but results are shown here for horizontal objects for ease of exposition (for vertical objects, see Section 1 in the Supplemental Material). Each object was created by attaching two parts on either side of a stem. Objects along a row or column share the same part on the right or left side, respectively. Symmetric objects are highlighted here in red only for the purposes of illustration; asymmetric objects are shown in black. All objects were presented in white against a black background. The plot in (b) shows responses of an example IT neuron (with neuron ID at the bottom left) to the stimuli in (a). Stimuli are sorted in order of increasing response along rows and columns. ……
图 1a 是全部 49 个刺激的矩阵:同一行共享右侧部件、同一列共享左侧部件,对角线上的 7 个为对称物体(标红只为示意,实验中所有刺激都是白色,红黑只是排版强调)。这个矩阵设计是全文的骨架——部件可以在左右两侧自由组合,才能用回归反解出每个部件的"激活量"。图 1b 给出一个示例 IT 神经元对每个刺激的栅格图(raster)与 20 ms 直方图,按反应强度排序;该神经元在偏好部件位于任一端时反应都最强,且对对称(16.0 Hz)与非对称(15.3 Hz)物体的平均放电几乎一样——为"对称物体没有更强反应"这一零结果提供了直观样本。
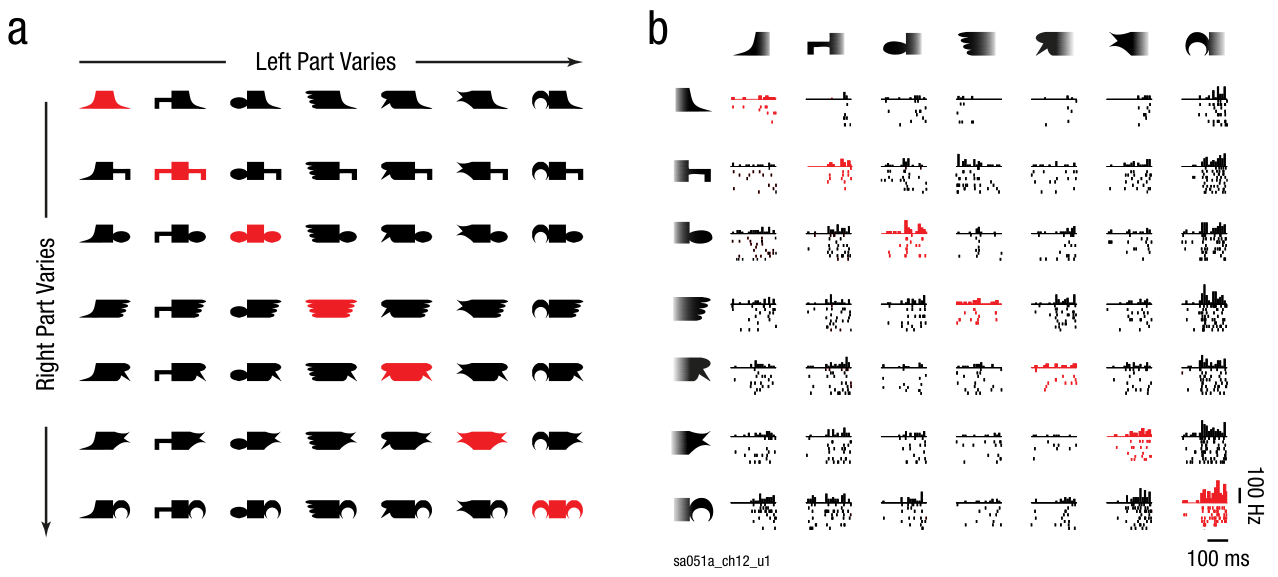
图 2 · 部件加和成立,对称物体因此更"distinctive"
原文图注:Fig. 2. Part summation in symmetric and asymmetric objects in monkey inferior temporal (IT) neurons. The histogram in (a) shows results across neurons for the correlation between the observed response and the response predicted by the part-sum model. The response of each neuron was modeled as a sum of part activations on each side. To estimate the degree to which the model captures the systematic variation in firing for each neuron (b), we fitted the part-sum model to odd-numbered trials, calculated its predictions on even-numbered trials, and divided the resulting model correlation by the observed correlation between odd and even trials. The plot depicts the normalized model correlation calculated in this manner for all neurons with significant split-half correlations (n = 87). The arr……
这是全文的核心证据图,六个面板层层递进。读法:纵轴都是细胞数(a、b 为直方图),箭头标均值——(a) 部件加和模型预测反应与实测反应的相关,均值 r=.68;(b) 用折半信度归一化后的模型相关,均值 1.07,超过 1 说明模型把系统性变异"解释到头了"(个别 >1 来自放电本身噪声大的神经元)。(c)(d) 是部件选择性的位置一致性检验:按左侧偏好排序的右侧反应仍单调下降(斜率 −0.043),证明同一部件在物体两侧唤起相似反应。(e) 实测整物反应 vs 部件加和预测的散点,对称物体 r=.86、非对称 r=.87,两点群紧贴对角线——没有对称特异性偏离。(f) 神经不相似度条图,对称物体对(0.159)显著高于非对称物体对(0.145,*p<.05)。此图直接支撑上文前四条结果。
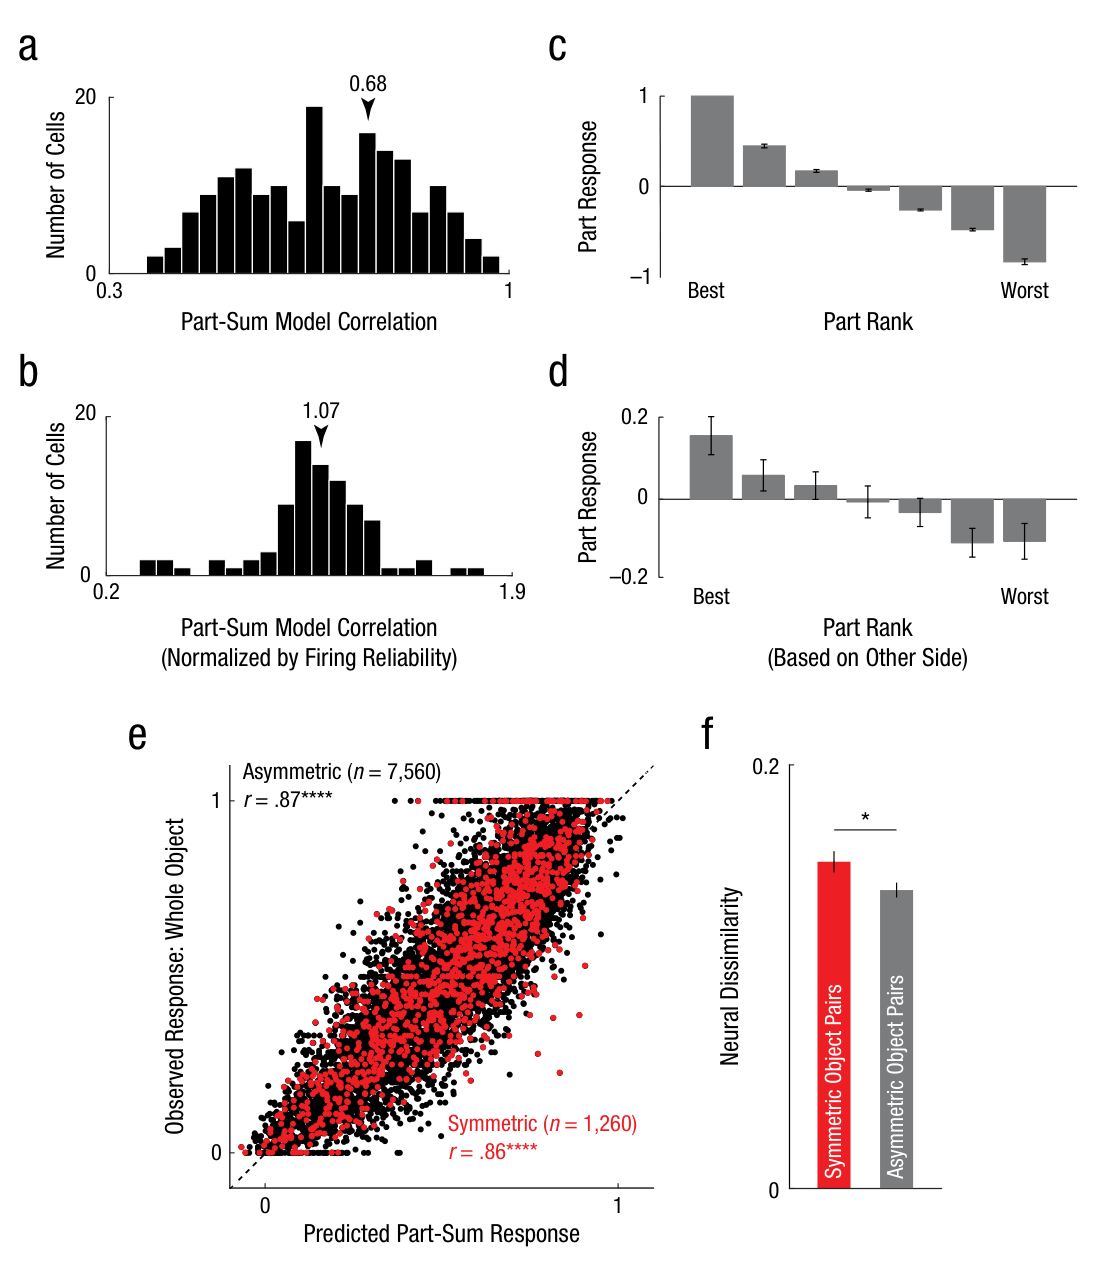
图 3 · "混颜料"机制:加和如何制造区分度
原文图注:Fig. 3. Distinctiveness of symmetric objects as a result of part summation. The example search array from Experiment 1 (a) contains a symmetric oddball and an asymmetric oddball embedded among asymmetric distractors. The symmetric object is easier to find than the asymmetric object, even though both objects differ in two parts from the distractors. The bar graph (b) shows mean behavioral dissimilarity for symmetric object pairs and equivalent asymmetric object pairs measured using visual search in humans (Experiment 1). The asterisks indicate a significant difference between pair types (***p < .0005). Error bars represent ±1 SEM calculated on object pairs (n = 21 for symmetric objects; n = 420 for asymmetric objects). The scatterplot (c; with best-fitting regression line) shows behavior……
五个面板把"机制—行为—仿真"串成一条线。(a) 示例搜索阵列:对称异类比非对称异类好找,尽管两者都与干扰物差两个部件——搜索时间的倒数被定义为行为不相似度。(b) 条图显示对称物体对的行为不相似度(1.26 s⁻¹)显著高于匹配的非对称物体对(1.07 s⁻¹,p<.0005)。(c) 行为不相似度 vs 猴 IT 加权神经不相似度的散点(r=.74,*p<.0005),实现跨物种对接。(d) 是几何核心:部件 A、B、C 的反应向量为 a、b、c,对称物体 AA/BB/CC 的反应是 2a/2b/2c,非对称物体 AB/BC/AC 的反应 a+b 等恰落在两个对称向量连线的中点——像混颜料一样互相靠近,而对称物体保持原部件间的距离。(e) 50 个双侧调谐一致的人工神经元仿真出两组明确分离的距离分布。支撑"区分度是加和的几何后果"这条结论。
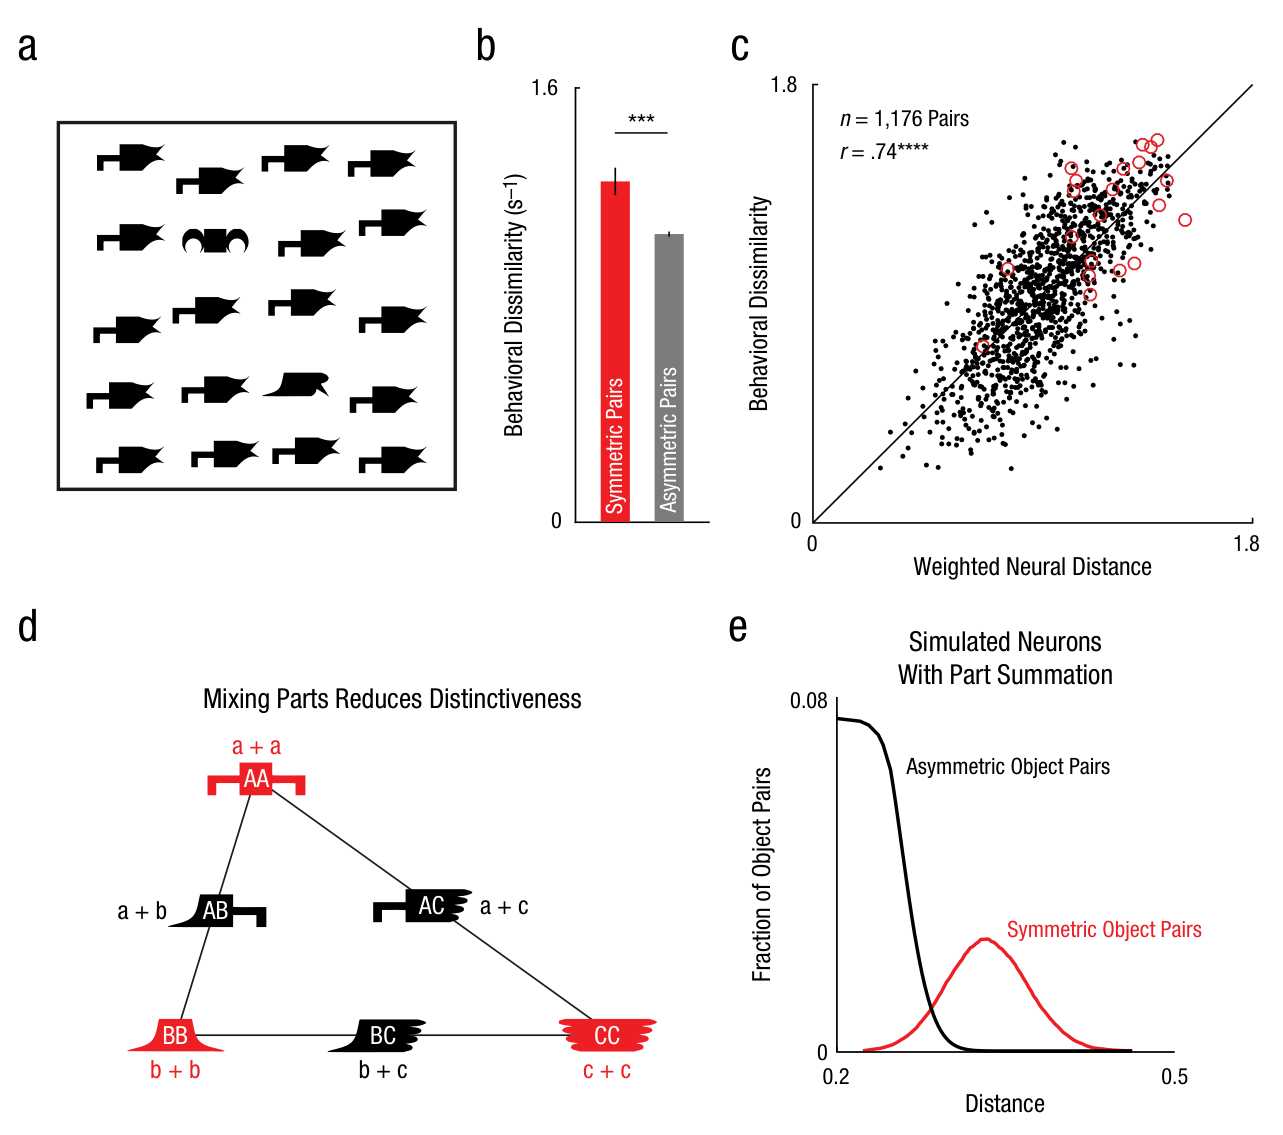
图 4 · 区分度驱动对称知觉的假说与可证伪预测
原文图注:Fig. 4. Hypothetical relation between distinctiveness and symmetry perception. Part summation causes symmetric objects to become more distinctive in the underlying neural representation (a) compared with asymmetric objects. If this property drives symmetry perception, symmetry judgments should be determined at least in part by a decision boundary that separates symmetric and asymmetric objects on the basis of their distinctiveness. If distinctiveness is the underlying quantity driving symmetry detection, then objects close to the decision boundary should be the hardest to judge during symmetry detection (b), whereas objects far away from the boundary should be easy. Specifically, this hypothesis predicts that symmetry detection time should decrease as symmetric objects become more dis……
这张示意图本身没有数据,作用是把假说变成可证伪的定量预测。读法:横轴是"区分度",(a) 中对称物体分布在这条一维轴的更远端;(b) 中在轴上放一个决策边界(decision boundary),离边界越近的物体判断越慢、越远越快。由此推出全文最关键的不对称预测:对称物体的对称判断时间随区分度增大而缩短,非对称物体则随区分度增大而变长——两种相关符号相反。作者特别指出这定性地区别于"显著性"假说(显著性只会让两类物体都变快)。这个预测由图 5 检验。
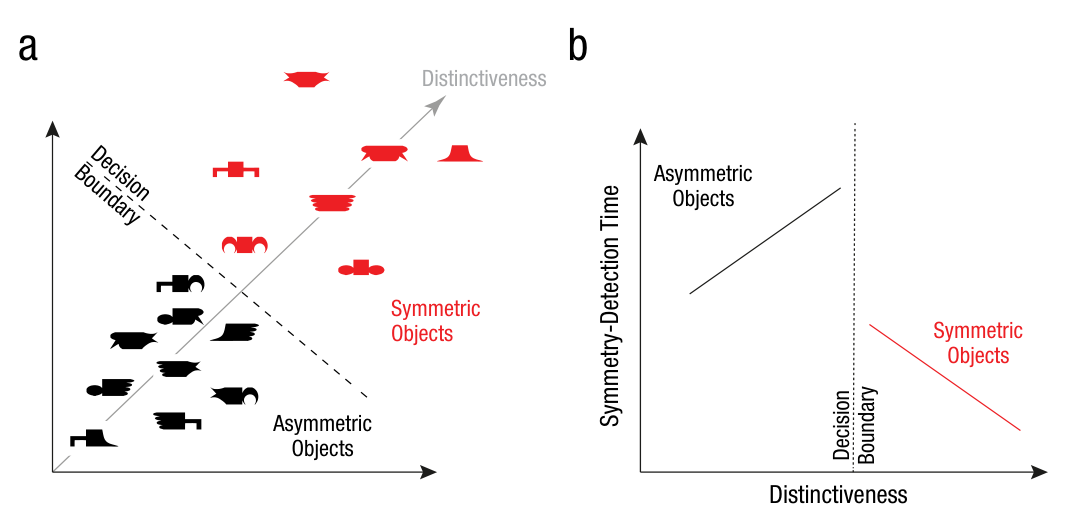
图 5 · 区分度预测对称判断:符号反转的相关
原文图注:Fig. 5. Distinctiveness as a predictor of symmetry perception in Experiments 1 through 3. Average response time during the symmetry-judgment task (a) is shown as a function of object type in Experiment 2. Average distinctiveness in visual search (b) is shown as a function of object type in Experiment 1. The scatterplots (with best-fitting regression lines) show the relation between symmetry detection time and visual search distinctiveness, separately for (c) symmetric objects and (d) asymmetric objects in Experiment 2. In (d), results for symmetric objects are overlaid faintly for comparison. Average response time during the symmetry-judgment task (e) and average distinctiveness in visual search (f) are shown as a function of object type in Experiment 3. The scatterplots (with best-fitti……
八个面板是实验 2(a-d,49 个部件组合物体)与实验 3(e-h,64 个物体含圆、方)的平行结果。读法:(a)(e) 对称判断的反应时条图,对称显著快于非对称(354 vs 377 ms;431 vs 470 ms,****p<.00005);(b)(f) 视觉搜索测得的区分度条图,对称物体更高(1.11 vs 0.94;1.21 vs 1.06 s⁻¹)。核心在四个散点图:对称判断时间对区分度回归,对称物体为负相关(c:r=−.89,g:r=−.41),非对称物体为正相关(d:r=.50,h:r=.39),且两批相关都逼近各自的折半信度(rc=.91/.53 与 .48/.59),说明区分度几乎"榨干"了数据中的可预测变异。这正是图 4 预测的符号反转模式,支撑"区分度解释对称知觉"这条结论;作者也坦承仍有少数对称与非对称物体在区分度和反应时上重合,提示还存在未覆盖的机制。
讨论
作者把结果放进一个"双机制"框架:对称知觉的第一种机制是自动的、连续分级的,由区分度驱动,产生极快的整体判断;第二种机制涉及对图像的局部细察与模式匹配,只在整体图形不够 distinctive 时才启动。区分度解释了大部分但非全部变异——一些对称与非对称物体在区分度上重合、反应时相同——所以两个机制都存在,但本文为第二个机制的贡献划定了上限。这个框架还顺带解释了既有文献:对称判断随轮廓复杂度变慢(部件越杂、混颜料效应越强);只有高级视觉区才对对称有差分反应(部件加和需要大而位置不变的接受野,IT 及其人类同源物外侧枕复合体具备);外纹状皮层 BOLD 增强可理解为对称物体更 distinctive 导致适应更低;ERP 上的对称效应出现在约 400 ms 的晚期,与"distinctive 物体吸引自下而上注意"一致。
作者也正面回应了三个潜在质疑:其一,若区分度驱动对称知觉,任何 distinctive 的物体都可能被误判为对称——实验中确实有些物体判断"非对称"异常慢;其二,区分度是否只是自下而上显著性?不是——显著性预测两类物体都变快,而改变对比度的附加实验显示两类物体一致变慢,二者定性不同;其三,新异物体的神经反应更大是否混淆?作者认为只要区分度来自与共享部件的其他物体的比较,就与"以范本为参照"(norm-based)的编码观兼容。局限方面,作者承认垂直轴对称检测最快这一经典现象在他们的框架里只有较弱的对应(水平物体的部件偏好一致性略高但不稳健),且猴实验没有行为数据,需要后续研究。
一句话总结
该研究通过严密的实验为对称知觉提供了计算层面的精简解释:对称性在知觉中的特殊地位并不必然依赖专门的对称检测神经元,它可由线性部件加和与位置不变调谐在表征空间中自然形成。不过需要注意,区分度仅解释了大部分而非全部变异,更慢速的局部匹配机制仍待进一步明确。