这篇论文用猴 V1/V2 的"边界所有权"(border ownership)神经元直接检验一个经典问题:视觉皮层早期区域的图形-背景组织是否受物体"意义"(熟悉形状)的影响。作者的答案分两层——在群体平均上,人脸剪影与匹配的"无意义"剪影产生的边界所有权信号完全相当(无"脸优势");但在部分单个神经元中,两类刺激引出强烈且跨形状一致的分界差信号,而且分化出现得惊人地早(约 70 ms),比公认的形状分类延迟快得多,对"自上而下反馈"假说形成了硬约束。
研究背景
边界所有权神经元是皮层"基于物体的编码"最早的表现形式之一:这类 V2 神经元对感受野中的一条轮廓边响应,当边所属物体位于偏好侧时放电更高,且偏好侧通常固定不随刺激变化。已有工作表明这一信号在无注意条件下照常出现(属于前注意加工),为选择性注意提供结构(Qiu et al. 2007);其接受野之外的加工可以来自远距离的轮廓配置,但也可被立体视差异、局部遮挡特征(如 T 形结)等深度线索调制。由于该信号要求整合远超经典感受野的图像上下文,皮层内的水平连结因传导慢而无法胜任,主流解释是更高层"分组细胞"(grouping cells)的反馈(Craft et al. 2007)。
问题在于:这种早期组织是否也会被"意义"塑形?人类知觉研究中早有证据——当边界归属含糊时,属于熟悉形状的那一侧更容易被感知为图形(Peterson et al. 1991;Nelson & Palmer 2007),这常被解读为高层物体识别与低层图形-背景组织的交互乃至迭代收敛(Vecera & O'Reilly 1998)。但此前的电生理研究几乎只用简单几何图形(多为正方形)反复呈现,无法排除"形状记忆"在起作用。要检验意义的作用,就必须用一组在格式塔准则(紧凑、闭合、包围性)上等价、只在意义上不同的形状作对照——这正是本文的切入点:用人脸与猴脸的侧脸剪影(Face),以及把剪影"前脸"做镜像翻转得到的形状完全陌生但轮廓特征分布相同的 Nonsense 剪影,外加把前脸换成直边的 Flat 剪影做局部/整体分离。
研究思路
设计要点有三。第一,用"先天熟悉"的刺激而非训练制造的熟悉:作者刻意不给猴子做识别训练(训练本身可能条件化早期视觉皮层),而选用行为上对灵长类天生重要的侧脸剪影,并用两个行为测试确认实验猴确实把 Face 剪影按"脸"处理(未受训练的猴会被 Face 吸引提前破坏注视;配对比较任务中 Face 鉴别又快又准)。第二,用严格的刺激构造控制低层特征:Nonsense 形状由 Face 的前段轮廓沿双切点连线做镜像反射生成,反射保持轮廓光滑,使两类形状在轮廓局部特征、全局配置、尺寸与复杂度上一一对映;再用 Flat(直边近段)分离"感受野内的局部轮廓形状"与"决定物体位置的远段轮廓"。第三,时相分析预设了可证伪预期:若意义来自高层识别区的自上而下影响,按后 IT 皮层形状选择反应约 130 ms 的延迟推断,"脸优势"应只出现在反应晚期(110-300 ms),而不该在信号起点就出现。
测量逻辑上,边界所有权信号定义为"同一条边、物体在偏好侧 vs 非偏好侧"的反应差;用方差成分模型把轮廓形状(Face-id)设为随机效应,使结论能推广到 Face/Nonsense/Flat 三个类别而非个别测试形状。
方法
两只雄性恒河猴(FR、BE),V1(枕叶盖部 operculum)、V2(月状沟,另含后月状回唇)及少量 V3。每细胞先做经典的"方块边界所有权测试"(并置两个尺寸 3° 与 8° 的正方形边),再用剪影测试:在轮廓前段选一个测试点(一半为直段、一半为弯段)置于感受野中心,剪影绕该点旋转以对齐该细胞偏好的朝向,然后用镜像翻转产生物体在偏好侧/非偏好侧两种状态;每族刺激含 Face/Nonsense/Flat × 2 种边界所有权 × 2 种对比极性(V2 和 V1 上层约一半朝向选择性细胞对对比极性敏感),人面剪影约 8°、猴脸剪影约 5°,明暗灰度 60/46 cd/m²。一个测试块含 8 个 Face/Nonsense 族加 4 个 Flat 族共 80 个刺激随机呈现、重复 4 次。注视任务窗口 1°,每刺激 300 ms。共获得 143 个细胞的完整数据(FR 84、BE 59;V1 48、V2 92、V3 3),其中 67 个在标准方块测试中呈边界所有权选择性。
分析上强调三点:脉冲计数(spike counts)取刺激后 50–300 ms 窗口并做平方根(Anscombe)变换;对 Face/Nonsense 数据拟合含边界所有权 B、对比极性 C、Facehood F 及各阶交互的一般线性模型,并用方差成分模型把 Face-id 当随机协变量,从而检验"类别"层面而非具体形状的效应;群体时间过程以偏好-非偏好侧 PSTH 之差表示(1 ms 分辨率、σ=10 ms 高斯平滑),延迟取半峰幅值时刻。另设"Central"变量(图形质心偏中心 vs 偏外周侧)用合并数据检验位置影响,并专门设计凸/凹曲率检验排除低层曲率解释。
主要结果
- 行为上猴确实把 Face 当"脸"处理:未受训练的猴 BE 在"惊吓测试"(surprise test,注视中意外呈现 Face 与 Nonsense 各一)中,落向 Face 的自发性扫视明显更早、呈 300-400 ms 峰簇,而落向 Nonsense 的分布弥散(两分布显著不同,P=0.003,Kolmogorov-Smirnov 检验;14 次提前扫视涉及 12 种不同脸形)。经识别训练的猴 FR 在二选一配对任务中,Face 试次正确率一贯高于 Nonsense(P=0.011,协方差分析),正确反应时也更短(P=0.012,Mann-Whitney),且配对成功率的分布说明是总体倾向而非个别形状(图 3、图 4)。
- 群体层面没有"脸优势":把 143 个细胞的总效应合并看,Facehood 主效应在均值上为零;Facehood × 边界所有权交互的群体均值 −0.008(n=143,P=0.87,t 检验),仅取 V2 细胞也几乎相同(−0.012,P=0.91);人与猴脸剪影之间也无显著差异。典型的"分组细胞+环形模板"类模型(按紧凑/包围性推图形位置)预测的正是这种"Face 与 Nonsense 无差别"(图 5、图 6A-C)。
- 但个体神经元存在真实的类别选择性:交互系数按各自标准误归一化后方差为 1.80,显著大于随机本底 1(χ²=252,df=142,P<4×10⁻⁸;剔除离群细胞后仍 P<3×10⁻⁶),即部分散点是神经元间真实差异。单细胞检验达到显著的共 8 个(Bonferroni 校正后 1 个),图 7 的调制指数散点清晰分为"两类信号相同"(细胞 1-3)与"类别敏感"型——细胞 4 对 Face 呈正调制、对 Nonsense 呈负调制,细胞 5 只对 Nonsense 有强调制、对 Face 几乎没有(图 6C、图 7、图 8、图 9)。
- 类别分化出现得极早且不随时间增长:在能测出延迟的细胞里,Face/Nonsense 差分在 63、64、63、84 ms 起跳,平均 68.5 ms——与 V2 边界所有权信号的起始潜伏期相同,而 V2 神经元平均 48 ms 才开始放电(Sugihara et al. 2011),只剩约 20 ms 供加工;把反应分早段(40-110 ms)与晚段(110-300 ms)比较,调制随时间增强的趋势在 Face 与 Nonsense 上同等出现(8 个细胞中 6/8 与 5/8),"脸优势"在晚段并无额外浮现(配对检验 CI 含 0,P=0.6-0.8)(图 9、图 10)。
- 曲率不构成解释,机制指向"形状探测器并入分组反馈":排除感受野内有曲率的约一半刺激后,Facehood × 边界所有权交互仍然显著(8 个细胞变为 10 个,示例细胞交互方向不变);改用凸性(Convexity)因子分析发现凸整体上略增强边界所有权信号(中位细胞放电率高 18%,P=0.009),但各细胞的凸性交互与 Facehood 互不相关(Pearson r=0.098,P=0.27),凸凹交互的方差也不超过本底(χ²=131,df=125,P=0.33)。因此类别分化出自比单一曲率更复杂的轮廓特征选择性(如多段曲率组合),且从近段/远段分解(图 12 的公式)看,Facehood 交互恰好对应感受野内近段轮廓的镜像翻转效应——作者据此提出:关键的特异性输入是"感知脸朝向方向"的快速形状探测器,它们汇入分组细胞反馈回路(图 11、图 13、图 14)。
图注解读
图 1 · Face、Nonsense、Flat 剪影的构造
原文图注:Fig. 1. Construction of the face silhouettes and related meaningless shapes used as stimuli in this study. A: for each of the original "Face" profiles, a "Nonsense" shape was constructed by placing a line that touched the front of the Face tangentially at 2 points and then mirror-reflecting the contour segment between the tangent points. "Flat" stimuli were constructed by replacing that same contour segment with a straight edge. B: to measure border-ownership selectivity, a point on the front segment of a Face silhouette was centered in the receptive field of a neuron (white circle), and responses were recorded for this silhouette (left) and its mirror image (right). ……
这张图交代了全文的设计基础。A 面板:对每张侧脸剪影,找一条与前段轮廓相切于两点的直线,把两切点之间的轮廓段沿该线镜像反射,得到 Nonsense 形状——由于切线反射,轮廓光滑性得以保持,两类刺激的轮廓长度与特征分布几乎等同;Flat 则把同一段轮廓换成直边,用来把"感受野内的局部轮廓形状"与"决定物体方位的远段轮廓"分开。B 面板演示边界所有权测量:把前段上一点放进感受野中心,剪影绕该点旋转对齐细胞偏好朝向后整体翻转到两侧分别记录。C 给出由同一张人脸衍生的三类剪影示例。支撑"方法"段关于刺激构造与翻转设计的描述。
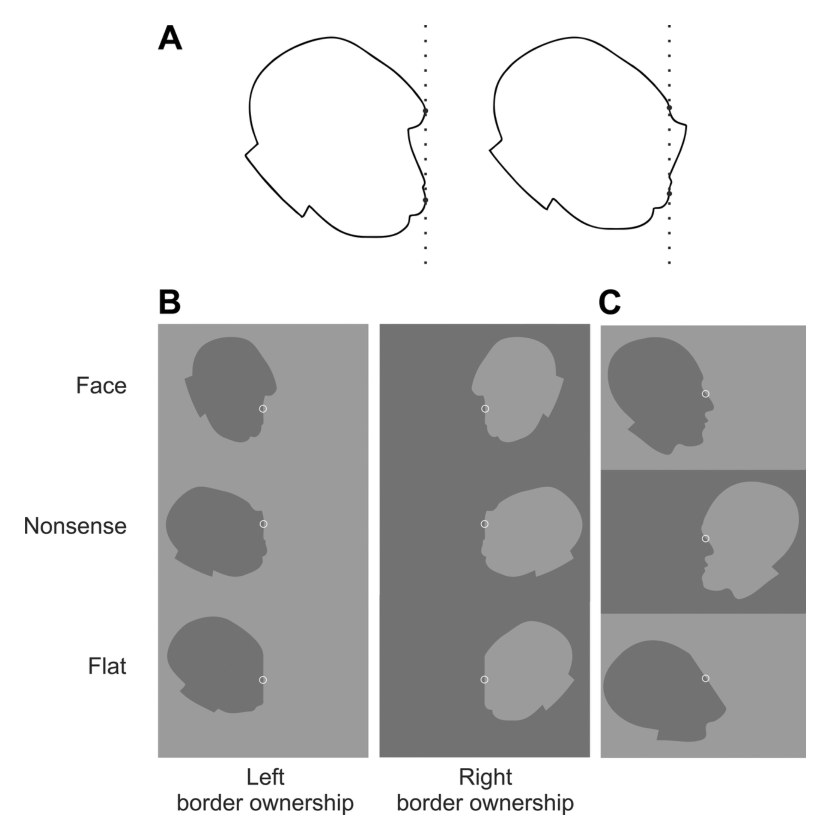
图 2 · 六组 Face 与 Nonsense 刺激家族示例
原文图注:Fig. 2. Illustration of 6 families of Face and Nonsense stimuli. Red circles indicate placement of receptive fields; size of circles shows average receptive field size, relative to silhouettes, at the median eccentricity of our V2 cells (Gattass et al. 1981). Only one contrast polarity is shown. Note that Face and Nonsense shapes can be distinguished easily.
六个家族(每族含 Face、Nonsense 两种)展示了刺激的多样性:侧脸形状千差万别,而与之配对的 Nonsense 只是把前段轮廓镜像翻转、其余部分不变。红圈示意 V2 细胞在典型偏心率下感受野相对剪影的大小——感受野只覆盖轮廓的一小段,远段轮廓必须由感受野外的上下文"感知"。这张图帮助读者理解:Face 与 Nonsense 人眼可分辨,但把它们区分开的特征并非撒布在整个剪影上的某个全局统计量,而是集中在前段指向。
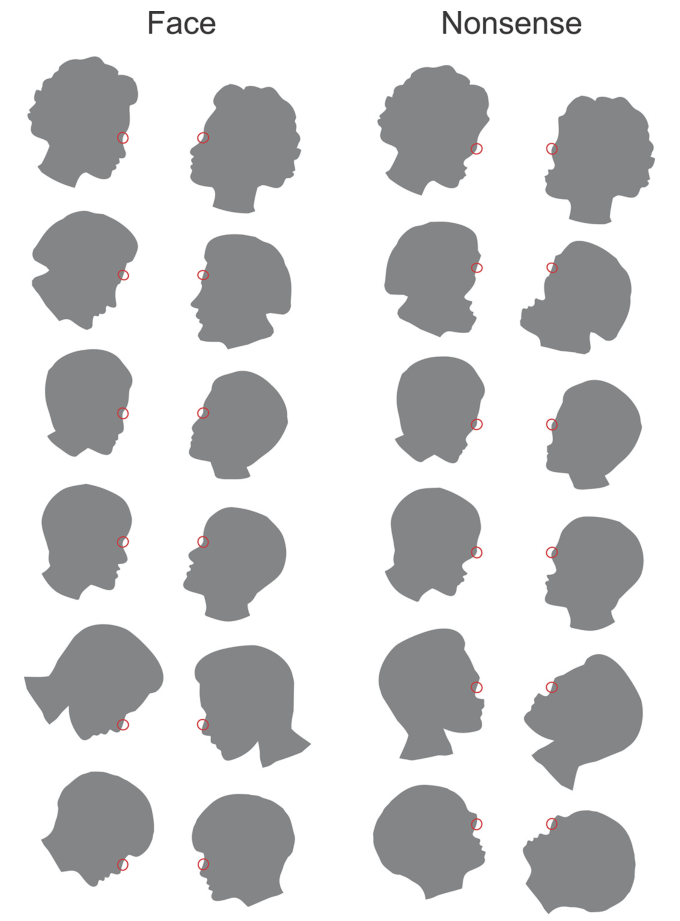
图 3 · 惊吓测试:未受训练的猴自发看向脸
原文图注:Fig. 3. A "surprise test" was used to check if monkeys spontaneously perceive Face and Nonsense silhouettes as different. A: while a monkey was performing a fixation task (cross), occasionally 2 silhouettes were displayed, a Face and a Nonsense shape, and the monkey's spontaneous saccades were recorded. B: histograms of the saccade times for saccades that landed on one of the silhouettes. The animal was rewarded only if fixation was continuous until 1,000 ms (dashed line).
横轴为时间(虚线 1,000 ms 为被奖励的注视终点),纵轴为每时刻落在图形上的扫视次数。孩子式的逻辑:这批剪影与任务无关、猴子也从未见过,若 Face 被"自动"当脸处理,它就会打断注视。数据(首日 334 个暴露试次)显示,提前破坏注视的扫视中落向 Face 的(峰值约 300-400 ms)比落向 Nonsense 的显著更早成簇(P=0.003,K-S 检验),而任务成功后偶然落在图形上的自发性扫视则两类无别——排除了一般的低层偏好。该结果支撑"行为证据"条,也回应了皮肤刺激可能有低层统计差别的疑虑。
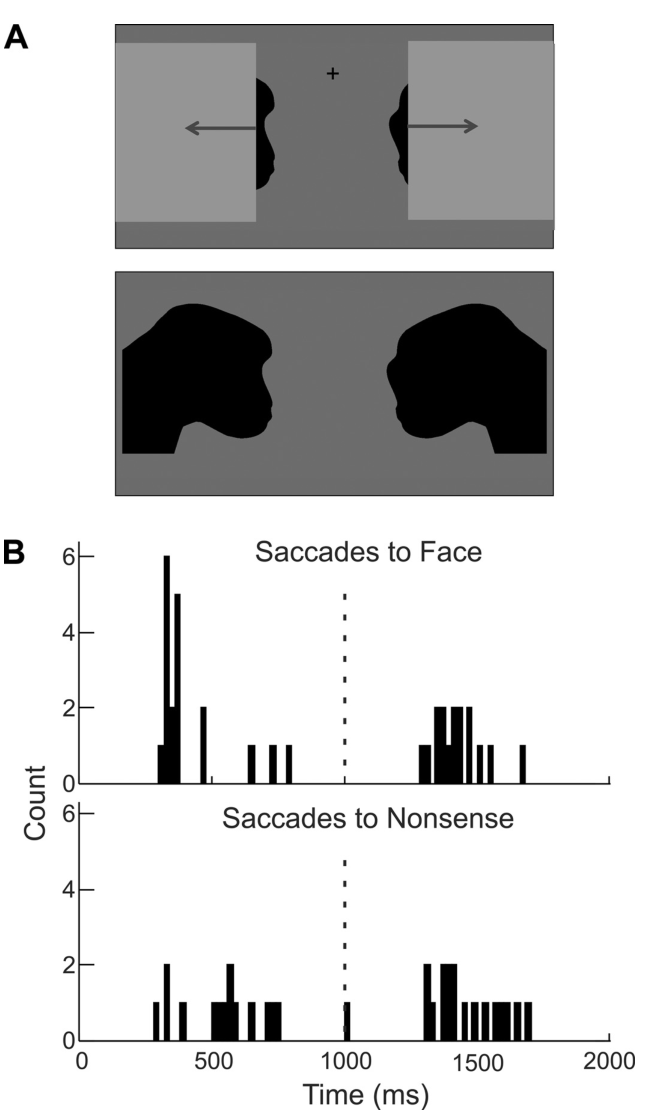
图 4 · 配对鉴别任务:Face 判断更准更快
原文图注:Fig. 4. Monkey performance in a 2-choice match-to-sample task. A: during periods of fixation, a sample Face (or Nonsense) silhouette was displayed for 1 s at fixation, upon which fixation point and sample silhouette were turned off and 2 Face (or Nonsense) silhouettes were displayed left and right, one of which was the same shape as the cue while the other was different. The monkey, who had been trained previously on this task with other shapes, was rewarded for saccading to the matching shape. B: the proportion of correct responses as a function of time (session number). Filled circles and solid line, Face trials; open circles and dashed line, Nonsense shape trials. Inset, distributions of proportion correct for the individual profiles.
A 说明任务流程:先呈现提示剪影 1 s,延迟后左右各现一个剪影,猴须看向与提示相同的那个。B 面板横轴为训练天数、纵轴为正确率:两种形状的正确率都随练习上升,但 Face(实心圆、实线)始终压住 Nonsense(空心圆、虚线),ANCOVA 给出 P=0.011 且两组斜率无差;同区间正确反应时 Face 更短(P=0.012)。内插图给出各单独轮廓的配对成功率分布,说明脸形鉴别优势不是个别形状贡献的。与图 3 一起支撑"Face 剪影被更有效、更快地加工"的行为前提。
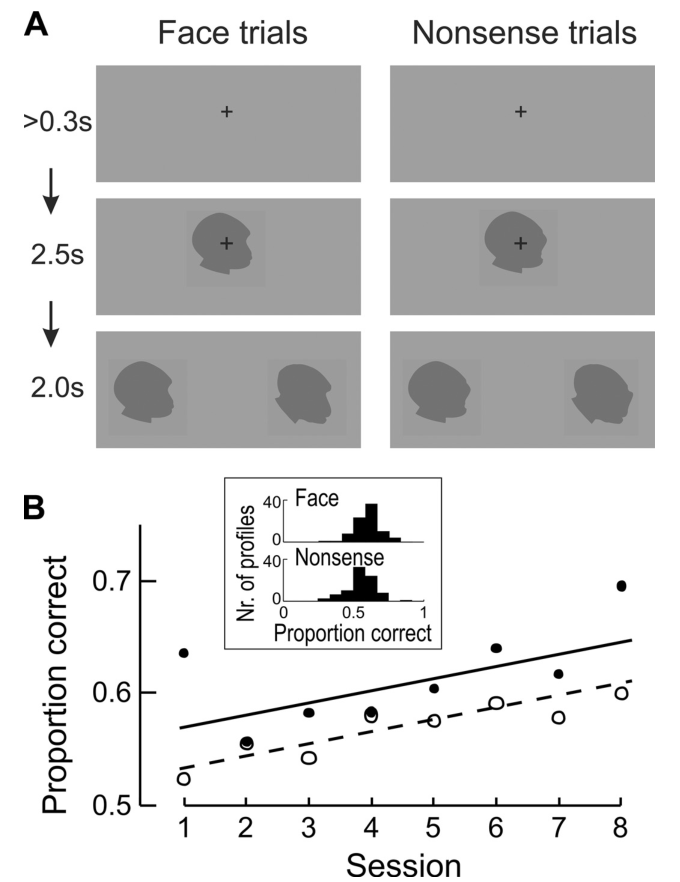
图 5 · 群体边界所有权信号:Face 与 Nonsense 几乎一条线
原文图注:Fig. 5. The time course of border-ownership signals for Face silhouettes (red) and Nonsense shapes (blue). The curves show the difference between the peristimulus spike time histograms for preferred and nonpreferred sides, smoothed with a Gaussian of σ = 10 ms. Data are averages over all neurons that showed a significant effect of border ownership (n = 52). Shading indicates 95% confidence intervals.
这是"群体无脸优势"最直观的一张图:横轴为刺激后时间,纵轴为偏好侧减非偏好侧的平均放电差(即边界所有权信号本身),红线为 Face、蓝线为 Nonsense,阴影为 95% 置信区间。两条曲线几乎重叠:起跳时间约 70 ms 上下,幅值相近且都持续到数百毫秒。由此首条"负结论"成立——把信息在群体层面平均后,意义(脸与否)并不放大边界所有权编码;若存在经典的自上而下反馈,两线应在晚期分离,而它们没有。
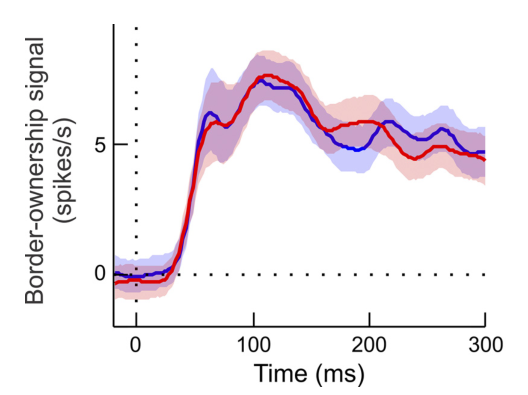
图 6 · 四类形状效应的两两比较与真实的个体差异
原文图注:Fig. 6. Comparison of the border-ownership signals for 4 different classes of shapes. The border-ownership signals, as determined by linear effects models (see MATERIALS AND METHODS), are shown for each neuron. A shows the mean of Face and Nonsense effects plotted against the effect of squares, B shows the effects of Flat silhouettes vs. squares, and C shows the effects of Face vs. Nonsense silhouettes. Each dot represents a neuron (n = 143). Dashed lines show a slope of 1 (identity). Ellipses indicate the average size of the 95% confidence intervals of the individual dots. In C, the scatter orthogonal to the identity line is significantly greater than expected from the random variation of the coefficients (χ² = 252, df = 142, P < 4·10⁻⁸).
三个散点图每个点是一个神经元。A:ρ=0.44;B(Flat vs 方块):ρ=0.45,均 P<0.0005。,说明同一神经元对不同形状偏好同一侧图形,这是周 et al. 经典结论的推广;点略低于对角线提示剪影的边界所有权效应总体弱于方块(Wilcoxon 不显著)。B:Flat vs 方块,倾向增强但不显著。关键在 C:Face 效应 vs Nonsense 效应——若群体有脸优势,点云应整体偏到对角线一侧,实际点沿对角线对称散布(均值 P=0.87),但垂直对角线方向的散布显著超过测量噪声本底(方差 1.80 vs 1),这正是"个体神经元真实分化"的量化证据,把零结果与个体效应同时装进了一张图。
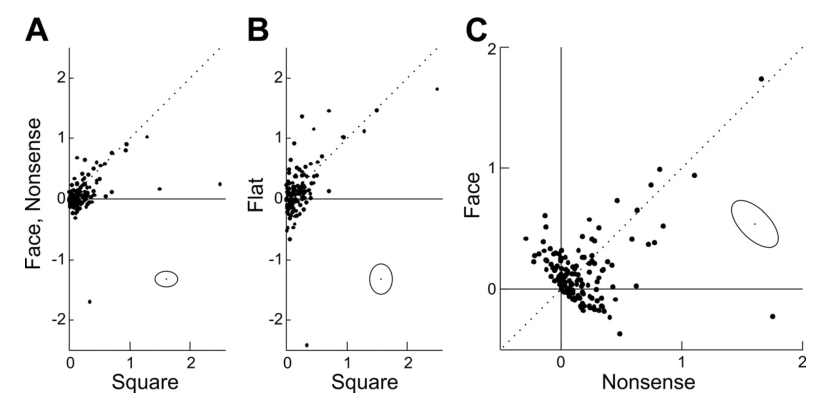
图 7 · 调制指数散点:挑出五类代表神经元
原文图注:Fig. 7. Border-ownership modulation of the responses to Face and Nonsense shapes. Data are replotted from Fig. 6C but show modulations of firing rate instead of regression coefficients. Red numbers label the dots representing the neurons for which data are illustrated in Figs. 8 and 9.
横纵轴分别为 Nonsense 与 Face 条件下的边界所有权调制指数(偏好侧减非偏好侧比上两者之和,消除了神经元间总体反应强度的差别)。靠近 45° 对角线的点表示两类刺激调制相同(标红 1-3);偏离对角线的点表示类别敏感,如点 4(Face 正调制、Nonsense 负调制)与点 5(Nonsense 强调制、Face 几乎为零)。这张图把图 6C 的回归系数翻译成更直观的"调制方向"语言,并预告了后面图 8、图 9 要细看的五个例子。
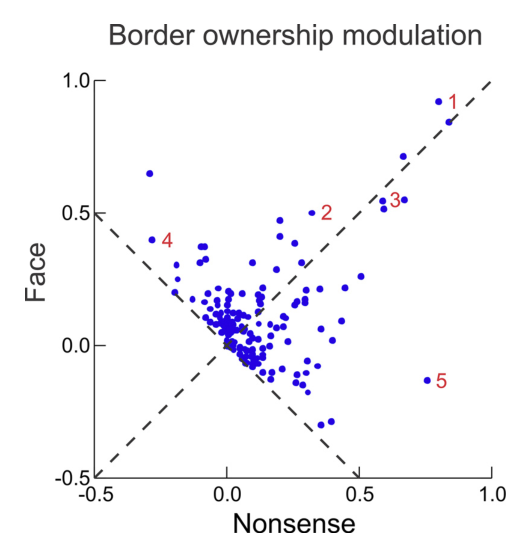
图 8 · 细胞 1-3:边界所有权信号与轮廓形状互相独立
原文图注:Fig. 8. Time course and strength of responses of 3 neurons (cells 1-3) with similar responses to Face and Nonsense shapes. Top, peristimulus time histograms (PSTHs) of the responses to contours of Face (red), Nonsense (blue), and Flat (green) silhouettes. Solid line, preferred border ownership; dashed line, nonpreferred border ownership. Middle, PSTHs of the responses to edges of small and large squares. Solid line and broken lines defined as above. Bottom, mean firing rates during 50-300 ms for the 5 sets of stimulus shapes. Filled bars, preferred border ownership; open bars, nonpreferred border ownership. Error bars indicate SE.
每个细胞上下三排:上排为三类剪影的 PSTH(实线=偏好侧所有权,虚线=非偏好侧),中排为大小方块的 PSTH,下排为 50-300 ms 平均放电率的条图(实心条=偏好侧,空心条=非偏好侧)。细胞 1 对全部五类形状都有近乎 100% 的边界所有权调制——图形的"位置"决定一切而形状无关;细胞 2 对 Face/Nonsense 反应强而 Flat/方块反应弱;细胞 3 恰好相反。作者据此提出每个细胞 = "局部轮廓形状选择性"(决定平均反应强度)与"全局轮廓配置选择性"(决定所有权调制)两个独立机制的组合,这为图 13 的分组细胞模型留下接口。
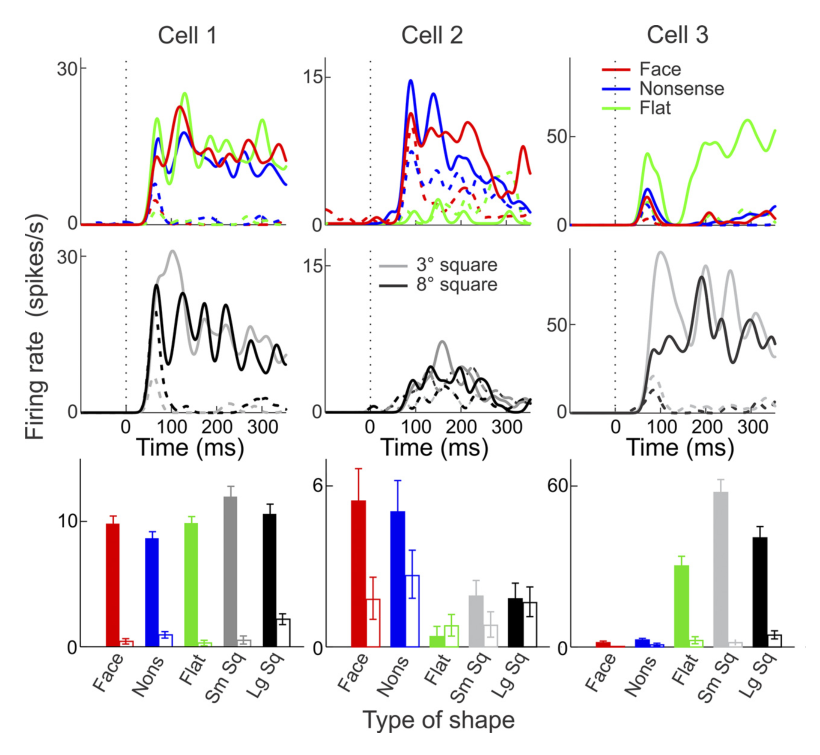
图 9 · 细胞 4-5:Face/Nonsense 分化与所有权信号同起点
原文图注:Fig. 9. Time course and strength of responses of 2 neurons (cells 4 and 5) with different responses for Face and Nonsense shapes. A: PSTHs and bar plots of response strengths for Face and Nonsense silhouettes (conventions as for Fig. 8). Traces labeled V and H above the PSTHs show vertical and horizontal components, respectively, of the mean fixation position for the preferred border-ownership condition, showing that there was no systematic difference between Face and Nonsense trials. B: border-ownership signals (i.e., the difference between preferred and nonpreferred PSTHs) for Face (red) and Nonsense (blue) silhouettes. Note that the border-ownership signals for Face and Nonsense differ right from their onset.
本文最关键的图。A 显示细胞 4 与 5 的反应时间过程及条图,PSTH 上方标注 V/H 两色注视轨迹以确证两类试次间没有注视位置的系统差(差异并非眼动伪迹);两细胞的 Facehood × 边界所有权交互都高度显著。B 把偏好-非偏好之差单独画出(红=Face,蓝=Nonsense):两条差分曲线从一开始(64 与 63 ms)就分道扬镳,而非"先一致、稍后翻开"。结合另两个细胞(63、84 ms)平均约 68.5 ms 的分化延迟,这一"与所有权信号同时起跳"的现象直接排除了延迟反馈解释,支撑"极早类别分化"那条结论。
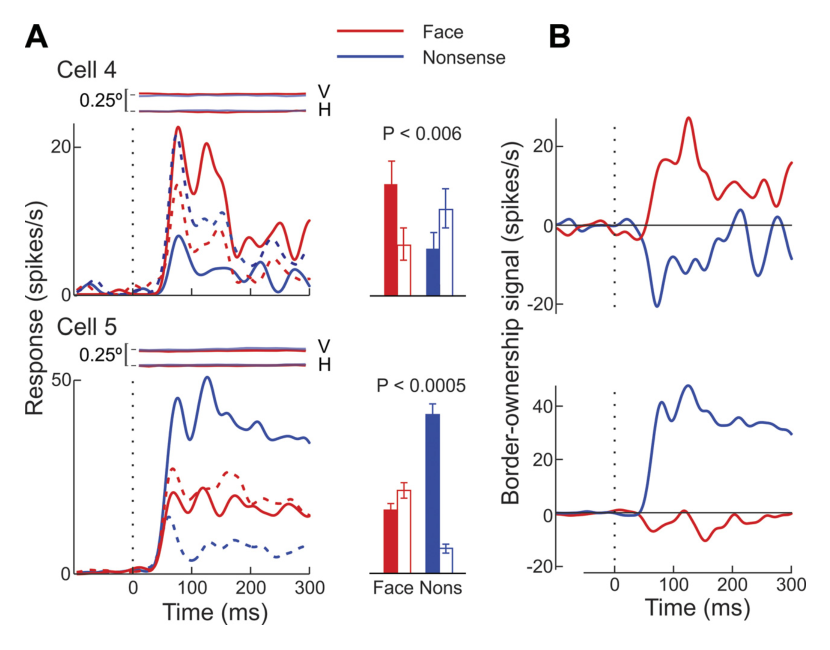
图 10 · 早晚两时相:没有晚到浮现的"脸优势"
原文图注:Fig. 10. Test for a late influence of Facehood. The interaction Facehood × Border ownership was determined for the early (40-110 ms) and late (110-300 ms) phases of response. Arrows connect the 2 estimates of border-ownership modulation for each neuron, pointing from early to late (red, Face shapes; blue, Nonsense shapes). Border-ownership modulation tended to strengthen with time, but not more for Face shapes than for Nonsense shapes. Data are from cells with significant Facehood × Border ownership interaction.
箭头从早段(40-110 ms)调制指数指向晚段(110-300 ms)估计值,红箭头为 Face、蓝箭头为 Nonsense,每个箭头对应一个有显著交互的细胞(n=8)。读图要点:多数箭头朝右(所有权调制随时间总体变强,Face 6/8、Nonsense 5/8),但两类箭头偏移的幅度一致——专门检验"脸优势随时间增加"的配对比较给出 CI 含零(n=8、52、42 个细胞三组都是 P=0.6-0.8)。由此"晚期自上而下放大"的预期被正面否定,与图 5、图 9 一起构成本文对反馈假说的双重打击。
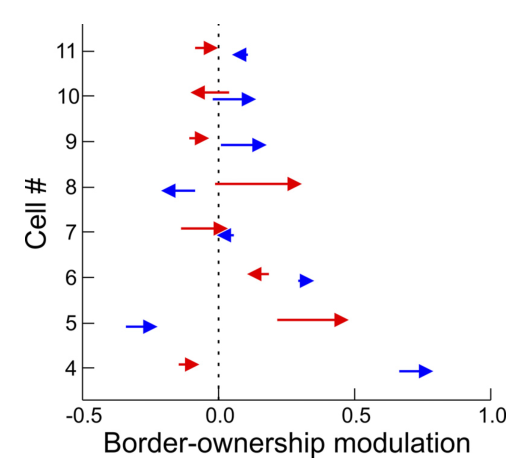
图 11 · 分化效应跨 100 种轮廓形状保持一致
原文图注:Fig. 11. Consistency of the Face/Nonsense discrimination. The numbered bar plots correspond to the 8 cells in which the mean border-ownership signals differed between Face and Nonsense shapes; numbers 4 and 5 correspond to the cells illustrated in Fig. 9. Bars represent the difference between Face and Nonsense border-ownership effects for each of the 100 basic profile shapes tested. Within cells, the differences were highly consistent across the different profile shapes, whereas their signs varied between cells.
每个小条图对应一个类别敏感神经元,横轴上的每根柱是一个基础轮廓(共测试 100 种)的 Face 减 Nonsense 所有权效应差。图内一致、图间翻转:同一细胞内几乎所有柱都朝同一方向(说明该细胞不是对个别轮廓、而是对"脸 vs 非脸"这一类别层面的区分),而柱的正负号在细胞之间可正可负(这解释了群体平均为何归零)。这张图同时排除了"个别形状低层差异"的解释——不可能有任何一个简单局部特征贯穿 100 种脸形而不出现在任一 Nonsense 中。
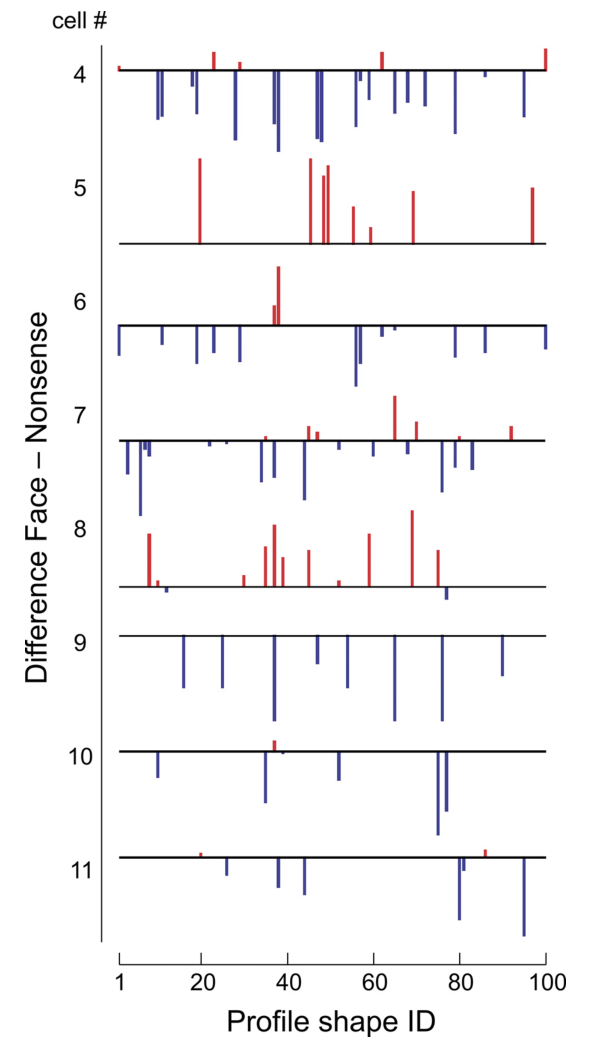
图 12 · 近段/远段分解:分化对应近段轮廓的镜像翻转
原文图注:Fig. 12. Schematic summary of the results illustrated in Figs. 8 and 9. The contours of the Face (top) and Nonsense (bottom) stimuli consist of a proximal segment that passes through the receptive field (circle) and a distal segment that determines the location of the object relative to the receptive field. The colors of the lines indicate the effects of each segment in the 5 neurons identified at top (red = enhancement, blue = suppression, gray = none). The combination of the 2 effects results in weak, medium, or strong responses, as indicated.
这是把图 8、图 9 的五类细胞压缩成的一张"接线图":每条剪影轮廓划成穿过感受野的近段 P 与决定物体在何侧的远段 D,线段颜色标注该段对反应的促进(红)、抑制(蓝)或无影响(灰)。边界所有权信号源自整体翻转:所有权主效应 ≈ 远段的镜像翻转效应(全局配置贡献),而 Facehood × 所有权交互 ≈ 近段的镜像翻转效应(局部形状贡献)。细胞 1-3 只有远段起作用;细胞 4 只有近段起作用;细胞 5 两段都起作用,在 Nonsense 中协同、在 Face 中抵消。由此作者论证:类别分化必须并被归结为"对近段轮廓朝向的选择性",即感知剪影的脸指向何处的机制。
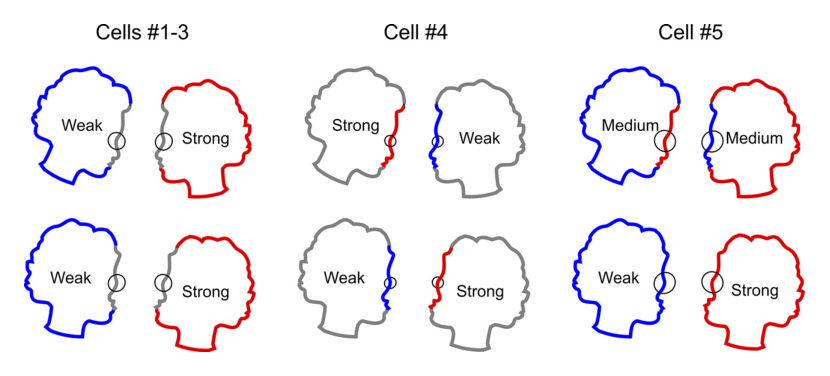
图 13 · 机制候选:把形状探测器并入分组细胞反馈
原文图注:Fig. 13. Toward an explanation of the Face/Nonsense differentiation in border-ownership signals. Neurophysiological constraints (see DISCUSSION) indicate that border-ownership coding in V1/V2 is based on feedback from grouping cells at a higher level. A: a specific model (Craft et al. 2007) assumes that grouping cells (G) sum the responses of edge-selective V2 neurons (red balls; solid arrows) and in turn modulate the responses of those same edge neurons by feedback (dashed arrows). B: G cells have fuzzy annular summation templates that come in various sizes, and each V2 neuron connects to all G cells with tangent templates on either one side or the other, shown for the V2 neurons representing the vertical edge in the center. This asymmetric feedback from G cells makes the V2 neurons border……
A 图示 Craft 等分组细胞模型的基本回路:更高层的分组细胞 G 把 V2 边缘神经元(红球)的输出按"环形模糊模板"加和,再以反馈(虚线箭头)调制同一批边缘神经元,从而产生边界所有权选择性;灰球代表额外的特异性线索输入(立体视边缘、T 形结等遮挡特征检测器)。B 说明模板的几何:不同尺寸的环状模板让每个 V2 细胞以切点方位接入一侧或另一侧的 G 细胞。C 是作者的关键扩展:既然近段轮廓能左右所有权信号,G 细胞还应接收"对脸指向方向特异"的快速形状探测器输入——不论该轮廓段属于 Face 还是 Nonsense,它都报告此段"脸味"的朝向。这解释了图 11 的形状不变性与图 9 的极早潜伏期。
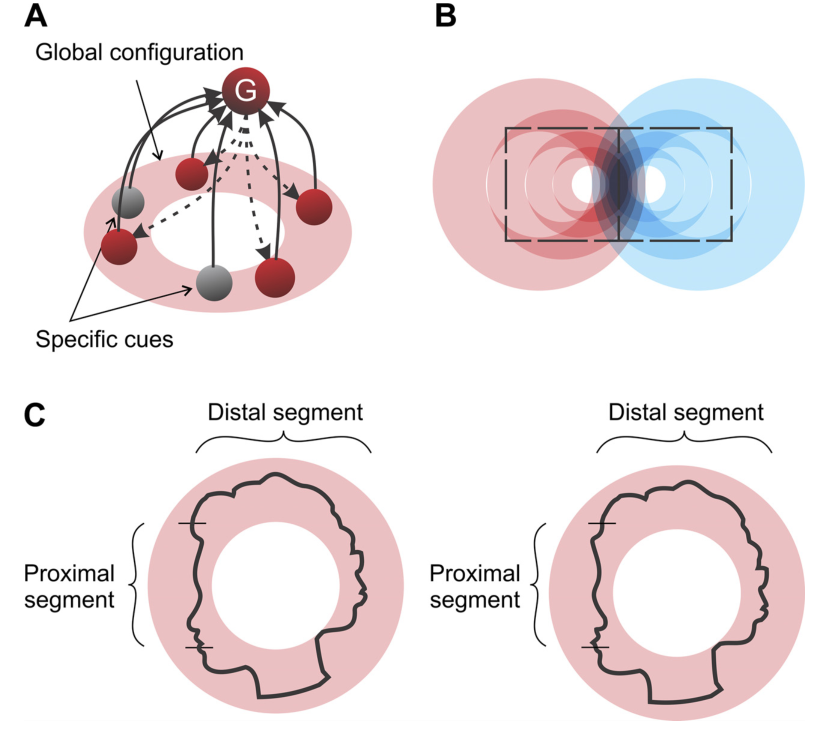
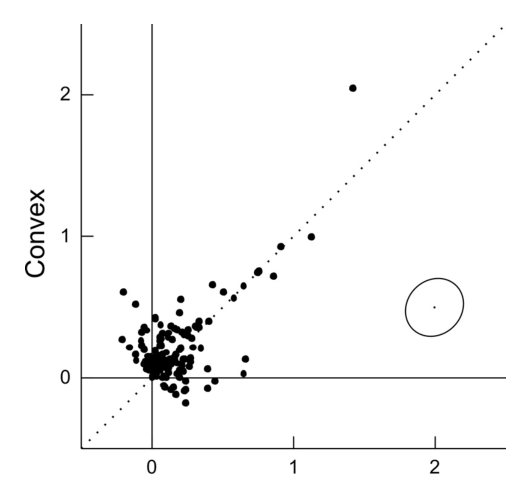
图 14 · 曲率对照检验:凸凹选择性不是根源
原文图注:Fig. 14. Comparison of the border-ownership signals for silhouettes with convex and concave local curvature. Each dot represents a neuron (n = 126). Dashed line indicates slope of 1 (identity), and axes of the ellipse represent 6 times the average SD of the corresponding model coefficients. The scatter orthogonal to the identity line is no greater than expected from the random variation of the coefficients. Thus there was no evidence for neurons with specific selectivity for convex or concave local curvature, in contrast to the scatter corresponding to the Face/Nonsense categories in Fig. 6C.
与图 6C 同构的散点图,只是换成凸/凹曲率条件的所有权信号对比。读法:点略偏对角线以上(平均交互 0.013,P=0.009),说明凸性平均略微增强所有权信号(中位细胞放电高约 18%)——这与知觉中"凸侧拥有边界"的规则(Kanizsa)一致;但决定性在散布:垂直对角线方向的散布不超出随机本底(χ²=131,df=125,P=0.33),且凸性交互与 Facehood 交互跨细胞不相关(r=0.098,P=0.27),示例细胞 4、5 的凸性交互都不显著。拿这张图与图 6C 并排看,可以断言类别分化来自比曲率更复杂的轮廓特征选择性。
讨论
讨论的主线由"两个结果"撑起:一是不存在群体"脸优势",二是个别神经元存在真实且极早的类别选择性。作者先处理前一个问题:Face/Nonsense 剪影在构造上把低层特征严格配平,若高层识别区(后 IT 形状选择约 130 ms 起跳,Hung 等 IT 人群解码约 70 ms 起高于机会水平、92 ms 达半峰。)报出"这是脸"再通过延迟反馈强化边界所有权,早晚两段比较应该见到脸优势,但没有任何迹象。不过作者诚实地划定了外推边界:实验用的是空旷背景中的孤立图形,图形-背景分离本来就容易,分组细胞的活动可能已被全局轮廓配置"喂饱",意义的影响或许要在更困难的任务里(如 Peterson 式模糊归属)才会显形;同时意义的作用可能依赖注意——行为测试里 Face 的优势伴随注意卷入,而记录期间猴子只做注视、剪影与任务无关。所以结论不是"不存在自上而下影响",而是"在不注意也能产生强图形-背景组织的情境中,不需要自上而下影响"。
后一个结果则把问题翻转成时间约束。作者论证:边界所有权信号潜伏期很短,皮层内水平传播太慢,故必须有更高层的分组反馈(白质纤维传导约快 10 倍;且常见分组细胞同步放电的直接证据);但 Face/Nonsense 分化又比 IT 的形状选择反应(后 IT 平均 112 ms)早约 20 ms 以上,主流腹侧通路反馈来不及——唯一时序上可行的是颞叶中"脸斑"区那种最快 66 ms 的前馈式脸类别检测(Ohayon et al. 2012),以及指向脸的扫视最早 100–110 ms、指向动物 120–130 ms(Crouzet et al. 2010;Kirchner & Thorpe 2006)。与 Zhou et al. 2000、Hesse & Tsao 2016 一脉相承,作者拒绝"视觉皮层最终收敛为一张统一的图形-背景表征"的想法,主张视觉皮层是若干并行加工中心的互联系统(Kravitz et al. 2013),图形-背景组织由多个快速专门机制拼出的"原型物体"(proto-object)表征支撑,它们服务于分类识别之外的知觉功能——跨时间追踪物体、从杂乱场景中选出注意对象、为抓取等动作编程。
一句话总结
我觉得这篇文章最锋利的地方是用了"延迟方向"这个不对称论据:晚出的差异不能证明自上而下(也可能是低层加工拖延),早出的差异却能干脆利落地否定"识别先行、反馈塑形"的经典脚本。群体信号无差别而个体细胞分化、且分化早到与边界所有权同拍——这与"意义塑造早期视觉"的直觉叙事恰好相反,却与超快脸检测的行为学证据吻合。当然,空旷场景、无注意条件下的零结果未必能推广到模糊与复杂场景,这是文中自己承认的边界。以上是我的理解。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig10: 提取质量
good,对齐度full,识别面板[] - Fig11: 提取质量
good,对齐度full,识别面板[] - Fig12: 提取质量
good,对齐度full,识别面板[] - Fig13: 提取质量
good,对齐度full,识别面板[A, B, G] - Fig14: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[A, B] - Fig4: 提取质量
good,对齐度full,识别面板[A, B] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig7: 提取质量
good,对齐度full,识别面板[] - Fig8: 提取质量
good,对齐度full,识别面板[] - Fig9: 提取质量
good,对齐度full,识别面板[A, B]
关键事实与局限性声明
- 审校纠偏: {'md_section': '图注解读 · 图 9', 'current_text': '这一“与所有权信号同时起跳”的现象直接排除了延迟反馈解释', 'problem': '原文措辞为 “The short latency seems to rule out feedback from the principal object recognition pathway in the inferotemporal cortex”,限定于后 IT 主腹侧通路的延迟反馈,且作者明确保留了脸斑 66 ms 快速前馈检测的可行性;“直接排除了延迟反馈解释”语气强于原文的 seems to rule out,建议软化为“对来自后 IT 识别通路的延迟反馈解释构成强约束/基本排除”,以与笔记开头“形成硬约束”的准确表述一致。', 'classification': 'OVERCLAIM_mild'} -> 评注:
- 补充要点: : (第 页)
- 补充要点: : (第 页)