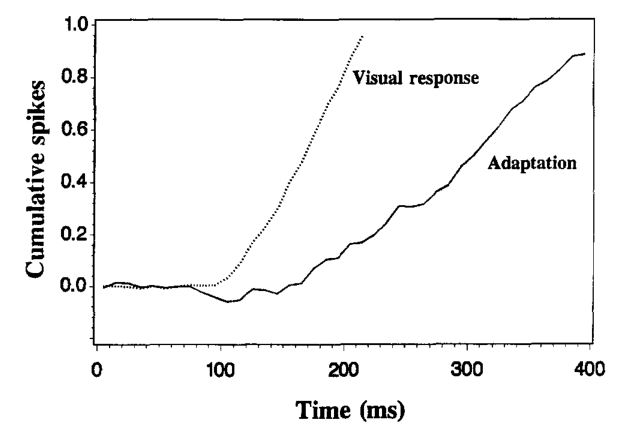
该综述兼机制分析系统评估了猕猴下颞皮层(inferior temporal cortex, IT)与内侧颞叶的刺激特异性适应(stimulus specific adaptation, SSA)现象:即已呈现过的视觉刺激再次出现时,大量神经元放电减弱,而对插入的新异刺激保持正常响应。Ringo 将既往文献中分散使用的概念(“反应衰减”、“熟悉度效应”、“自适应记忆过滤”)整合为包含九项属性的现象学框架,对比了全细胞疲劳假说与局部突触可塑性假说的经验预言,并利用群体神经元累积脉冲计数数据(图 1)指出 SSA 相对初始视觉放电存在约 50 ms 的潜伏期延迟。
研究背景
图像重复呈现时,部分颞下皮层神经元会特异性降低对相同图像的放电反应,而对中间穿插的新图像仍维持正常反应。Brown 等与 Baylis、Rolls 分别于 1987 年报告了此类现象,后续研究显示该效应的时间尺度跨度较大:部分神经元在间隔 1–2 个刺激后适应消失,而在鼻周皮层及相邻颞下皮层,抑制效应可跨越数十至上百个干扰刺激,并可持续数小时至 24 小时。既往文献中“熟悉效应”、“反应减弱”和“自适应记忆过滤”等不同称谓描述了重叠的生理现象。Ringo 采用刺激特异性适应(SSA)这一术语,以突出该放电压低特异于特定已知刺激,而非视觉系统的泛化抑制。
刺激特异性这一特征排除了全细胞水平的普遍代谢性疲劳:若为全细胞疲劳,新插入刺激的放电亦应同等衰减;若为参与特定图像表征的局部突触子集发生效能压抑,则能在维持对新刺激反应的同时实现特异性抑制。适应持续时间、压低幅度、解剖脑区分布以及反应潜伏期构成了检验机制的客观指标。若突触可塑性发生在局部皮层微回路内,适应效应应滞后于初始外周传入触发的初级视觉响应;若发生在传入神经末梢,抑制则应与视觉响应同步发生。此外,SSA 在无需显式记忆再认判断的被动注视任务中同样存在,表明该生理现象并不必然等同于意识层面的再认判断,其与行为学再认成绩的因果关联需要实验检验。
本文系统梳理了 SSA 的解剖学与电生理特征,通过群体神经元数据测定了 SSA 相对视觉反应的起始潜伏期,并讨论了其可能的突触基础与功能定位。结果显示群体 SSA 较视觉起始响应延迟约 50 ms,且该效应广泛分布于下颞皮层与鼻周皮层,但在海马与下托极少记录到,表明区域间不可简单类推。在视交叉与胼胝体压部切断猴的眼间传递实验中,改变输入眼会导致神经元 SSA 消失,但动物的行为再认能力仍能保留,提示皮层神经元的 SSA 并非视觉再认行为的唯一充分必要神经载体。
研究思路
作者遵循“现象特征清单 → 机制假设判别 → 功能假说推导”的分析逻辑。首先系统总结 SSA 的各项属性:刺激特异性、维持时间、压低幅度、诱发条件、解剖分布、放电时程、细胞类别对应、熟悉度与近因性区分,以及人类皮层术中记录的证据对照。随后对比两类候选神经机制:一是单神经元全细胞疲劳假说,二是局部网络突触前与突触后协同放电引起的突触效能压抑(类比小脑长时程压抑 LTD)。该假设推导出了明确的时序预言:若可塑性源于局部回路突触,适应发生时间应显著滞后于初级视觉传入;若位于外来投射突触,则应即时体现。图 1 提供的群体时程数据为判别该预言提供了直接证据。最后,文章提出了 SSA 在再认表征、注意习惯化以及缓解特征绑定混淆等方面的功能推测,并评估了各自的适用边界。
方法
该文以综述为主,同时整合了作者与 Sobotka 合作的两组未发表及已发表实验数据:一组为无需主动识别重复的连续呈现任务(Sobotka & Ringo 1993),另一组为序列视觉再认任务(未发表记录,图 1 来源)。图 1 数据来自成年恒河猴下颞叶 TE2 区经随机筛选的 92 个对视觉刺激显著兴奋的神经元。实验中同一相对新异的图像连续重复呈现 5 次,其间穿插其他 2 张图像。SSA 量化为第 1 次与第 5 次呈现时的放电差值,通过绘制累积脉冲计数曲线确定初始视觉响应与适应效应的潜伏期拐点。文献对照部分纳入了人类神经外科术中皮层微电极记录数据(Heit 等 1988;Haglund 等 1994)。
主要结果
- 神经元占比与抑制幅度:在未经预先挑选的 TE1、TE2 及鼻周皮层神经元样本中,约四分之一呈现显著的 SSA。在首次呈现受视觉兴奋的细胞群体中,Riches 等(1991)报告约 80% 出现重复反应下降(据此估算约 60% 为特异性适应细胞,其余包含生理随机波动);Sobotka 与 Ringo(1994)的样本显示 72% 下降(约 44% 为特异性适应)。细胞平均反应下降幅度约为 20–50%,部分敏感神经元放电降幅超过 50%,个别神经元对重复刺激几乎完全无反应,但对新异刺激放电正常。
- 适应效应时间尺度跨度宽广:从秒级的短间隔重复,到跨越数十甚至上百张穿插图像、持续数十分钟(Li 等 1993),至间隔 1 小时后依然存在(在 TE2 区 30 个视觉反应细胞中,26 个对 1 小时前见过的熟悉刺激仍保持显著反应下降,r=0.68),文献记录的最长保持期达 24 小时(Fahy 等 1993,一组神经元能够维持约 100 张熟悉图像的适应表征)。单张刺激的总曝光次数是调节适应时长的关键参数之一。
- 明显的解剖分布梯度与海马缺位:SSA 在 TE1、TE2 和鼻周皮层表现最为显著,内嗅皮层(entorhinal cortex)与颞极 TG 区次之,TE3 区相对较弱,而在海马与下托(subiculum)基本缺席(海马中仅约 2% 的神经元记录到 SSA,另有 1–2% 记录到物体与空间位置联合特异性适应)。尽管颞下与鼻周皮层向海马-下托回路提供高阶视觉传入,海马自身却极少出现 SSA,表明显示 SSA 的皮层投射可能并非驱动海马放电的主干输入。
- 适应相对于视觉初级响应存在约 50 ms 延迟(图 1):群体平均分析显示,视觉放电起始潜伏期约为 100 ms,而 SSA 差值放电在 150 ms 之后才显著偏离零点,即群体特异性放电抑制滞后于视觉响应约 50 ms。文献中同时存在即时与延迟两种时相记录:Miller 等(1993)发现对于高度熟悉的匹配图像,适应几乎即时出现,而对于新异样本图像,初次重复时适应延迟出现并在数次重复后逐渐前移;Fahy 等亦分别记录到即时型与约 100 ms 延迟型的单细胞实例。两类时序在微回路中的神经元亚群对应关系尚需明确。
- SSA 不是完成简单视觉再认的充分必要条件:在视交叉与胼胝体压部联合切断(前联合保留为唯一前脑视觉通路)的猕猴实验中,同侧眼重复刺激可诱发正常的单细胞 SSA;但若改为对侧眼呈现,神经元 SSA 完全消失,放电恢复至新异水平。尽管如此,猴在此条件下仍能完成再认行为测试(仅行为准确率略有下降),证实单个记录电极处的 SSA 并非行为学再认功能唯一必需的神经中介。
图注解读
图 1 · 群体累积脉冲计数:SSA比视觉响应晚启动
原文图注:Fig. 1. The cumulative spike counts showing a delay in the SSA with respect to the visual response. These curves are averages from the entire population of cells selected only for their visual responsiveness (n= 92). The curve labeled visual response is the average cumulative spike total (above a pre-response baseline) for the first presentation of the visual stimuli. The curve labeled adaptation is the cumulative spike count for the SSA. SSA is quantified as the difference between the responses to the first presentation and the last (fifth) presentation of the same visual stimuli. This curve is the cumulative difference. The cumulative curves are presented to allow an estimate of latency. Since the measures of visual response and adaptation both employ a subtraction (of baseline or comparison activity), in the absence of a visual response or in the absence of adaptation, each value should hover around zero. The latency of the population visual response is about 100 ms, the latency of the SSA is after 150 ms. Data from Sobotka and Ringo (unpublished observations).
解读:横轴为时间(约 0–400 ms),纵轴为累积脉冲计数差值(刻度 0–1.0,按文中量化方式给出;具体单位换算原文未标明,该图主要用于估读潜伏期而非绝对数值)。两曲线的拐点差即延迟时间:“视觉响应”曲线对应同一图像首次呈现的平均累积计数(经基线校正),约 100 ms 处开始上升;“适应”曲线对应第 1 次减第 5 次呈现的累积差,在 150 ms 后才偏离零点。这表明群体水平上重复刺激诱发的放电抑制比初始视觉响应晚约 50 ms。该图直接支撑主要结果第 4 条,也为“局部微回路突触可塑性导致适应延迟”的机制假设提供了电生理依据。
讨论
在机制归因方面,作者分析指出单纯全细胞疲劳假说无法成立,因代谢耗竭无法保留对未见新刺激的兴奋响应;若引入神经元集群(cell assembly)正反馈放大微弱疲劳的修正假设,则会面临表征容量与时间维持的逻辑冲突(下颞叶细胞调谐相对宽泛,连续呈现少数刺激便会迅速泛化至全脑区抑制,而实验证实单批神经元可在 24 小时内并行保留 100 张图像的特异适应)。突触层面的协同可塑性假说更为契合:突触前与突触后协同放电诱发突触效能局部下降(类似 LTD),在统计上仅削弱特定刺激对应的突触组合,容量可随突触自由度扩展;同时该假设预测了时钟分布的异质性——局部回路突触重塑对应延迟型适应,而前馈传入突触修饰则表现为即时型适应,契合图 1 所示的时程分离。在功能定位层面,作者讨论了三种可能:其一为再认记忆载体,但该推论受到眼间传递实验的制约(SSA 消失时再认行为依然保留);其二为朝向反射习惯化(habituation)在感觉皮层的神经对应,类似海马神经元的新异性滤过;其三为缓解下颞叶特征绑定混淆(binding problem),即下颞叶神经元感受野大且缺乏精细空间拓扑,熟悉刺激诱发的背景放电容易与新刺激产生特征干扰,SSA 降低已知背景刺激的活动水平,使新刺激获得更清晰的信噪比以利于特征抽取与关联存储。作者强调,不同皮层亚区乃至同一脑区不同细胞层之间的 SSA 性质存在生理分异,不能将局部观察直接外推至全脑系统。
一句话总结
本综述系统梳理了颞下与内侧颞叶的刺激特异性适应(SSA)现象,通过群体潜伏期数据证实放电抑制相对初级视觉响应存在约 50 ms 延迟,为局部网络突触可塑性假说提供了电生理支持,并通过分离眼间传递与行为表现证明单区 SSA 并非行为再认的唯一必需载体。