这是 Vogels 与 Orban 为《Progress in Brain Research》专辑(Norita、Bando、Stein 主编)撰写的工作总结,核心问题是:猕猴颞下皮质(inferior temporal cortex, IT)神经元对形状的选择性,能否在大小、位置、定义线索(亮度/相对运动/纹理)与部分遮挡等视网膜输入改变下保持稳定。研究表明:神经元的放电幅度会随刺激条件改变,但其形状偏好顺序保持稳定,提示形状不变性主要依托神经元群体的相对活动模式进行编码。
研究背景
不变性(invariance)问题的出发点是:视觉系统能够在视网膜投影发生显著变化时稳定识别同一物体。理论上,系统既可能为每种尺寸与位置分别存储独立模板,也可能构建跨变换维度的统一表征;后者在表征效率上更具合理性。单细胞电生理研究显示:Hubel 与 Wiesel(1962)在复杂细胞中观察到了初级的位置不变性;从 V1、V2、V4 至 IT 皮层,感受野范围逐步扩大(Gross 等 1972 报告 IT 感受野平均达约 409 平方度,常覆盖同侧视野)。后续实验表明,IT 神经元对感受野内位置变化的形状选择性大体稳定,对尺寸变化也表现出相应的调谐保持(Schwartz 等 1983;Komatsu 等 1992;Sary 等 1993;Lueschow 等 1994;Tovee 等 1994;Ito 等 1995;Logothetis 等 1995)。
位置与尺寸仅是不变性维度的部分特征。在自然环境中,同一物体可依托亮度差、深度差、颜色差、纹理差或相对运动等多种线索与背景分离(线索不变性);部分遮挡同样属于自然视觉中普遍存在的干扰条件(Kovacs 等 1995;Schiller 1995)。本章总结的研究着重对上述两类条件进行单细胞检验:一是使同一组几何形状分别由亮度、相对运动或纹理差定义,测试神经元形状选择性是否跨线索保持;二是使形状被随机方块图案部分遮挡,测试其形状选择性与调谐偏好的保留程度。
研究思路
实验设计使同一组 8 个几何形状分别依托不同视觉线索呈现:亮度差(LUM)、图形内外点阵反向运动(KIN)以及点尺寸纹理差(TEX)。在 KIN 与 TEX 条件下,图形与背景的平均亮度保持严格相等,确保神经反应特异于运动或纹理信息。遮挡实验使用亮度定义的形状轮廓,在半数试次中叠加遮挡率约为 50% 的不透明方块图案。分析上区分放电强度(总体响应水平)与调谐偏好(对不同形状的相对响应排序)。为整合单细胞层面的响应差异,研究采用“排序归一化”群体曲线分析:先依据各神经元在亮度基准条件下的响应强度对 8 个形状进行排序,再观察运动、纹理或遮挡条件下该排序上的归一化响应曲线是否保持单调递减;若形状偏好跨线索或跨遮挡保持一致,归一化曲线应与基准曲线高度重合。
方法
实验记录两只雄性恒河猴(Macaca mulatta),记录部位经组织学确认位于 TE 后部与中部(部分延伸至 TEO 前部,依据 Iwai 与 Mishkin 1968 分区),集中在颞上沟下岸邻近外侧面处及 IT 外侧部。实验采用清醒猴细胞外微电极记录,眼动位置通过巩膜搜索线圈监测。视觉刺激通过专用图形硬件驱动的显示器呈现(帧率 50 Hz):8 个等面积(约 10 平方度)几何形状呈现在随机点纹理背景上(点密度 50%,点尺寸 3 或 5 弧分);运动定义刺激中,图形内外点阵以 3 度/秒的速度反向运动。遮挡实验中,随机分布的不透明方块(边长 0.6 度,覆盖率 50%,亮度与形状轮廓相同)铺满全屏,相对形状的位置逐试随机,并在注视开始时呈现(早于形状 700 ms)。猴子完成注视维持任务,固视 700 或 1000 ms 后呈现形状 300 或 500 ms;仅分析固视成功试次,每种条件至少包含 10 个完成试次。净放电率通过刺激期放电扣除刺激前基线计算,采用单因素或双因素方差分析(ANOVA)评估刺激响应与形状选择性。
主要结果
- 尺寸不变性表现为幅度改变而偏好排序保持稳定(图 2)。 神经元对大尺寸图形(面积为小图形的 16 倍)的净放电率整体高于小图形,但在 8 个形状上的响应轮廓在两种尺寸间保持平行,即相对形状偏好对 16 倍面积变化具有容忍度。
- 线索汇聚普遍存在,但选择性分布表现出不对称性(图 3、4)。 在记录的 372 个对至少一种形状有响应的 IT 神经元中,65%(n=261)对亮度、运动及纹理三种线索定义的形状均有响应;其中 28% 对三种线索均表现出统计学显著的形状选择性。卡方检验显示跨线索选择性显著相关(p < 0.01),但存在不对称性:在对运动定义形状具选择性的细胞中,80% 亦对亮度形状具选择性;而在亮度选择性细胞中,对运动形状具选择性的比例为 63%。
- 线索不变性在群体偏好排序上得到保留(图 6)。 绝对响应强度依赖定义线索:亮度定义形状诱发的放电率通常高于同一形状的运动或纹理版本(中位比值分别为 1.4 与 1.5)。但依据亮度条件下的形状偏好排序后,运动与纹理条件下的归一化平均响应曲线与亮度条件呈现高度一致的单调下降趋势。星形选择性个例细胞在不同离心度位置(4°)及不同线索下均保持一致的形状偏好(图 5)。
- 相对运动线索本身对放电具有特异性驱动作用(图 8、9)。 通过与仅含边界动态闪烁而无相对运动的同向运动对照相比,群体平均净响应在包含相对运动的条件下显著更高(配对 t 检验 p < 0.01);15 个受测的形状选择性神经元均表现出该增强效应(平均比值 2.6),排除了单纯边界闪烁伪影的解释。
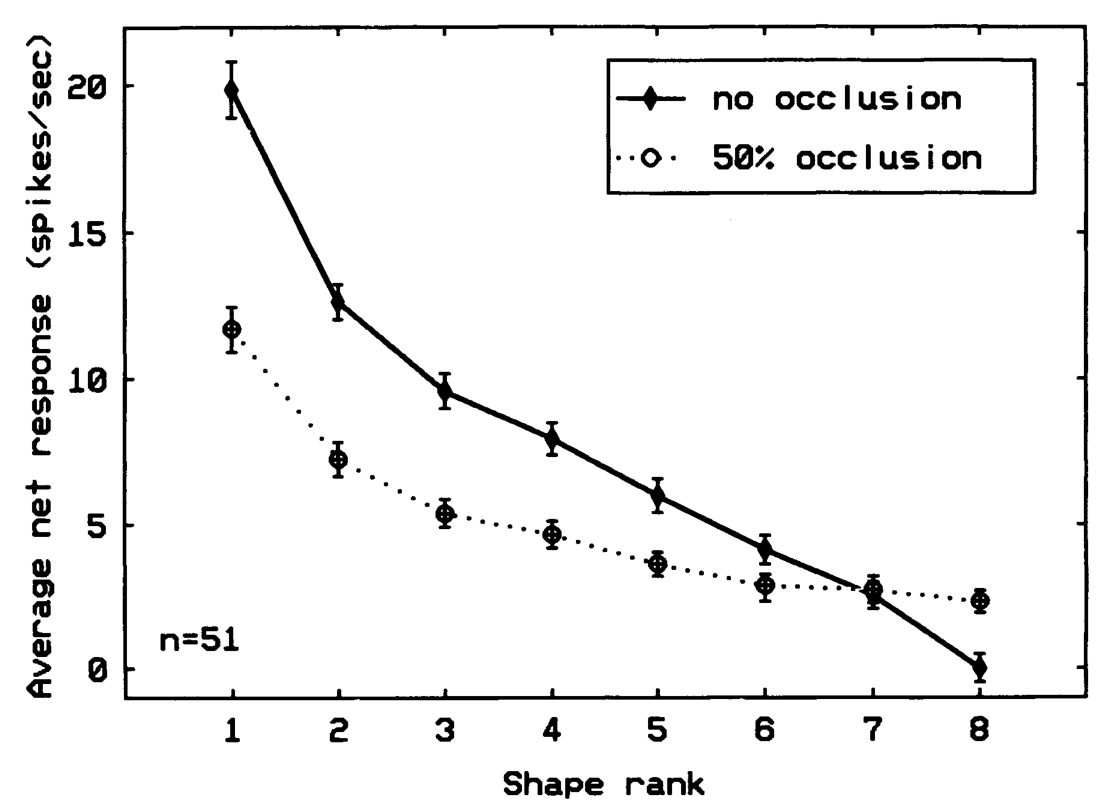
- 部分遮挡降低放电水平但不改变形状偏好(图 10–12)。 80 个受测神经元中,21% 在叠加遮挡后对形状的放电完全消失(图 10);多数细胞继续保持响应,其中 31% 对遮挡物出现呈现瞬态反应(图 11)。群体水平上,无遮挡条件的放电率平均为遮挡条件的 1.7 倍,且遮挡使反应潜伏期平均延长约 50 ms;依据无遮挡偏好排序后,遮挡条件的归一化响应曲线与无遮挡曲线形态基本一致(图 12),表明形状偏好对 50% 部分遮挡保持稳定。
图注解读
图 1 · 三种定义线索的刺激示意
原文图注:Fig. 1. Illustration of the stimuli used in the cue-invariance experiment. A triangle is defined by a difference in luminance between figure and background (LUM), by relative motion of the dots (up versus down) of the figure and background (KIN), or by a difference in dot size (texture) between figure and background (TEX). For the middle figure (KIN), the arrows show the direction of motion of the dots and the hatching indicates the virtual borders, which are rendered visible solely by virtue of the motion. The direction of motion (up or down) was randomized over trials.
展示了同一三角形刺激的三种物理定义形式:亮度差(LUM)、图形与背景点阵反向运动(KIN)以及点尺寸纹理差(TEX)。在 KIN 条件中,箭头标示点阵运动方向,斜线标示由相对运动定义的虚拟轮廓边界;运动方向逐试随机,避免神经元将单一运动方向与特定形状混淆。KIN 与 TEX 条件下图形与背景的平均亮度保持一致。
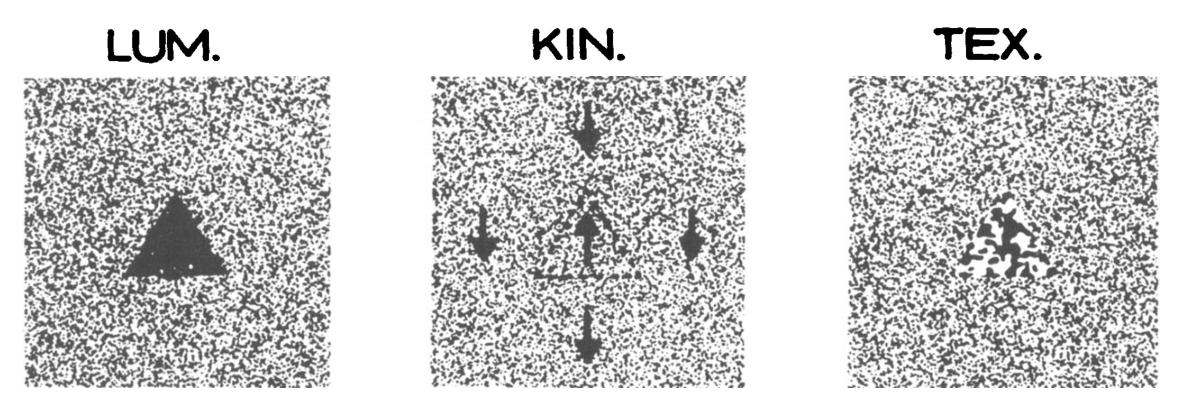
图 2 · 尺寸不变性的单细胞示例
原文图注:Fig. 2. Response of an IT neuron to eight different shapes of two different sizes. The figures were eight luminance-defined shapes and the area of the large figures was 16 times larger than the area of the small figures. The net average firing rate was higher for the large than for the small figures but the shape selectivity was invariant to the change in size.
横轴为 8 个亮度定义的几何形状(I–VIII),纵轴为净平均放电率(0–80 spikes/s)。实线与虚线分别对应大图形(面积为 16 倍)与小图形。大图形曲线整体放电率较高,但两条曲线随形状变化的起伏形态保持平行,说明最适形状调谐并未随尺寸改变。
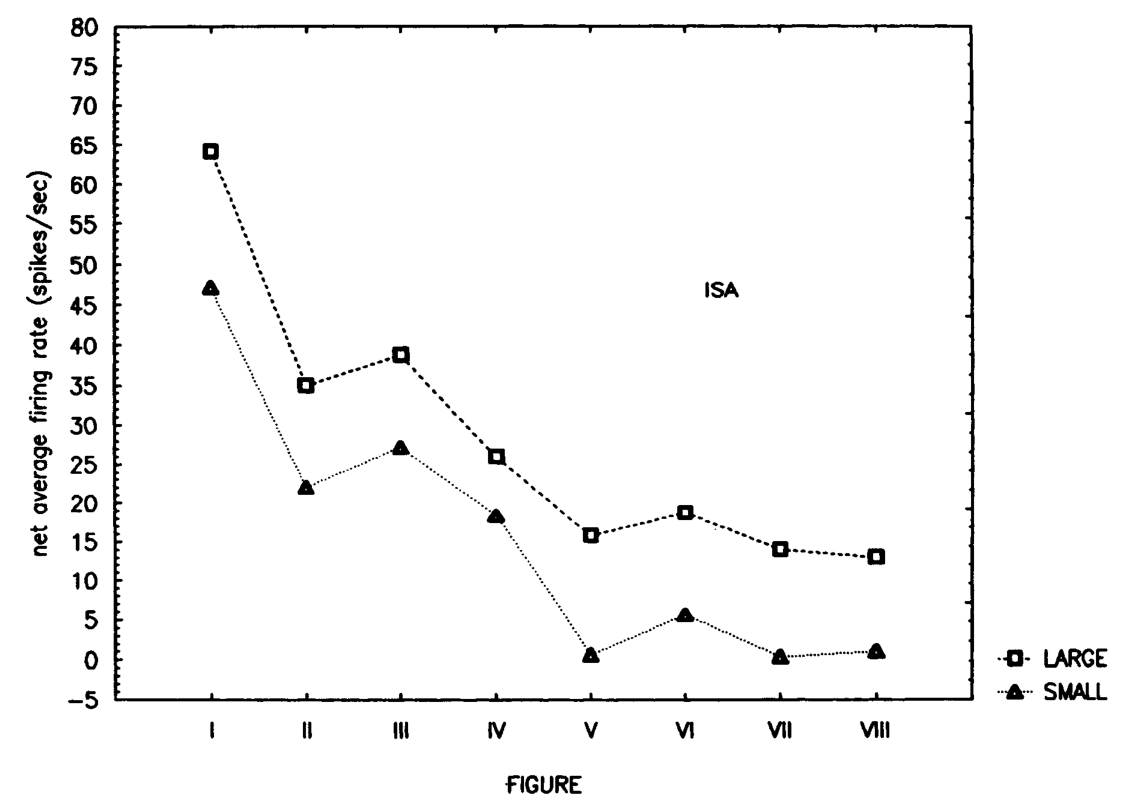
图 4 · 跨线索选择性的有无相关但不重合
原文图注:Fig. 4. Shape selectivity compared for IT neurons responding both to luminance and motion cues (Top) and for neurons responding to luminance and texture cues (Bottom). The presence of shape selectivity (SEL) was determined for each responding neuron and visual cue by Analysis of Variance.
上部面板比较同时响应亮度与运动线索的神经元,下部面板比较亮度与纹理线索;根据方差分析对各类线索的形状选择性分类制表。卡方检验显示选择性存在显著相关(p < 0.01);但亮度/运动组合中 32% 的神经元仅对单一线索具选择性,且表现出不对称性(运动选择性神经元中 80% 对亮度具选择性,反向仅为 63%)。该图支持结果第 2 条。
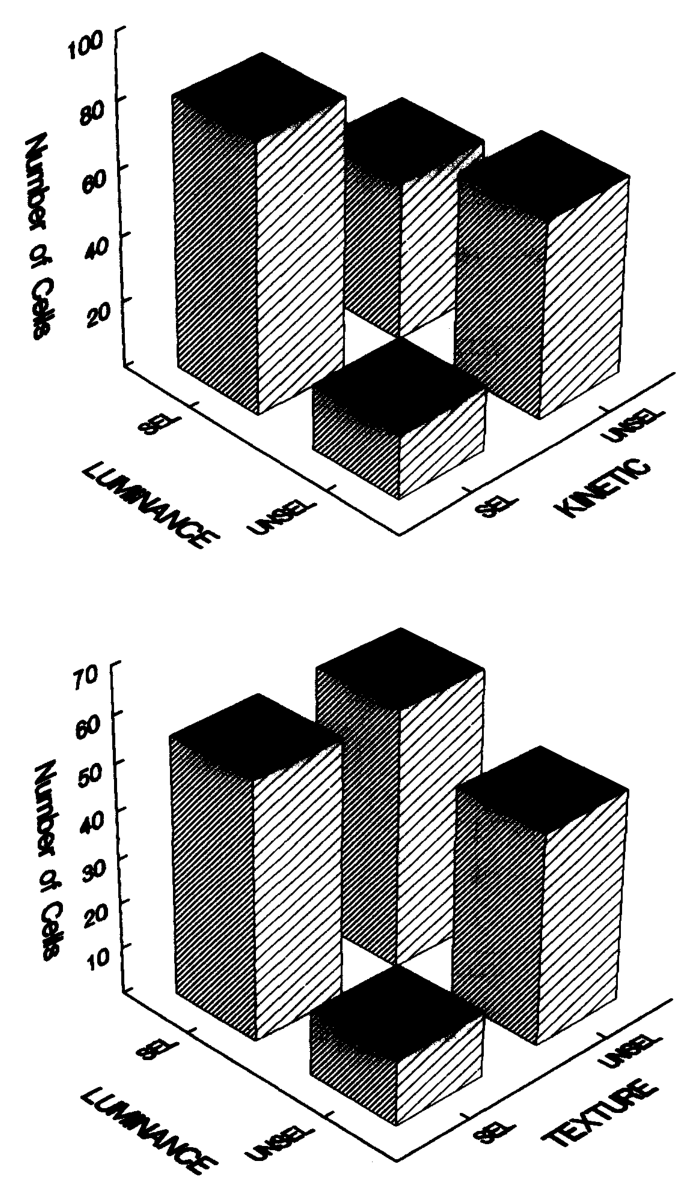
图 6 · 按亮度偏好排序后的归一化响应曲线(LUM vs KIN)
原文图注:Fig. 6. The average normalised response plotted as a function of shape rank for those neurons showing shape selectivity for the luminance and motion cue. The figures were ranked according to their response to the luminance-defined shapes (LUM). The same ranking was applied for the motion-defined (KIN) figures.
横轴为依据亮度条件响应排定的形状名次(1 为最优,8 为最弱),纵轴为归一化平均响应。两条曲线均呈现平行的单调下降趋势,表明按亮度条件确立的形状偏好排序同样能够预测运动条件下的响应分布,支持结果第 3 条。
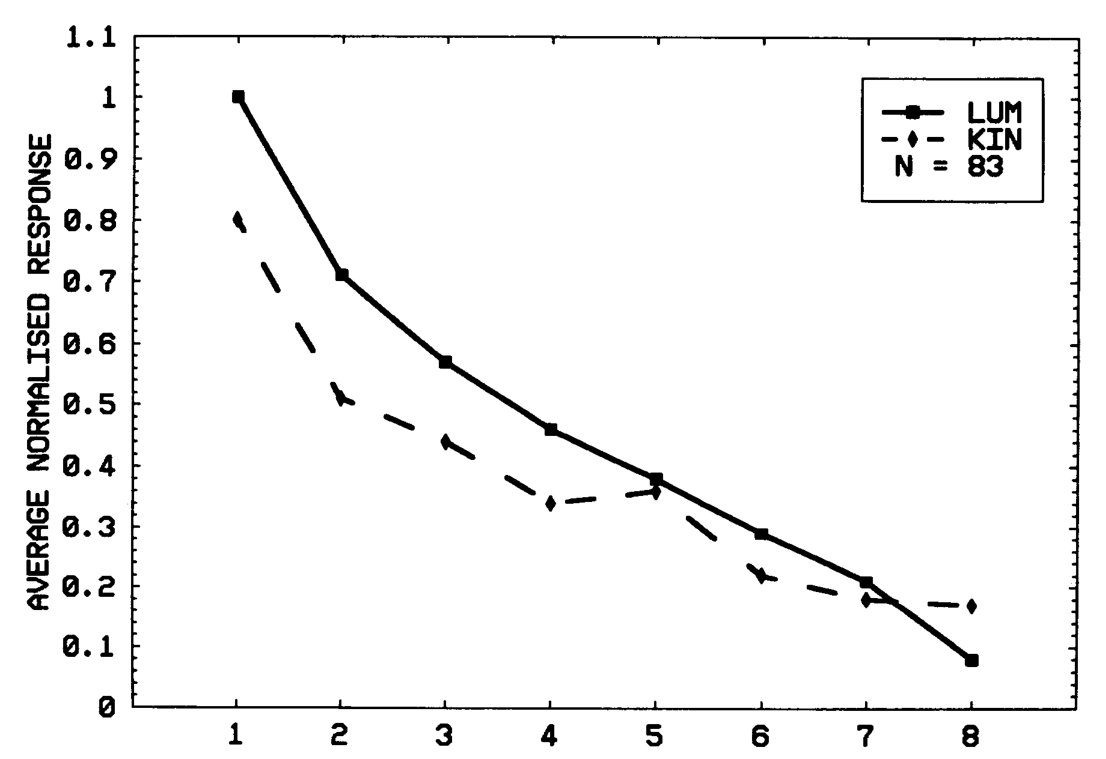
图 8 · 相对运动显示与其同向运动对照
原文图注:Fig. 8. Illustration of the relative motion display (left) and control display (right) used to determine the contribution of the relative motion cue to the neuronal responses. The control display is identical to the relative motion display except that in the former display the motion of the dots in figure and background have the same direction (no relative motion). In the case of the illustrated square, its horizontal borders will be visible as flickering dots due to the presence of the dynamic occlusion cue (appearance and disappearance of the dots at that virtual border). Other conventions as for Fig. 1.
左侧为图形与背景点阵反向运动的标准相对运动刺激,右侧为点阵同向运动的对照刺激(消除相对运动,仅保留边界处的点阵动态生灭闪烁)。该设计用于隔离相对运动本身的神经激活效应,为图 9 提供对照基准。
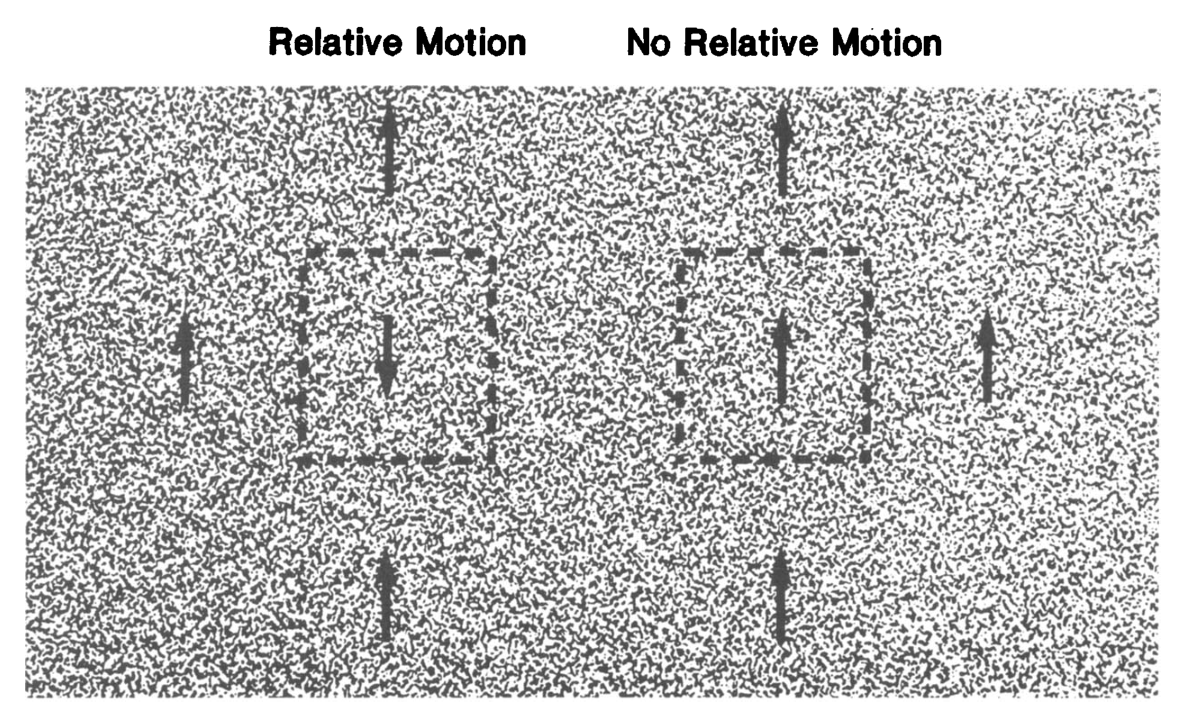
图 9 · 相对运动贡献指数的分布
原文图注:Fig. 9. Distribution of the difference in response to the relative motion and control display. The difference was expressed as an index defined by subtracting the response to the control display (No Re1 M) from the response to the relative motion display (Re1 MI and dividing the result by the sum of both responses. Hatched bars indicate shape seltctive neurons.
直方图展示相对运动贡献指数的分布:指数定义为(相对运动响应 − 同向对照响应)/(两者之和),正值代表相对运动诱发更强放电。群体分布整体向正值偏移(配对 t 检验 p < 0.01),斜线柱标出的形状选择性神经元指数全部为正(平均比值 2.6),支持结果第 4 条。
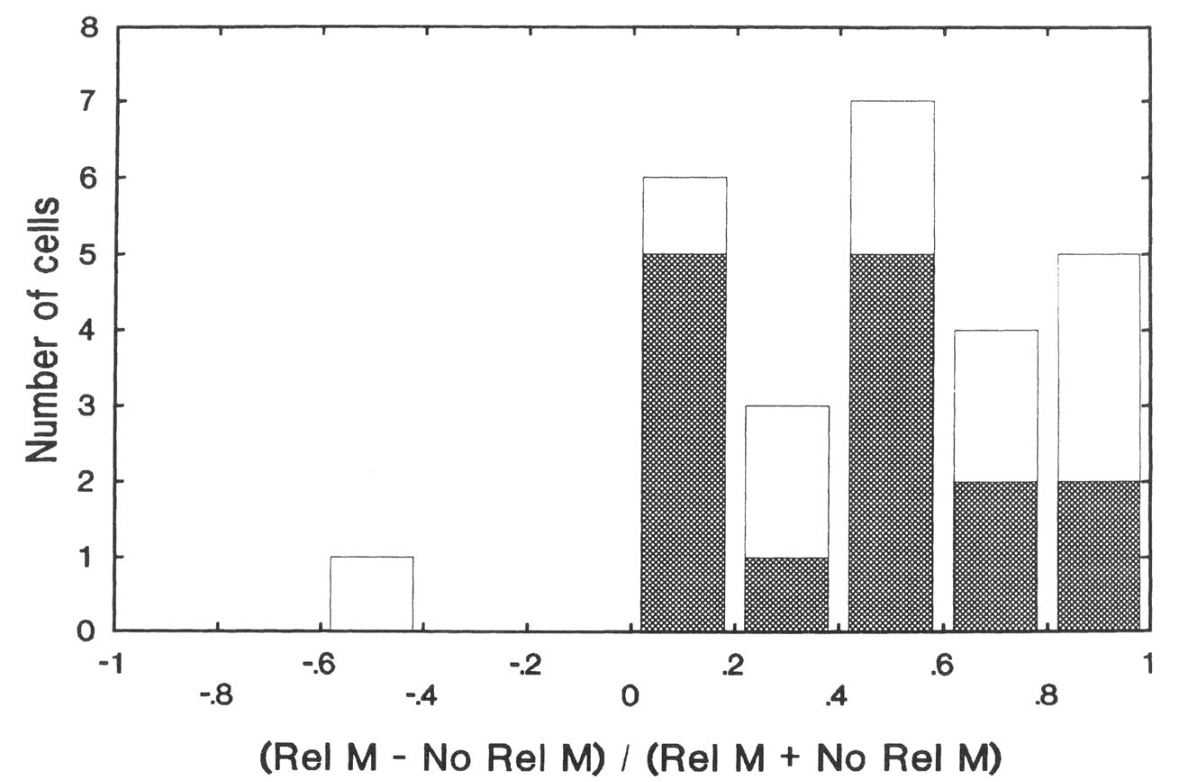
图 10 · 遮挡下"失明"的神经元
原文图注:Fig. 10. Responses of an IT neuron with and without partial occlusion of the shapes. The peristimulus time histograms of the spikes for each of the eight shape outlines shown above the histograms in the no-occlusion (1st and 3th row) and occlusion condition (2nd and 4th row). Presentation of the shape is indicated by the second vertical bar in each histogram. This neuron failed to respond when the shapes were partially occluded.
展示典型单细胞刺激期时间直方图:第 1、3 行为无遮挡条件,第 2、4 行为 50% 遮挡条件;第一条垂直线标示注视点出现(遮挡图案同时呈现),第二条标示形状呈现。该神经元在无遮挡时对形状产生显著放电,但在部分遮挡下形状诱发反应完全消失,代表了受测神经元中 21% 的受抑制亚群。
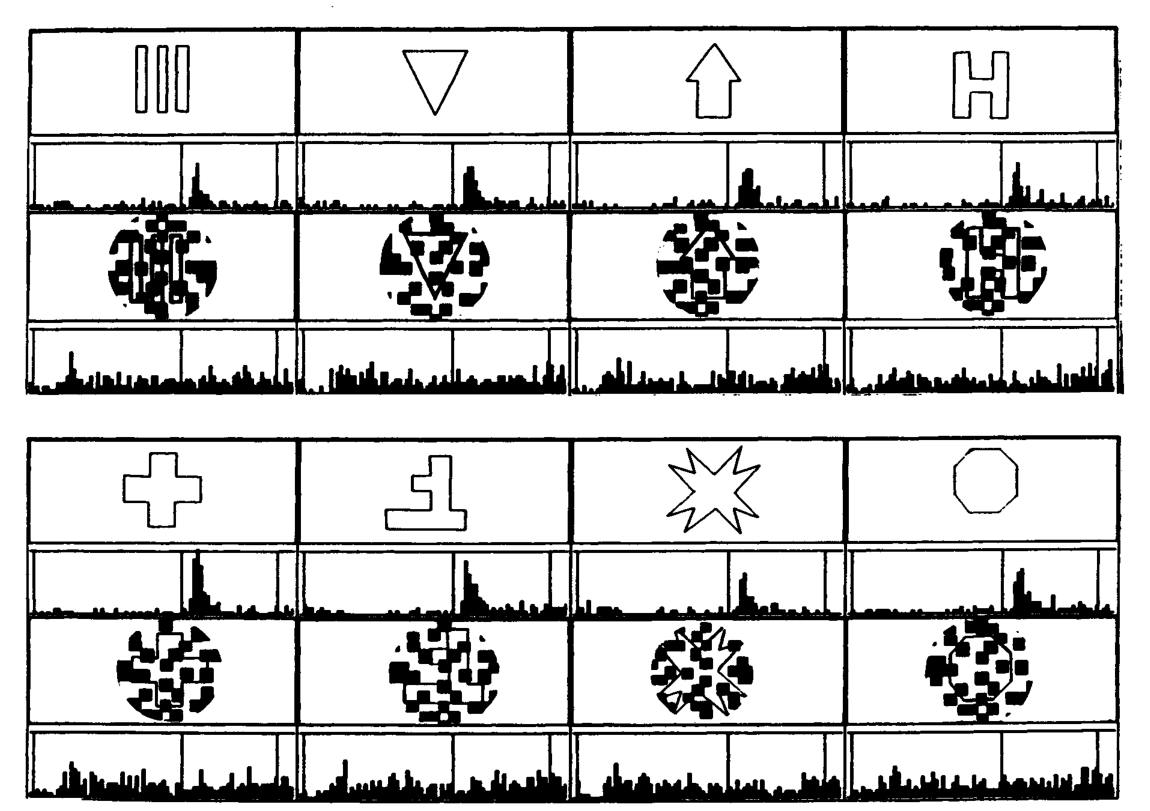
图 11 · 遮挡下保持选择性的神经元
原文图注:Fig. 11. Example of an IT neuron showing similar shape selectivity with and without partial occlusion. Note that this neuron responded transiently to the onset of the occluder, which was presented when the monkey started to fixate (indicated by the first vertical line in each histogram). Conventions are the same as for Fig. 10.
排布与图 10 相同。该神经元对注视开始时的遮挡图案出现产生瞬态反应,随后在无遮挡与遮挡条件下放电幅度虽有差异,但对 8 个形状的选择性偏好分布保持一致,支持遮挡下调谐特征的保留。
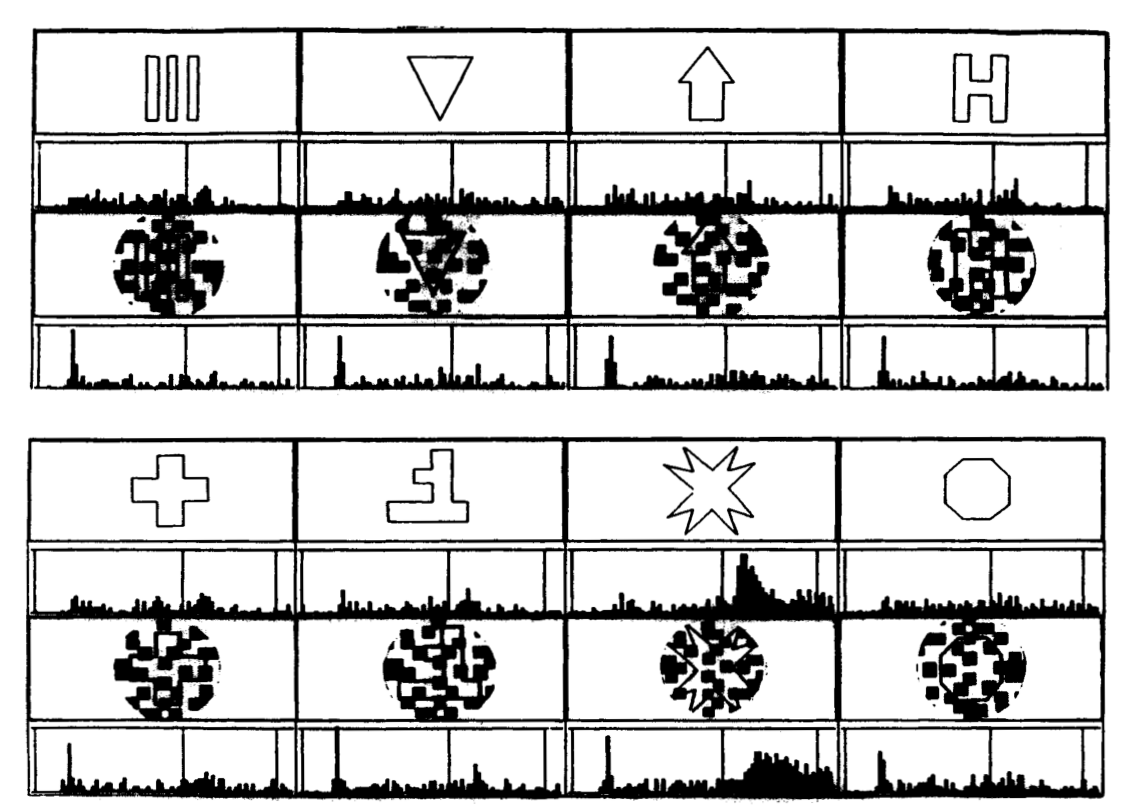
图 12 · 遮挡与无遮挡的群体偏好曲线
原文图注:Fig. 12. Average net response and standard errom as a function of shape rank with and without partial shape occlusion. The shape rank was determined using the shape selective responses in the no-occlusion condition only and the same ranking was applied to average the responses in the occlusion condition.
横轴为按无遮挡条件排定的形状名次,纵轴为平均净放电率。两条曲线分别对应无遮挡与 50% 遮挡条件。遮挡条件下群体放电水平整体压低(无遮挡平均为遮挡的 1.7 倍),潜伏期延长约 50 ms,但两曲线沿形状排序的下降斜率高度吻合,支持主要结果第 5 条。
讨论
作者将实验发现总结为:单个 IT 神经元的放电率受刺激位置、尺寸、线索显著性及遮挡状态调制,但其相对形状偏好在这些变化下保持稳定。作者将其类比于初级视皮层中对比度与刺激长度对朝向调谐的调制规律(Sclar & Freeman 1982;Henry 等 1973)。基于这一特性,作者提出物体形状不变性依托神经群体相对放电模式进行表征:只要对特定形状最优调谐的神经元亚群在各类变换条件下均保持相对最高的活动水平,下游系统即可据此实现稳定解码;而单细胞绝对放电水平的变化则可用于编码物体的非形状属性(如尺寸、对比度与表面特征)。针对既往文献(如 Ito 等 1995),作者指出微弱的偏好偏移虽偶有记录,但总体相似性占主导;针对前内侧颞叶在绝对放电率上亦具不变性的假说(Miyashita & Chang 1988),作者结合 Lueschow 等(1994)的测量指出绝对不变性在皮层中极少见。关于线索不变性的机制来源,作者推测其可能继承自 V2 等早期视皮层中已存在的跨线索边界神经元(错觉轮廓与运动边界)。对于遮挡实验,作者指出了刺激时序的局限(遮挡物提前 700 ms 出现有助于图形-背景分离),并指出单细胞记录尚未检出与知觉填充(amodal completion)直接对应的神经表征,该功能可能依赖更高级脑区或反馈调节。
一句话总结
本研究表明,猕猴下颞叶神经元的绝对放电率随尺寸、定义线索与部分遮挡发生显著变化,但其形状偏好调谐保持高度稳定,支持感觉皮层依托群体神经元的相对活动模式实现物体形状的不变性编码。