这篇发表于 Annual Review of Neuroscience 的综述系统梳理了灵长类下颞叶(inferior temporal cortex,IT)在视觉感知与长时记忆交互中的功能定位。作者结合实验室在配对联想学习(pair-association learning)中的电生理证据,梳理了从皮质损毁、单细胞特征编码到长时记忆神经表征及提取机制的脉络,探讨了高级视觉联合皮层存储物体表征的假说,并论述了时间相邻性联想作为跨视角知觉不变性与记忆巩固公共计算机制的可能性。
研究背景
下颞叶皮层在视觉系统中的关键地位最初由皮层损毁实验确立:损毁该区域会导致严重的物体识别与再认障碍;随后的单细胞记录证实其存在大量对复杂特征具有高度调谐的神经元。到 1993 年,解剖学研究已明确了从纹状皮层经纹外视区、下颞叶皮层延伸至内侧颞叶的腹侧视觉通路。在这一分级投射系统中,颜色、几何形状、表面纹理等局部属性在低级与中级视区被并行提取,而前部下颞叶皮层被视为整合上述离散特征并形成物体表征的核心节点。人类前颞叶切除导致的图形记忆损伤,以及猕猴前部 IT 损毁引发的模式再认缺损,支持了“视觉感知表征区域本身直接参与长时记忆存储”的观点。
然而,脑区损伤造成的记忆障碍并不能直接揭示记忆内容在单细胞放电水平的具体编码规则;神经元对特定视觉客体的高反应,可能仅反映刺激本身的低阶物理属性,而非后天经验的存储。研究需要区分三个相互关联的加工维度:对当前物理刺激的感觉响应、由长期经验赋予该刺激的联想表征,以及刺激物理消失后的主动内源性提取。内侧颞叶损毁引起的逆行性遗忘时间梯度表明,早期记忆编码与经巩固的长期存储依赖不同的神经通路,但长期记忆痕迹在皮层的具体物理分布尚不完全明晰。此外,由于自然物体在日常经验中往往既具备物理相似性又具备时间共现性,单凭自然图像刺激难以分离物理构型与后天联想的作用。
综述围绕人工图形刺激的联想学习实验,整合解剖连接、行为学损毁、特征调谐以及延迟期持续性放电等实验证据。通过分析严格控制呈现顺序的人工图形序列与无几何相似性的图案配对任务,检验神经元选择性是否可由时间相邻性塑造;通过考察线索刺激消失后的延迟期放电,寻找记忆主动提取的单细胞对应指标。文章建立了一套连接知觉加工与长时记忆的假说框架;需要说明的是,配对相关放电尚不能单独证明下颞叶皮层是唯一的记忆存储基质,延迟期活动的具体起源、内侧颞叶反馈信号的调控作用以及不同皮层模块间的协同机制在当时仍有待进一步实证检验。
研究思路
作者的核心逻辑在于:为了直接证明神经元放电参与了视觉长时记忆编码,必须排除自然物体本身固有的形态相关性,采用完全由实验者人为赋予的刺激关联。训练猴学习两幅几何结构无关的图形之间的配对映射,再检验 IT 神经元的刺激选择性是否反映这种习得的人工关联。若神经元对彼此不相似但配对绑定的两幅图形表现出特异性的共同偏好,则证实这种调谐特性源自后天经验。
基于上述逻辑,文章按“解剖投射与行为功能基质 → 单细胞的特征编码与知觉不变性 → 习得性长时联想记忆的细胞编码 → 延迟期记忆提取的神经动态 → 记忆巩固假说”递进论述:确立 IT 作为腹侧通路向边缘系统输出关键节点的解剖地位;检验单细胞的特征选择性及对视角、尺寸变化的不变性;通过延迟匹配样本(DMS)与配对联想(PA)任务量化经验依赖的神经表征重塑;利用线索撤除后的延迟期活动揭示主动提取机制。在此基础上,作者推测由时间相邻性驱动的联想突触机制可能同时支撑了跨视角知觉不变性的建立与长时记忆痕迹的形成。
方法
综述引述的核心实验涵盖两种标准行为学范式。第一种是视觉延迟匹配样本任务(DMS):样本与匹配刺激先后在屏幕上呈现各 0.2 秒,间隔 16 秒延迟期;刺激材料为 97 幅利用分形算法(基于 32 位随机种子)生成的彩色图案,训练过程中以固定的序列位置编号(serial position number,SPN)循环呈现;记录时分别采用受训的 97 幅旧刺激与重新生成的 97 幅全新刺激作为对照。第二种是配对联想任务(PA):为每只猴配置 24 幅计算机生成的傅里叶描述子图形并分为 12 个固定配对(图 1);每试次先呈现 1 秒线索图形,经 4 秒延迟后呈现两个选择项(目标配对项与干扰项),猴须在 1.2 秒内触碰正确目标获取奖励。
电生理数据源自清醒猕猴前颞叶皮层单细胞外记录。利用约百幅刺激测试神经元的响应分布,并评估其对图形缩放、顺时针 90° 旋转、彩色转灰度等变换的不变性。在配对联想实验中,为每个神经元计算真实配对耦合指数(CIp)与随机对照指数(CIr),以差值定义配对指数 PI,检验神经元对配对成员的线索期放电是否存在显著正相关。此外,综述汇总了麻醉猴上的系统特征还原法(Tanaka 等逐步简化刺激以测定最简激活特征的实验),以及垂直与斜向穿刺轨迹下的微电极功能构筑学测绘。
主要结果
- IT 神经元表现出高度分化的复杂特征选择性:Tanaka 等的刺激简化研究显示,前部 IT 中约 53% 的细胞需要比基础条形或色块更复杂的特征组合才能达到最大放电,仅 12% 可被简单几何基元最大激活;最优特征包括星形、T 形结构以及特定形状与颜色、纹理的复合构型,支持了 IT 神经元编码高阶特征组合的假说。
- 神经元响应展现出显著的几何变换不变性:在配对联想任务的分形刺激下,前部下颞回多数神经元在样本图形经历尺寸缩放、顺时针旋转 90° 以及彩色转黑白等变换时,仍保持稳定的相对选择性与绝对放电幅度,支持前部 IT 参与构建物体抽象视觉原型的观点。
- 皮层功能构筑呈现柱状模块化排列:在同一微电极上(间距约 100 μm 以内)记录到的邻近神经元具有高度相关的刺激选择性;沿垂直于皮层表面的穿刺轨迹,在 0.6–1.4 mm 深度范围内可连续记录到调谐特性相近的神经元;而 45° 斜向穿刺记录到的相近调谐范围仅为 0.2–0.5 mm,且穿刺轨迹中可见被 0.4–1.0 mm 间隙隔开的离散功能集群,表明前部 IT 内部存在由功能相近神经元聚集构成的模块化微柱。
- IT 神经元放电表征习得的人工刺激关联:在固定序列的 DMS 任务中,神经元对受训刺激的高反应倾向于在序列位置(SPN)上相邻聚集,而新刺激未见此现象,表明选择性受到刺激呈现时间相邻性的修饰;在配对联想任务中,配对指数 PI 的分布表明无几何相似性的配对图形在线索期诱发的放电具有显著正相关,证实存在特异性表征人工关联的“配对编码神经元”(pair-coding neuron),且此类神经元在皮层呈局部聚集分布。
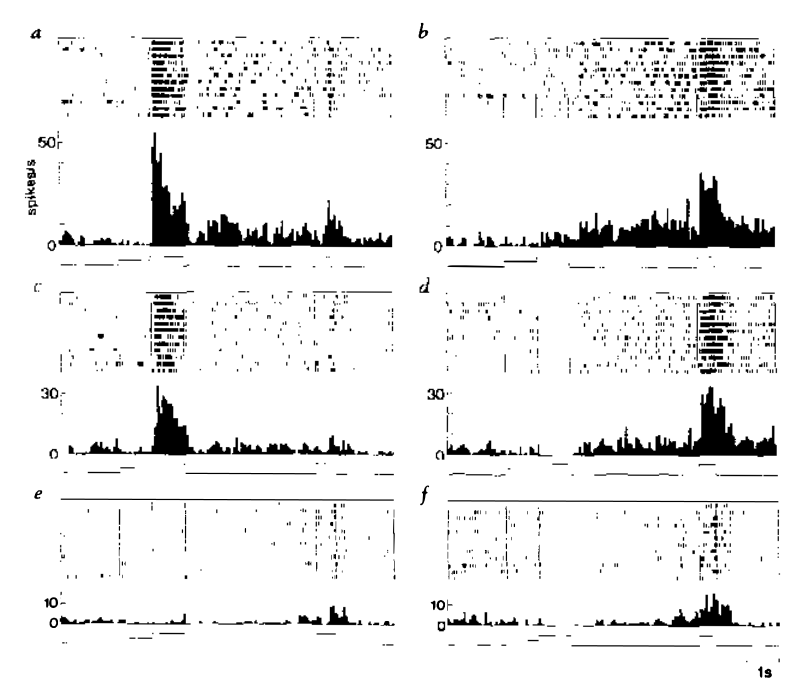
- 记录到反映记忆主动检索的“配对提取神经元”(pair-recall neuron):当呈现线索刺激为其偏好图形的配对伙伴时,该神经元在线索撤除后的延迟期内表现出持续上升的高频放电;相反,若直接呈现其偏好图形本身作为线索,延迟期放电则受到抑制。该延迟期活动幅度显著高于单纯感觉余波,且在猴无法提前预测目标触碰物理位置的任务设定下排除了运动预备的混淆(图 2)。
图注解读
图 1 · 配对联想学习的十二对提示图形
原文图注:Twelve pairs of Fourier descriptors for stimuli in the pair-association learning task (Sakai & Miyashita 1991).
该图展示了配对联想实验中使用的 12 对傅里叶描述子图形,编号成对关联(如 2 与 2'、5 与 5' 等)。配对关系由实验完全随机指定,两图形之间不存在低阶几何形态的相似性。在行为训练中,两配对刺激从未在同一时间同屏呈现,被试只能通过任务反馈建立关联。该刺激设计为排除物理相似性干扰、单独检验经验依赖的神经表征重塑提供了实验基础,对应主要结果第 4 条。
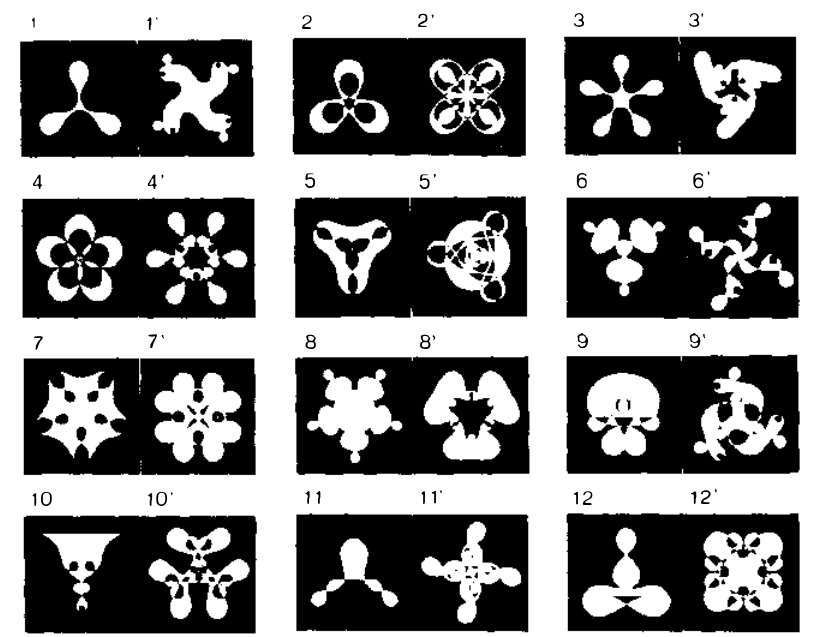
图 2 · 配对提取神经元在延迟期的图形选择性活动
原文图注:Responses of a pair recall neuron that exhibited picture-selective activity during the delay period, presumably reflecting retrieval of the paired associate. (a) Trials for cue 12 (see Figure 1) that elicited the strongest cue responses. (b) Trials for cue 12'. (c) Trials for cue 1 that resulted in the second-strongest cue response. (d) Trials for cue 1'. Note the sustained delay activity and the inhibitory cue response. (e) Trials for cue 3 that elicited no response. (f) Trials for cue 3' (Sakai & Miyashita 1991).
图示单个配对提取神经元在不同线索条件下的试次放电动态:(a) 与 (b) 为最优配对,线索 12 引起强烈的即时线索响应;当呈现其伙伴 12' 时,线索期响应较弱,但在随后的延迟期内放电持续爬升并在选择前达到峰值。(c) 与 (d) 为次优配对,线索 1' 同样诱发显著的持续延迟期放电,而呈现线索 1 时延迟期放电受到抑制;(e) 与 (f) 为非偏好对照配对,各阶段均无明显放电。这种在线索呈现偏好伙伴时特异性激活的延迟放电模式,为长时记忆在神经元网络中的主动提取提供了单细胞水平的动态证据,对应主要结果第 5 条。
讨论
综述将上述结果整合为一个理论模型:鉴于早期发育阶段视网膜突触投射的拓扑修饰高度依赖动作电位的时间同步性,作者提出基于时间相邻性的突触联想机制可能不仅介导了经验学习,同样构成了皮层建立视觉不变性表征的普适规律(例如自然界中同一物体的不同视角通常在时间上相继出现)。关于长时记忆的巩固机制,文章对比了基于持续性放电反馈(不同项目激活在时间上重合诱发突触可塑性)与基于突触效力抑制(熟悉刺激诱发更为稀疏或衰减的响应)两种假说,并指出从海马复合体经内嗅皮层向下颞叶皮层的反馈投射是驱动皮层表征长期巩固的核心通路。
作者在文中指出了若干尚未解决的科学问题与局限:关于灵长类颞叶是否存在高频同步振荡(40–60 Hz)仍存分歧,局部场电位(LFP)分析显示其峰值频率与刺激模式基本无关,微电极自相关图谱未记录到稳定的高频振荡,因而不同功能柱之间的长程协同机制尚不明确;在学习初期未能检测到明显的调谐改变,可能由于任务规则习得与具体刺激配对关联在训练初期相互混淆;此外,配对提取神经元在延迟期放电的回路驱动源头以及跨脑区网络动力学机制仍需进一步研究。
一句话总结
综述系统论证了下颞叶皮层作为视觉感知与长时记忆交汇界面的神经基础,展示了人工配对联想任务驱动单细胞表征重塑的证据,并揭示了反映记忆主动提取的延迟期神经元动态活动。