这篇论文在猕猴的内嗅皮层、鼻周皮层(perirhinal cortex)、颞叶 TG 区与下颞皮层共记录了 2705 个单神经元,系统刻画了"再认记忆相关神经元"的反应性质与解剖分布,并首次在单细胞水平证明"新近度"(recency,多久之前见过)与"熟悉度"(familiarity,是否常见)这两类信息可以被不同的神经元分开编码。它与同期对鼻沟周围皮层(rhinal cortex)的选择性损伤研究互相印证,是确认"内嗅—鼻周皮层是再认记忆核心结构"这一现代共识的关键电生理证据,也是后来熟悉度/新近度双过程模型的重要源头之一。
研究背景
再认记忆(recognition memory)包含两个成分:识别刺激本身,以及判断它是否曾经出现过。而对"曾经出现"的判断又可基于不同类型的信息:多久之前最后一次见到(新近度)、以前是否经常遇到(熟悉度)、以及在什么情境下遇到(情境线索)。判断一张脸"很面熟"与判断"昨天刚见过"是两种可以分开做的判断。这种对先前经历的判断对再认记忆和工作记忆(working memory)至关重要——与参考记忆(reference memory)类任务形成对照(Olton et al. 1979)。此前的工作(Brown et al. 1987;Riches et al. 1991b;Miller et al. 1991b)已经发现,前部与内侧下颞皮层及鼻周皮层的神经元在刺激重复时反应会衰减,且这种衰减在群体水平都能看到;单个神经元对新近未见刺激的反应显著强于对熟悉刺激或刚见过的刺激,并且这种差异在两次呈现之间隔着许多其他刺激时依然保留——也就是说这些神经元读取的是记忆中的信息,不受注意被分走的影响。
另一方面,临床与损伤研究把解剖位置推到了台前:人类内侧颞叶损伤(包括早期阿尔茨海默病)导致显著再认记忆障碍;猕猴延迟匹配/不匹配样本任务可以模拟这一缺陷,而直到 1989 年前后才用相对局限的损伤(Zola-Morgan et al. 1989;Murray 1991;Gaffan and Murray 1992)把重大缺陷定位到鼻沟周围皮层,并证明缺陷并非视觉辨别学习受损所致。电生理发现与损伤数据在此交汇,指向同一块皮层。但当时仍不清楚的是:携带记忆信号的神经元确切分布在哪些分区内、它们的"记忆跨度"有多长、它们编码的究竟是哪一种信息(新近还是熟悉),以及这些信息是否在单细胞层面已经分开。
研究思路
作者在3只恒河猴中采用串行再认任务内图片呈现与无行为反应要求的实物观看两类测试。1236个视觉反应性神经元中,141个接受两类测试;其中43个在至少一种条件下出现显著重复衰减,26个两种条件均显著,12个仅任务内显著,5个仅实物观看显著。两类测试的解剖分布模式大体平行,但单细胞结果并不完全一致。第一条线是行为任务线:让猴子执行基于 Gaffan(1974)running recognition 的串行再认记忆任务(serial recognition memory task)——它明确要求动物对"首次见"与"再次见"做出不同的反应,这样记录到的反应差异才谈得上与"再认这一认知操作"相关;第二条线是自然观看线:不给任何行为要求,只是展示三维实物或二维图片,其中混杂从未见过、昨天见过与高度熟悉的物体——无行为要求的实物观看表明,重复衰减可在无需左右触摸反应、且未针对这些实物进行行为训练的条件下出现。作者据此认为,至少部分神经元的重复衰减可能具有内源性,但不能排除动物既往串行再认训练的影响。同步删除后文将其确定为“非任务策略产物”的绝对表述。两条线交叉验证,若同一个神经元在两种情境下都表现出"重复后衰减"或"新鲜刺激反应更强",就说明该信号是刺激经历的内源性印记而非任务策略的产物。在分析维度上,作者进一步把"反应是否随重复衰减"(新近度信号)与"反应是否区分熟悉与新鲜"(熟悉度信号)拆成两个独立指标,寻找只携带其一的神经元,以检验两类信息是否分离编码;同时用间隔刺激数量与间隔时间两种标尺测量记忆跨度,并与各解剖分区的神经元比例做统计比较,把功能映射到解剖。
方法
被试为 3 只恒河猴(Macaca mulatta,体重 2.5–4.5 kg),先训练视觉辨别任务再训练串行再认任务,直至正确率超过 90%,每天可完成 200 次以上试验。串行再认任务的流程:屏幕底部中央暗红色氖灯亮 0.5 秒作为提示,随后显示器呈现复杂图片 2 秒(选自商业光盘的抽象或自然场景、有生物或无生物物体,每张图用过一次后至少隔 2 周再用);图片消失后 0.1–5 秒内向正确侧触摸屏幕得到约 0.5 ml 果汁奖励;首次呈现须向左触摸、再次呈现须向右触摸,首次与重复呈现以平衡的伪随机序列交错,中间隔着数量不等的其他试验。触摸屏、两台摄像机分别监测手部与眼动,眼位按 200 ms 间隔从瞳孔位置换算,未注视与错误试验剔除。不执行任务时,撤掉显示器与触摸屏,从孔洞向猴子展示数千件三维实物与图片(其中两套各 50 余件高频重复使其高度熟悉,两套隔日交替展示以保证有超过 24 小时未见的高度熟悉刺激可用;其余实物回收周期至少 4 周),无需任何反应,仅监测注视。记录采用固定于颅骨的钛制记录仓与可移动钨丝微电极,脉冲波形判别器分离同时记录的神经元,放电时间以毫秒精度相对于刺激起点记录。统计上,刺激起点后 1 秒(任务内)或 2 秒(实物观看)计放电数,首次与第二次呈现用配对 t 检验,熟悉与新鲜刺激用两样本 t 检验,各分区神经元比例用基于二项误差分布的广义线性模型(GLIM)分析,只报告跨猴子一致的结果;记录位点经 X 光定位、微损毁与甲酚紫染色切片重建,分区界线依 Insausti 等(1987)与 Seltzer & Pandya(1978)等的标准。
主要结果
- 反应衰减神经元真实存在且分布不均(图 1 为分区参照,图 4 为分布图):共记录 2705 个神经元,其中 1236 个(45.7%)为视觉反应性。120 个(占视觉反应性神经元的 9.7%)对久未见刺激的首次呈现反应最大,再次呈现时显著变小(配对 t 检验,P<0.05);没有任何神经元的反应在重复后变大。按观看实物统计,衰减神经元的密度在鼻周皮层加 TE1、TE2 最高(70/767,9.1%),在外侧内嗅皮层加 TG、TE3 居中(25/401,6.2%),在内侧与尾侧内嗅皮层及其余下颞皮层最低(2/68,2.9%);串行再认任务内的分布模式与之基本平行(BEM χ²=26.0,df=9,P<0.005)。相邻先后记录的神经元常同属此类(14 例,二项检验 P<0.002),提示它们可能聚集成皮层柱。
- 单神经元的记忆跨度出人意料地长(图 5):以两次呈现之间隔着的其他刺激数衡量,69%(36/52)的被测神经元跨度至少 5 个,60%(12/20)至少 20 个;对 28 个任务内神经元做衰减量对间隔数(对数)的回归,93%(26/28)的跨度在 20 个以上,其中 TE1 一个神经元的回归截距显示跨度可达 120 个间隔刺激;鼻周皮层一个神经元(14:56.16)间隔超过 0.5 小时与 30 次其他刺激后反应仍未恢复到首现水平。短跨度神经元的比例在外侧内嗅+鼻周+TG 显著低于 TE 区与上颞沟底部(14% 对 41%),但跨度≥20 的神经元在多个区都有,且存在于 TE2、TE3 中前于蝶骨后 10 mm 平面的位置——携带长时新近度信息的区域比以往认定的更向外侧延伸。
- 熟悉度信号独立存在,且可读取超过 24 小时的长期记忆(图 6、图 7):在 298 个有足够数据的视觉反应性神经元中,43 个(14.4%)对少见面孔/实物的首次呈现反应显著大于对高度熟悉刺激的首次呈现(两样本 t 检验,P<0.05),即使熟悉刺激已隔了相当长时间未见;这类神经元全部位于外侧内嗅、鼻周皮层加 TG、TE1–TE3,其余区为 0/16,且除两个外都位于蝶骨后 5 mm 平面之前;相邻记录的神经元亦出现聚集(5 例,P<0.001)。6 个被专门测试的神经元即使熟悉刺激超过 24 小时未见仍保持显著差异,其中一个 TG 区的面孔选择性神经元(14:72.8B)的记忆跨度至少 72 小时——它对新颖面孔的反应显著大于对只见过两三次、72 小时前的"少见"面孔和对超过 72 小时未见的熟悉面孔,说明它读取的是长期记忆中"见过多少次"的信息。
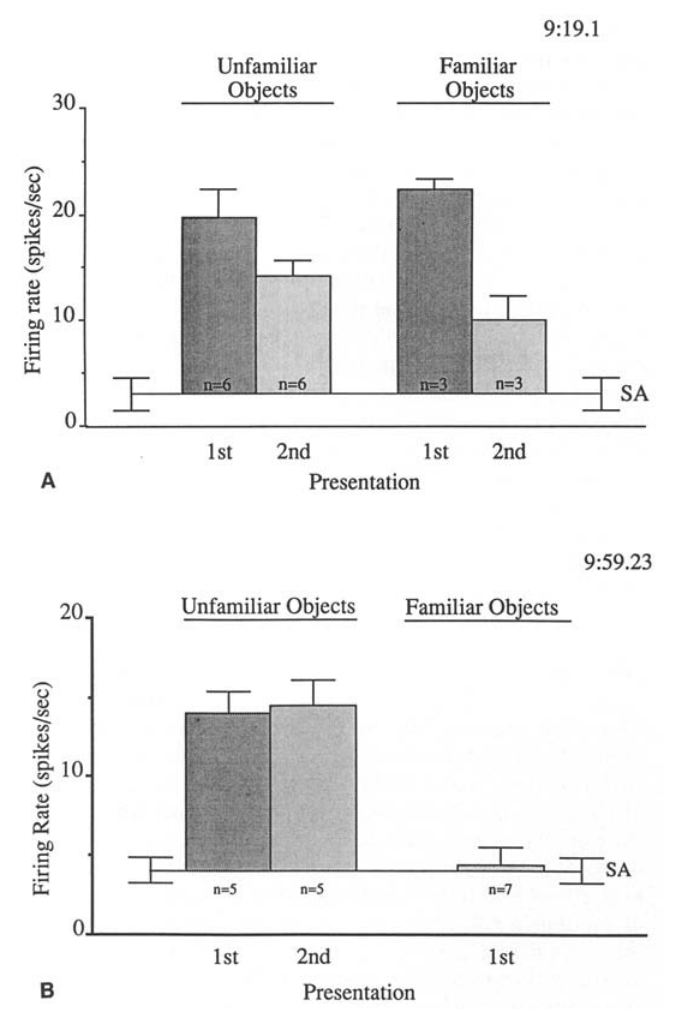
- 新近度与熟悉度在单细胞水平分离编码(图 8):36 个神经元同时携带两类信息(混合型);7 个"熟悉度神经元"(全部在 TG)对首次呈现的熟悉刺激反应更小,但反应不随重复显著衰减——只报熟悉度、不报新近度;58 个"新近度神经元"反应随重复显著衰减,但对熟悉与新鲜刺激无显著差异——只报新近度、不报熟悉度(除内侧与尾侧内嗅皮层外各区都有)。另有细节表明新近度信号的携带方式因神经元而异:有的只对熟悉刺激衰减,有的只对新鲜刺激衰减,多数两者都衰减。这是首次证明两类信息可在单个神经元层面分开表征。
- 反应衰减不能归因于外围因素(图 2、图 3 的对照面板):任务内首次与重复试验的奖励相同;视觉辨别任务中同样要求向左或向右触摸却不产生同样的活动差异;衰减出现在眼位与瞳孔直径出现显著差异之前(图 2D、图 3C、3D),且恒定注视与麻醉条件下重复衰减依然可见(Miller et al. 1991a, b);各分区衰减神经元比例不一,也不是外周或普遍唤醒水平变化所能解释的。衰减量通常约为 50%,而简单疲劳无法解释——这些神经元对其他新鲜刺激仍反应强烈。
图注解读
图 1 · 记录区的解剖分区与切面定位
原文图注:Fig. 1. A Planes of section anterior (A) or posterior (P) to the sphenoid bone, drawn on a lateral view of the monkey brain. B-D Example sections illustrating the boundaries (arrows or dashed lines) between the various anatomical areas. Sections taken 2, 4 and 6 mm posterior to sphenoid, respectively. Ec, El, Em, entorhinal area: caudal, lateral and medial parts; P, perirhinal cortex; TE1, TE2, TE3, TEa, TEm, parts of area TE. Scale bar 5 mm.
解读:这是一张纯解剖图:A 面为猴脑外侧面观,标出后续所有切面相对蝶骨(sphenoid bone)之前(A)或之后(P)的取面位置;B–D 为三个示例冠状切面,用箭头或虚线画出各解剖分区的边界,分别取自蝶骨后 2、4、6 mm 平面。读图时先在 A 面记住"蝶骨"这一参照线(文中定位坐标全部以它为准),再到 B–D 里认内嗅区的尾侧(Ec)、外侧(El)、内侧(Em)三部、鼻周皮层(P)以及 TE 各亚区(TE1、TE2、TE3、TEa、TEm)的相对位置,比例尺 5 mm。这张图本身没有数据,作用是给后文图 4、图 6 的神经元分布图提供解剖坐标系——理解"鼻周+TE1/TE2 密度最高、内侧与尾侧内嗅为零"这类结论时,对照此图才能看清这些分区在切面上的位置关系。
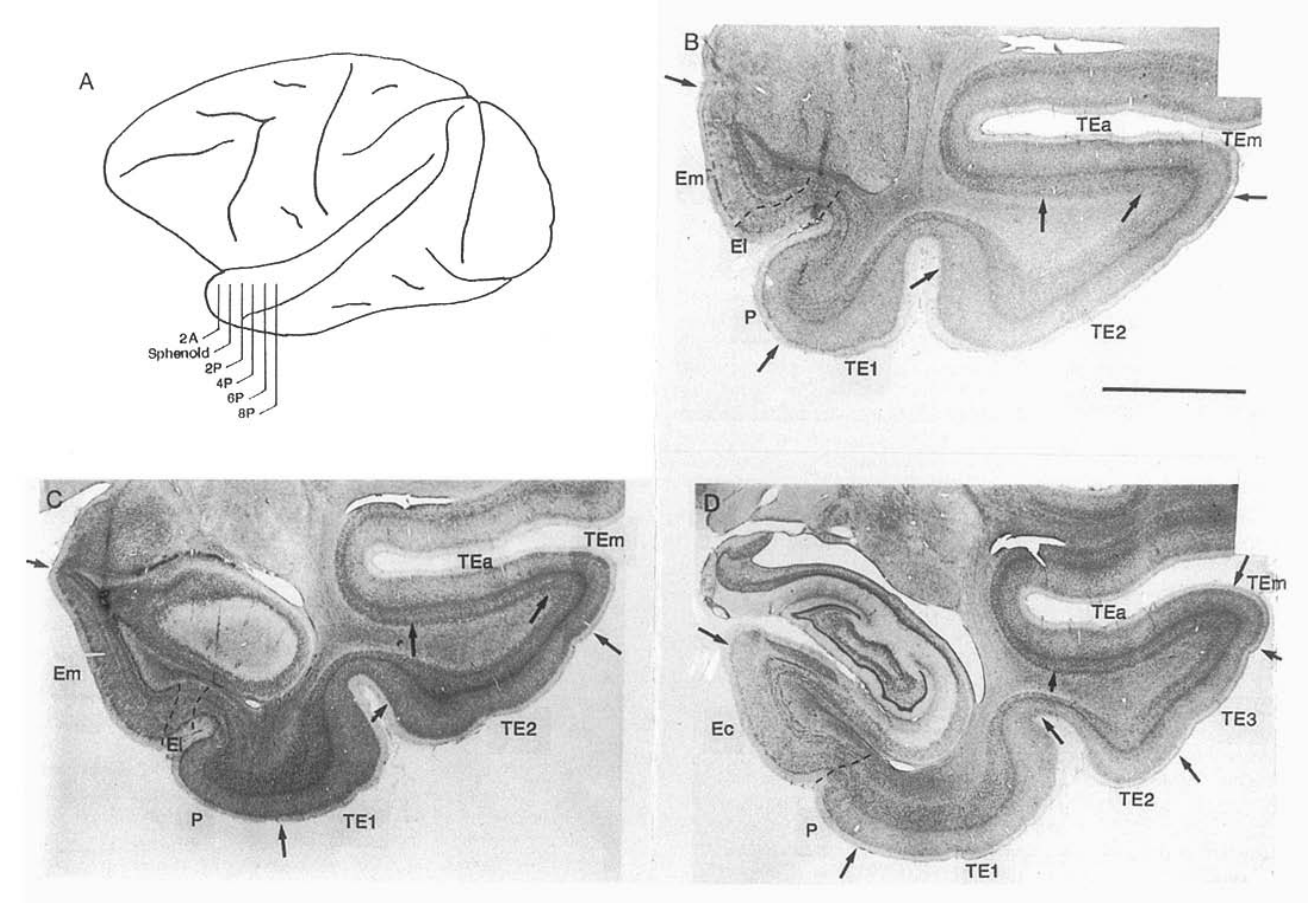
图 2 · 鼻周皮层一个神经元的重复衰减及其行为与眼动对照
原文图注:Fig. 2 A-D. Example of response decrement with stimulus repetition for a neurone (9:23.8) recorded in perirhinal cortex. A The activity during the serial recognition task. Responses to the first (upper histogram and rasters) and repeat (lower histogram and rasters) presentations of ten different, unfamiliar stimuli. In the rasters each line is a single trial with dots representing the times of occurrence of action potentials. For each trial the cue onset is at time zero and the time the monkey touched the screen is marked by a P. For first presentations the touch was to the left of the screen and for repeat presentations it was to the right. Note the significantly (P < 0.001) smaller responses on trials with the second (repeat) presentations of the stimuli. Both the latency of the response and the differential latency of responses to the first compared with the repeat presentations were 140 ms. The prestimulus firing rate of the neurone was not less for the repeat trials than for the first presentation trials; the difference in response is not attributable to a change in the background firing rate of the neurone.(后略)
解读:这张图是核心现象的标准展示。A 面上,上半部直方图与栅格是对十种不同新鲜图片首次呈现的反应,下半部是同样图片第二次呈现的反应;栅格每行一次试验、一个点一个动作电位,时间零点为提示灯亮起,P 标记猴子触摸屏幕的时刻。读法:比较上下两组直方图在刺激段的高度——重复呈现时反应显著更小(P<0.001),反应潜伏期与差异潜伏期均为 140 ms,且刺激前基线放电在两种试验间无差异,排除了背景放电变化的解释。B 面用视觉辨别任务做对照:同样要求向左/向右触摸,两种试验间活动无显著差异,说明 A 面的差异不是运动反应方向造成的。C 面转到实物观看:首次呈现的新鲜实物反应大于第二次(P<0.05),也大于首次呈现的高度熟悉实物(P<0.01,即使熟悉实物已超过 15 分钟未见)——该神经元混合携带新近度与熟悉度信息。D 面是眼位对照:熟悉与新鲜试验在刺激后 2 秒内平均眼位及其方差均无显著差异,说明熟悉度相关的活动差异不能用眼动解释。此图支撑主要结果第 1 条与第 5 条。
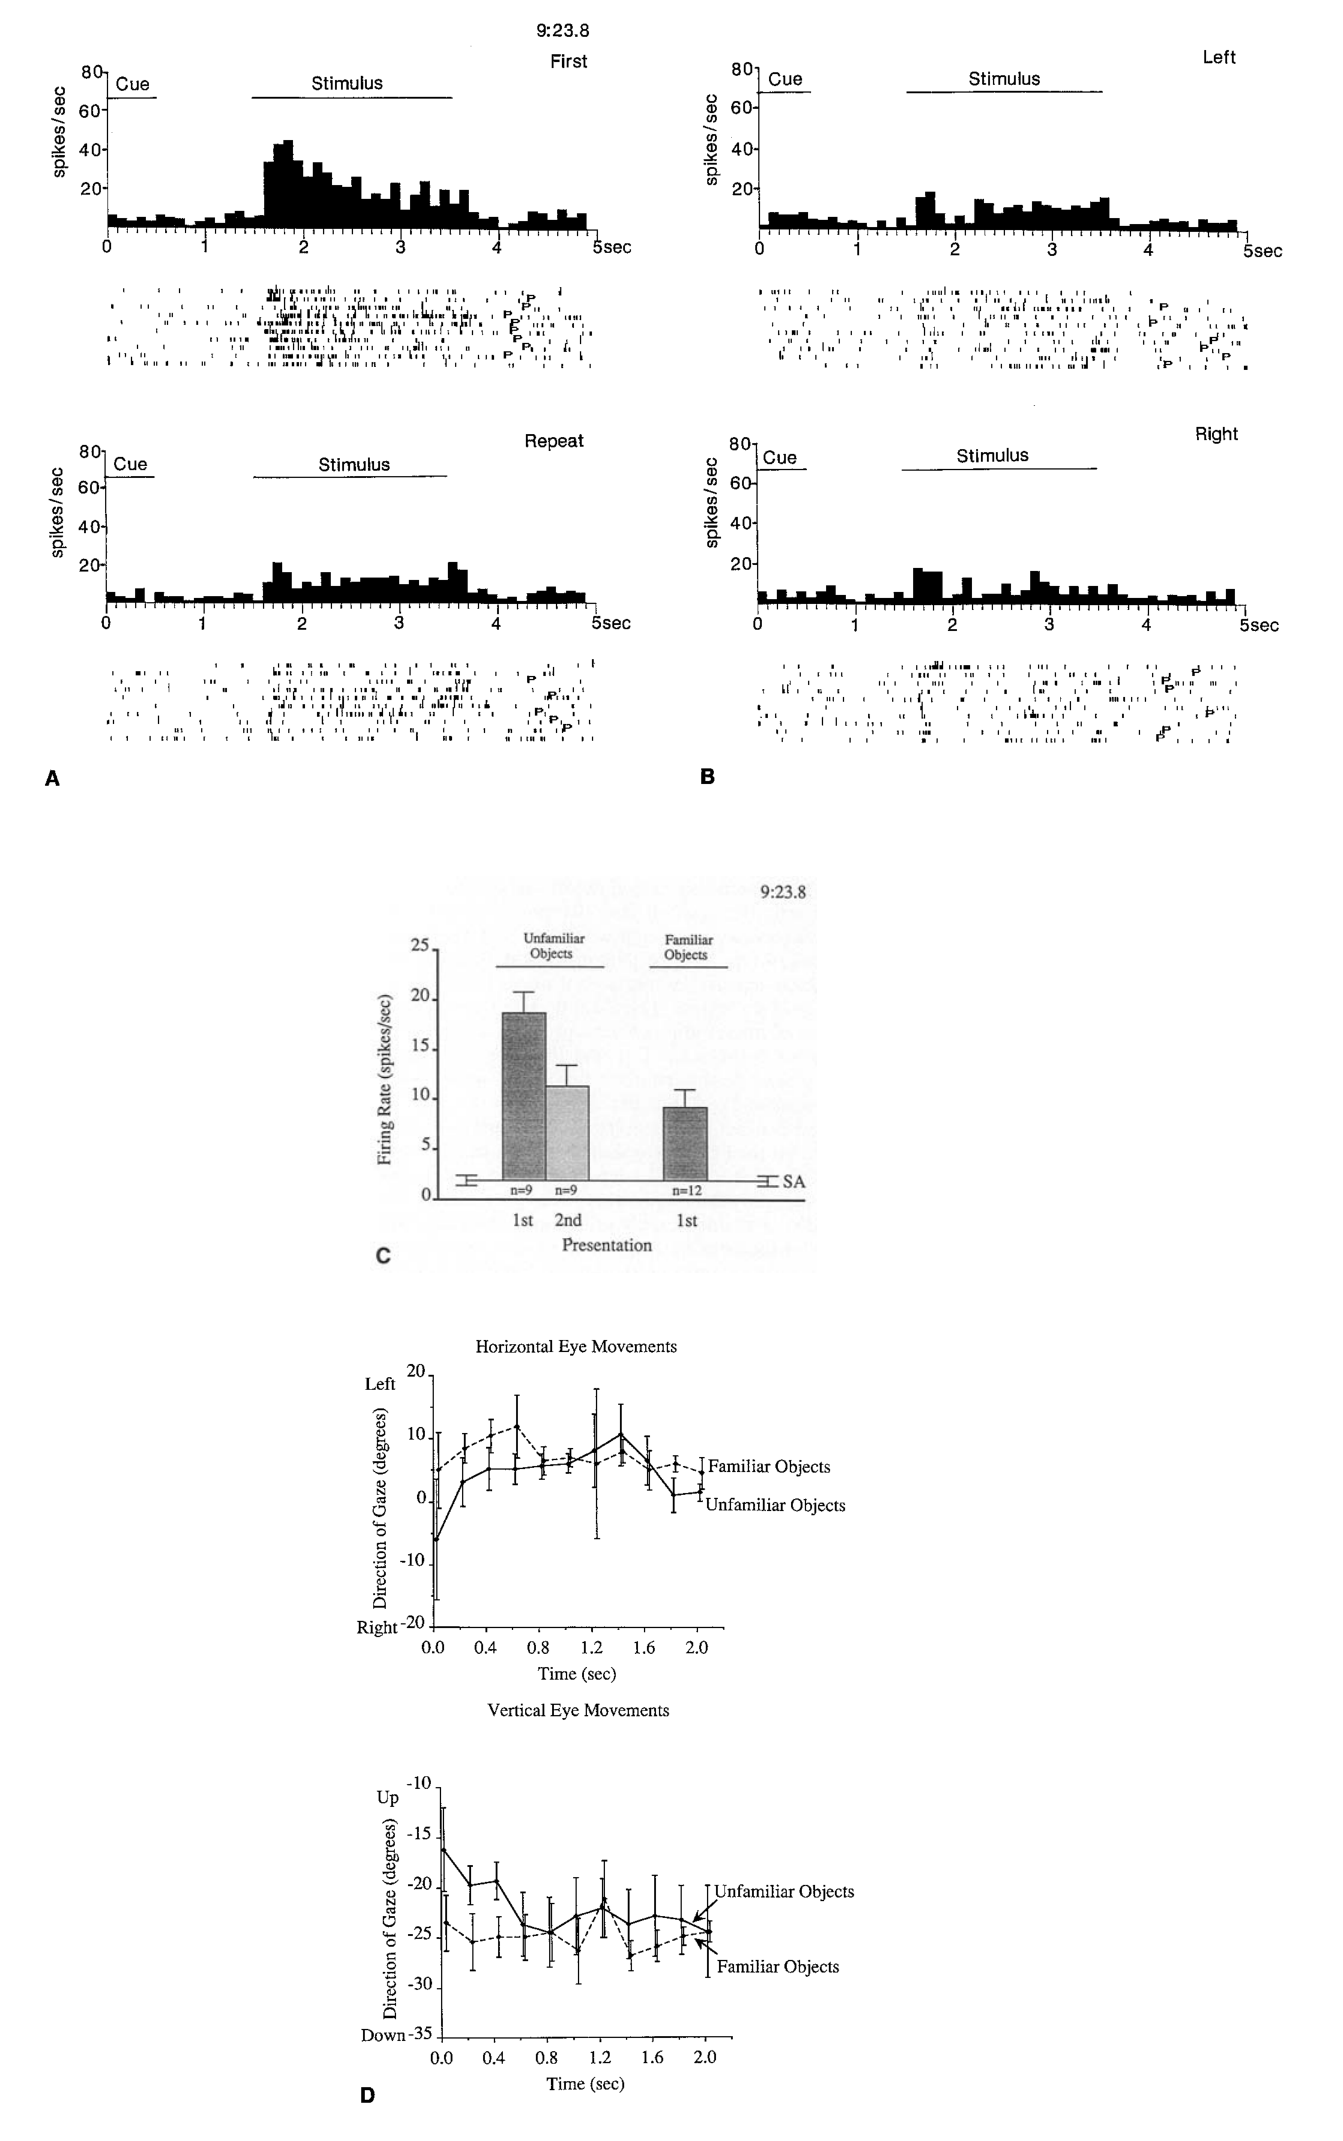
图 3 · 外侧内嗅皮层一个神经元的重复衰减、差异潜伏期与多重对照
原文图注:Fig. 3A-E. Example of response decrement with stimulus repetition for a neurone (14:51.9) recorded in lateral entorhinal cortex. A The activity during the serial recognition task. Responses to the first (upper histogram and rasters) and repeat (lower histogram and rasters) presentations of ten different unfamiliar stimuli. Note the significantly (P < 0.001) smaller responses on trials with the second (repeat) presentations of the stimuli. There was no significant regression between the size of the response decrement and the number of stimuli that intervened between the first and the repeat presentations; the memory span of this neurone was > 40 intervening stimuli. Conventions as for Fig. 2. B Differential latency of response. The cumulative number of action potentials from the stimulus onset (time zero) is plotted for the first and repeat presentations of stimuli for the same trials shown in A. The latency of visual response is approximately 150 ms; the differential latency is approximately 260 ms.(后略)
解读:结构与图 2 同套,但主角是外侧内嗅皮层神经元。A 面再次显示首次大于重复(P<0.001),且衰减幅度与两次呈现之间隔的刺激数无显著回归关系——即衰减几乎一次性完成、记忆跨度超过 40 个间隔刺激。B 面是差异潜伏期的读法:从刺激起点起累计放电数画曲线,两条曲线的分离点即"差异出现"的时刻——视觉反应潜伏期约 150 ms,而首次与重复曲线的分离(差异潜伏期)约 260 ms,说明记忆信号在感觉反应出现约 100 ms 后才生效。C、D 面分别是眼位与瞳孔直径对照:刺激后 600 ms 内首次与重复试验间均无显著差异,而此时(400 ms 起)神经活动已显著不同,排除眼动与瞳孔解释。E 面用实物做时间跨度测试:首次新鲜实物反应大于第二次(今日未见过的与今日已见过的熟悉实物分别 P<0.01、P<0.05、P<0.05),也大于首次呈现的高度熟悉实物——无论后者当天见过(P<0.001)还是超过 24 小时未见(P<0.005),说明该神经元同时携带熟悉度信息且可读取超过 24 小时的记忆。支撑主要结果第 2、3、5 条。
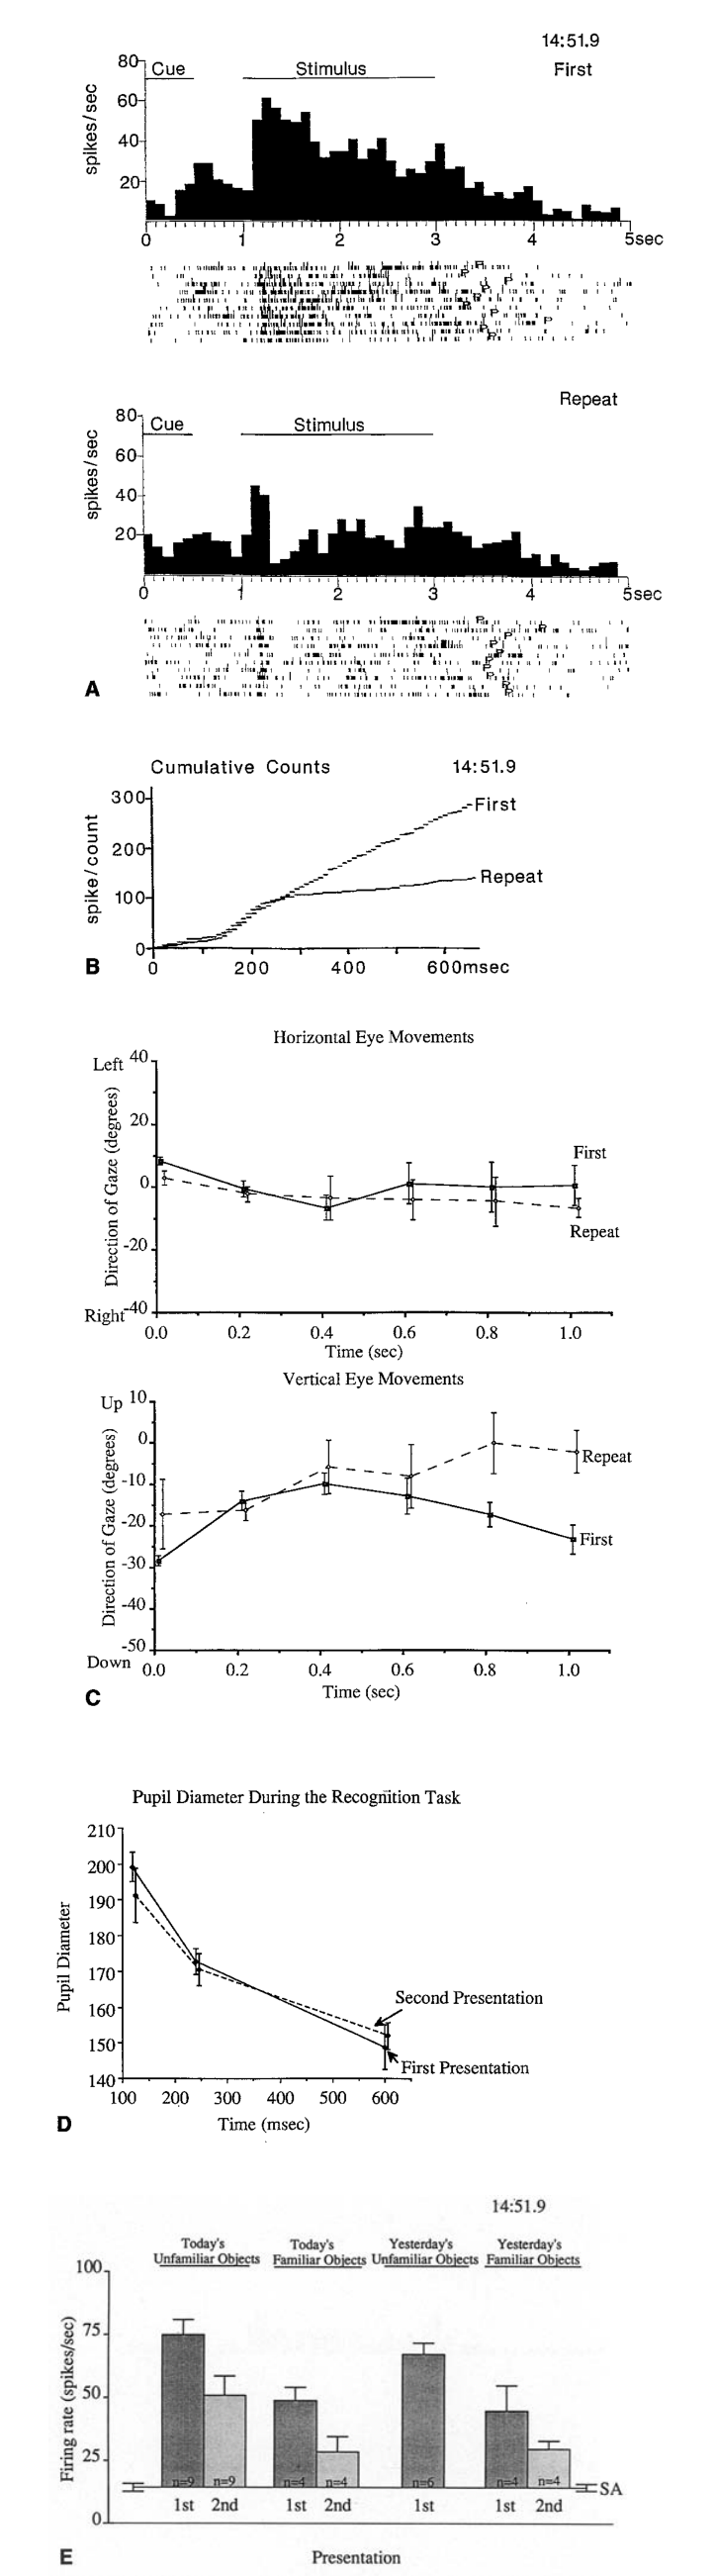
图 4 · 重复衰减神经元的解剖分布图
原文图注:Fig. 4. The locations of neurones for which responses to first presentations of stimuli were significantly greater than those to subsequent presentations. Each triangle marks a neurone with such a response in the serial recognition task; each diamond marks a neurone with such a response to the sight of objects; each dot marks a neurone with such a response both in the serial recognition task and to the sight of objects. The locations are plotted on to reconstructions of sections through the medial temporal lobe at the indicated distances anterior (A) or posterior (P) to the outline of the sphenoid bone as seen on lateral radiographs of the skull (Aggleton and Passingham 1981). The plane of the sphenoid was approximately 21 mm anterior to the interaural line. No distinction has been made between neurones recorded in the left or right hemispheres. amts, anterior medial temporal sulcus; rhs, rhinal sulcus; sts, superior temporal sulcus.
解读:这是把所有反应衰减神经元"钉"回脑切片的一张分布图:每个三角形代表一个在串行再认任务中出现衰减的神经元,每个菱形代表一个在观看实物时出现衰减的,每个圆点代表两种情境都出现的;切片按蝶骨轮廓之前(A)或之后(P)的距离排列(蝶骨平面约在耳间线前 21 mm),左右半球不区分,amts、rhs、sts 分别为前内侧颞沟、鼻沟与上颞沟。读图要点是三角/菱形/圆点在哪些沟回之间聚集:它们密集于鼻沟(rhs)附近及其外侧的鼻周皮层与内侧下颞区,而在内侧与尾侧内嗅皮层几乎空白。这张图支撑主要结果第 1 条的空间结论,也是把电生理发现与鼻沟周围皮层损伤研究对上的直观依据。
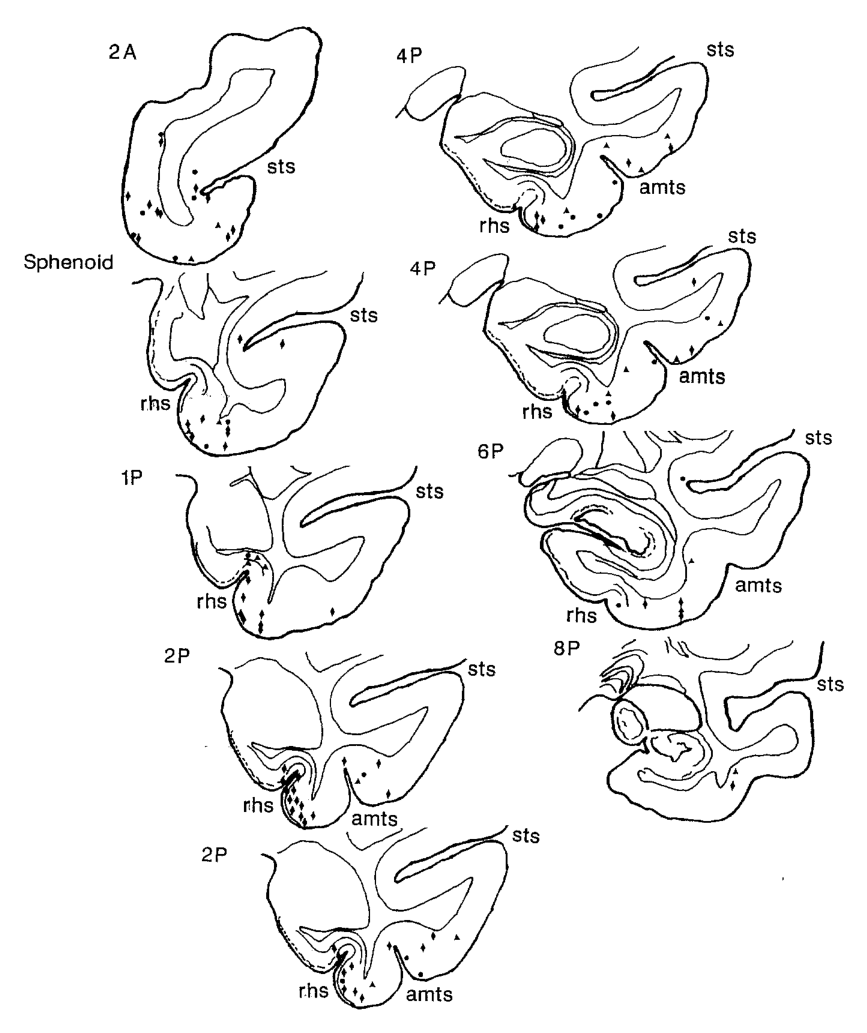
图 5 · 神经元记忆跨度的两种测量
原文图注:Fig. 5 A,B. Neuronal memory spans. A The mean ± SEM responses (ordinate) of a neurone (9:69.7) recorded in TE1 during performance of the serial recognition task to the second presentations of stimuli after differing numbers of other stimuli (abscissa, on logarithmic scale) have intervened since the original stimuli were first seen. The mean response to the first presentations of the stimuli (Response to novel) is indicated by the broken line. The magnitude of the response decrement signals information concerning the number of trials that have intervened since the stimulus was last seen. There is still a significant decrement in response even after ≥ 20 intervening stimulus presentations; thus the neuronal memory span is at least 20 intervening presentations. The intercept of the regression line would indicate a memory span of up to 120 intervening items. SA, mean ± SEM spontaneous activity.(后略)
解读:这张图回答"记忆能撑多久"。A 面:横轴是自首次呈现以来插入的其他刺激数(对数刻度),纵轴是该 TE1 神经元对第二次呈现的平均反应,虚线为对全新刺激的平均反应作参照。读法:数据点落在虚线之下越远,衰减越大;即便间隔 20 个以上刺激后衰减仍显著,而回归线的截距外推显示跨度可达 120 个间隔刺激——衰减幅度本身携带"隔了多少次才再见"的连续信息,这是新近度信号最直接的展示。B 面是另一种测量:鼻周皮层神经元(14:56.16)对 7 件不同新鲜实物反复呈现的反应随时间(横轴,自首次呈现起)作图——没有任何一件的反应恢复到首现水平,即使间隔超过 0.5 小时和 30 次其他呈现(自发放电 4.9±1.1 spikes/s 作基线)。两面板合起来支撑主要结果第 2 条:单神经元的记忆跨度远超工作记忆通常所需的长度。
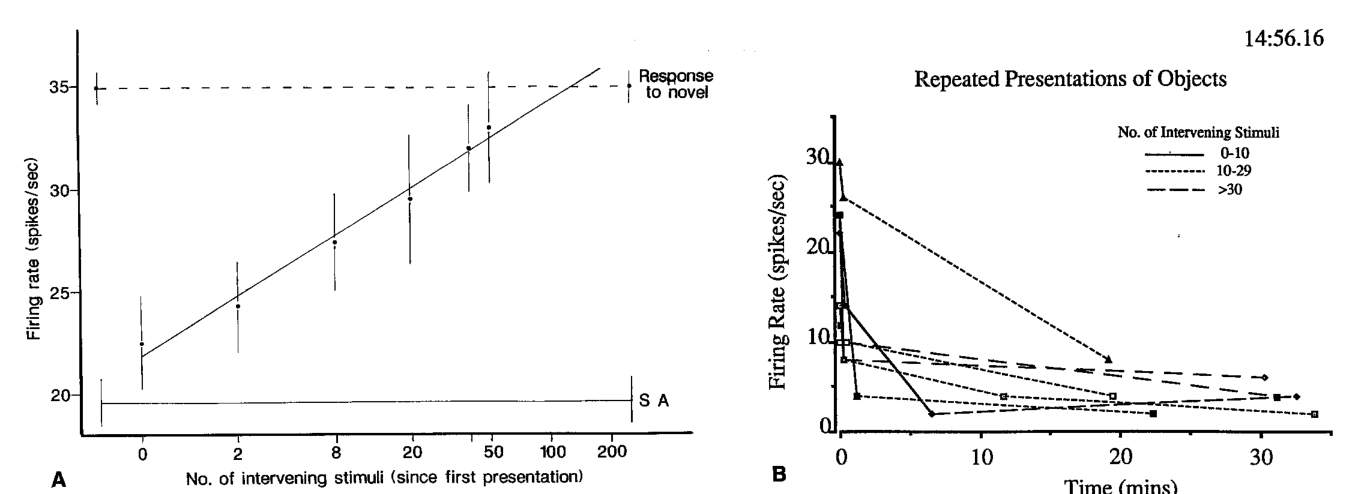
图 6 · 熟悉度神经元的解剖分布图
原文图注:Fig. 6. The locations of neurones for which responses to first presentations of unfamiliar stimuli were significantly greater than those to first presentations of familiar stimuli. Each dot marks a neurone that so responded and also showed significant response decrement on stimulus repetition; each triangle marks a neurone that so responded but did not show significant response decrement on stimulus repetition. Conventions as for Fig. 4.
解读:与图 4 同一套切片坐标,但这次画的是"熟悉度神经元"——对首次呈现的新鲜刺激反应显著大于对首次呈现的熟悉刺激的神经元。符号系统进一步细分:圆点表示该神经元同时有显著的重复衰减(即混合型),三角形表示没有显著衰减(即只报熟悉度)。读图时把两类符号合起来看,可见它们全部落在外侧内嗅皮层、鼻周皮层及 TG、TE1–TE3 一带,其余区域(内侧与尾侧内嗅、TEa、TEm、上颞沟底)一个都没有;三角形(纯熟悉度神经元)则更集中在 TG。这张图支撑主要结果第 3、4 条:熟悉度信号有其独立的解剖分布,且"纯熟悉度"神经元只出现在 TG。
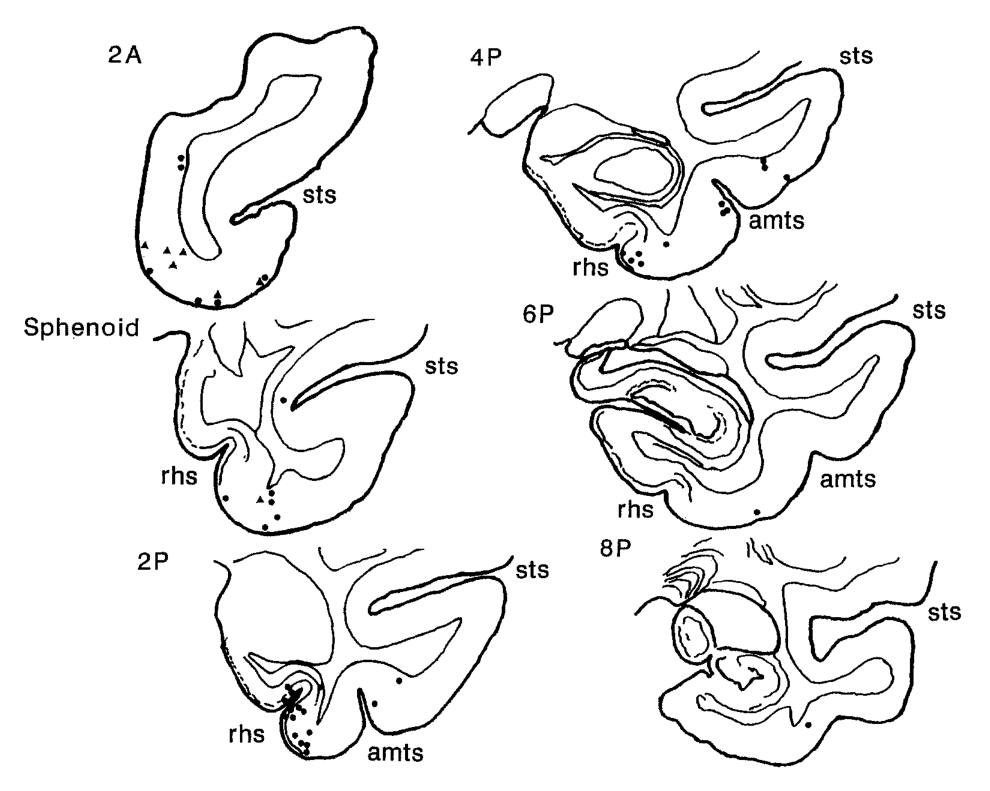
图 7 · 超过 24 小时(乃至 72 小时)的记忆跨度
原文图注:Fig. 7 A-C. Neuronal memory spans exceeding 24 h. A Difference in response to unfamiliar and highly familiar objects for a neurone (14:54.2) recorded in perirhinal cortex. The mean (± SEM) response to first presentations of unfamiliar objects (Today's Unfamiliar Objects) was significantly greater than that to first presentations of highly familiar objects, whether they had been seen that day (Today's Familiar Objects, P < 0.005) or not for more than 24 h (Yesterday's Familiar Objects, P < 0.05). Thus this neurone demonstrates access to information held in memory for at least 24 h. For the unfamiliar objects the response was significantly greater to first than to second presentations (P < 0.005).(后略)
解读:这张图把"长期记忆也能被单神经元读取"坐实。A 面:鼻周皮层神经元(14:54.2)对三类实物首现的平均反应比较——今日未见的新鲜实物(Today's Unfamiliar)反应显著大于今日已见的高度熟悉实物(P<0.005),也大于超过 24 小时未见的熟悉实物(P<0.05);注意后一个比较的关键在于,被比较的熟悉刺激与新鲜刺激同样隔了一整天未见,所以差异只能来自"累积的见过次数"而非最近一次见到的时间。B 面是组织学核对:箭头标出该神经元记录位点附近的微损毁,确认其确在鼻周皮层。C 面是更极端的例子:TG 区一个选择性对人/猴面孔反应的神经元(14:72.8B),对新颖面孔的反应显著大于对只见过两三次、72 小时前的"少见"面孔(P<0.005)和对超过 72 小时未见的熟悉面孔(P<0.001),而对新颖面孔的首次与第二次呈现之间无显著差异——只报熟悉度、不报新近度,记忆跨度至少 72 小时。此图支撑主要结果第 3 条的后半部分。
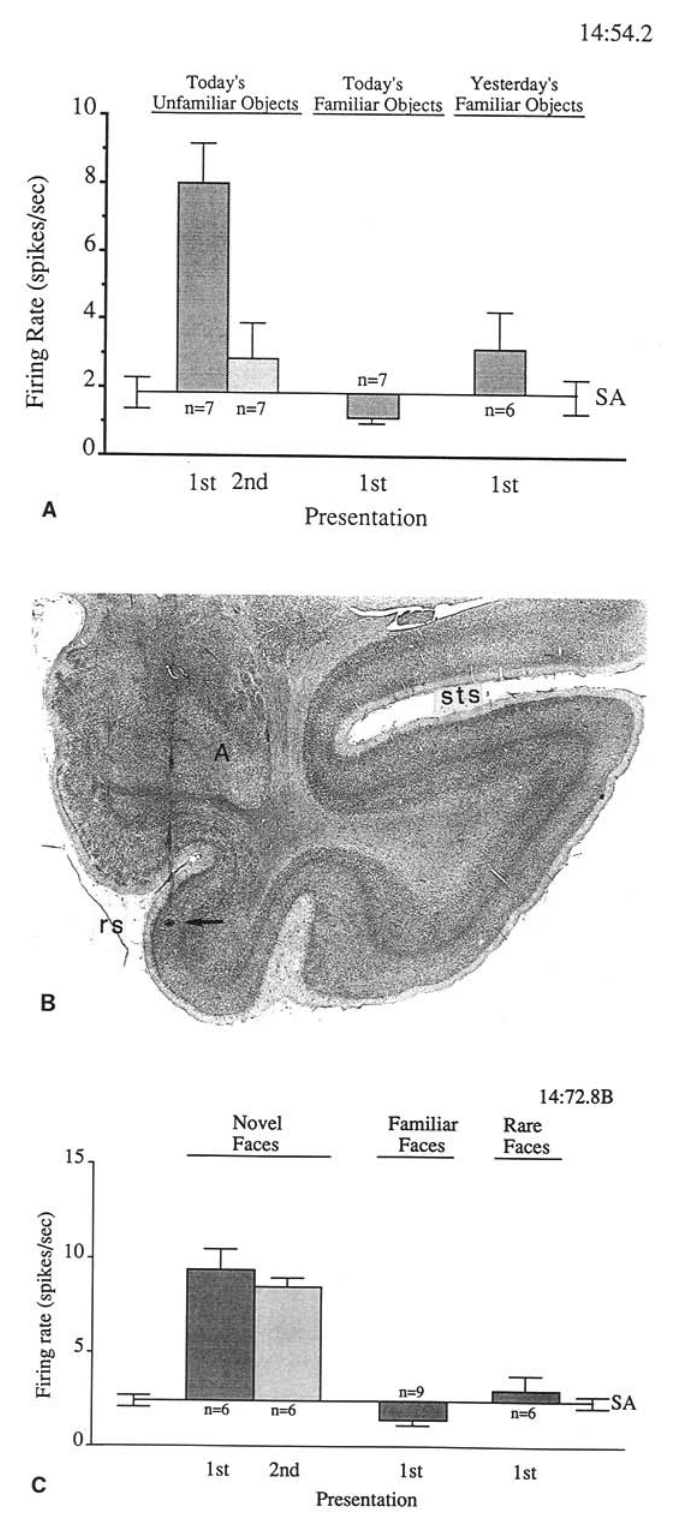
图 8 · 新近度神经元与熟悉度神经元的对照样本
原文图注:Fig. 8 A,B. Recency and familiarity neurones. A This recency neurone (9:19.1), recorded in TG, signals recency but not familiarity information. The mean (± SEM) response to first presentations of familiar or unfamiliar objects was significantly (P < 0.05) greater than that to their second presentations. However, the mean response to first presentations of familiar stimuli did not differ significantly from that to unfamiliar stimuli, neither was there a significant difference in the decrement in response upon stimulus repetition. B This familiarity neurone (9:59.23), recorded in TG, signals familiarity but not recency information. The mean (± SEM) response to first presentations of highly familiar objects differed significantly (P <0.001) from that to unfamiliar objects. However, the mean response to first presentations of familiar stimuli was not significantly different to that to their second presentations, i.e. there was no response decrement on stimulus repetition. SA, mean ± SEM spontaneous activity.
解读:这是全文论点的"双例证"图。A 面是新近度神经元(TG 区 9:19.1):对首次呈现的反应无论刺激熟悉还是新鲜都显著大于对第二次呈现(P<0.05),但熟悉与新鲜刺激的首次呈现之间无显著差异、两类刺激的衰减量也无显著差异——只报"刚见过没有",不报"熟不熟"。B 面是熟悉度神经元(TG 区 9:59.23):对高度熟悉实物的首现反应显著小于对新鲜实物(P<0.001),但熟悉实物的首现与二现之间无差异——只报"熟不熟",不报"刚见过没有"。两个面板互为镜像,是"新近度与熟悉度可分离编码"这一核心结论最直观的证据,也解释了为什么作者强调这两类神经元只是整群信号神经元谱系的两端。
讨论
作者对结果的解释分三层。第一层是可靠性:四类外围解释(奖励差异、行为反应差异、唤醒水平、眼动与瞳孔)逐一被对照排除,且没有任何神经元表现出相反方向的变化(重复后变强或对熟悉刺激更强),这使结果因偶然而出现的概率极低。关于为什么会是"衰减"而非"增强",作者给出两条功能上的理由:日常环境中多数遇到过的东西都是熟悉的,对它们降低反应节省能耗;而新颖的刺激需要更多加工、也更可能引发行为反应——这符合神经系统"报变化、不报恒定"的一般原则。第二层是机制:衰减的机制未知,对新近度神经元而言类似习惯化(habituation)的过程是候选,但该过程必须能一次性产生约 50% 的大衰减,且即便第二次出现前隔着许多其他刺激、刺激又被动物用来获取奖励时依然有效;简单疲劳显然不行。熟悉度信号可能走另一条机制——有些神经元重复衰减很弱,但对数小时前只见过几次的刺激反应已大幅降低。第三层是功能归属:这些信号显然服务于需要新近度/熟悉度辨别任务;与之相比,延迟匹配任务中样本期的持续放电(Fuster and Jervey 1981)难以解释有干扰物插入或信息需求不可预测的任务。作者还讨论了与启动记忆(priming memory,先前相关经验对绩效的促进)的可能关系:颞叶与内侧间脑病因的遗忘症患者启动基本完好,而这些携带长跨度的神经元恰有许多位于常规颞叶损伤区(海马结构、杏仁核、鼻周皮层)之外的区域 TE 与 TG,可为这类患者残留的再认与启动能力提供基质;但若衰减确实支撑启动,"反应下降如何导致绩效上升"仍待解释。作者最后把电生理证据与 Murray(1991)、Gaffan & Murray(1992)的鼻周皮层选择性损伤结果合并论证:鼻沟周围皮层对涉及新近度与熟悉度判定的再认记忆过程具有关键作用。局限方面,作者承认衰减神经元的真实比例可能被低估(多数神经元对部分刺激无反应、筛选标准会漏掉弱效应),且这些信息不足以解决所有再认任务——情境编码仍需海马结构等其他区域参与,各相关结构间信息流向亦不清楚。
一句话总结
以我的理解,这篇论文做对了一件后来被反复证明关键的事:把"见过没有"拆成"多久前见过"和"见过多少次"两个变量,再让数据自己说话——单细胞层面它们真的可以分开,且重复衰减神经元的检出比例在鼻周皮层及TE1、TE2中较高,其分布与同期鼻沟周围皮层损伤研究相呼应;本研究未直接比较海马本体,不能据此判断海马对再认记忆不重要。图 7 那个 72 小时跨度的面孔神经元放在今天看依然漂亮:记忆的神经痕迹原来可以这么安静地、以调低反应的方式长期驻留在皮层里。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, D] - Fig2: 提取质量
good,对齐度full,识别面板[A, D] - Fig3: 提取质量
good,对齐度full,识别面板[A, B, E] - Fig4: 提取质量
good,对齐度full,识别面板[A] - Fig5: 提取质量
good,对齐度full,识别面板[A, B] - Fig6: 提取质量
good,对齐度full,识别面板[] - Fig7: 提取质量
good,对齐度full,识别面板[A, C] - Fig8: 提取质量
good,对齐度full,识别面板[A, B]
关键事实与局限性声明
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '无行为要求的观看结果排除了任务训练影响。', 'assessment': '只能较有力地排除当次运动反应差异,不能排除既往训练历史。'} -> 评注: 只能较有力地排除当次运动反应差异,不能排除既往训练历史。
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '海马本体中的相关神经元较少或不重要。', 'assessment': '海马本体并非本研究的系统记录区域,数据不支持该比较。'} -> 评注: 海马本体并非本研究的系统记录区域,数据不支持该比较。
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '图7A差异只能来自累计见过次数。', 'assessment': '熟悉度与精确的新近度没有完全正交匹配,因而不能作排他性因果归因。'} -> 评注: 熟悉度与精确的新近度没有完全正交匹配,因而不能作排他性因果归因。
- 审校纠偏: {'classification': 'INTERPRETATION', 'claim': '7个熟悉度神经元和58个新近度神经元证明两类信息完全分离编码。', 'assessment': '数据支持部分可分离的作者解释,但另一维度未显著不等于其效应为零。'} -> 评注: 数据支持部分可分离的作者解释,但另一维度未显著不等于其效应为零。
- 审校纠偏: {'classification': 'INTERPRETATION', 'claim': '这些反应是再认记忆的神经机制或直接服务于任务求解。', 'assessment': '单元活动与刺激经历相关;结合同区域损伤证据可支持功能重要性,但本记录研究本身没有操纵这些神经元,不能建立细胞活动对行为的因果作用。'} -> 评注: 单元活动与刺激经历相关;结合同区域损伤证据可支持功能重要性,但本记录研究本身没有操纵这些神经元,不能建立细胞活动对行为的因果作用。
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '该论文是现代共识的关键证据及后来双过程模型的重要源头。', 'assessment': '属于需要后续历史和引用文献支持的外部评价,不能由本论文原文单独证实。'} -> 评注: 属于需要后续历史和引用文献支持的外部评价,不能由本论文原文单独证实。
- 补充要点: : (第 7 页)
- 补充要点: : (第 4 页)
- 补充要点: : (第 8 页)
- 补充要点: : (第 8 页)
- 补充要点: : (第 3 页)
- 补充要点: : (第 3 页)