这篇文章用清醒固视猕猴的相位编码(phase-encoded)fMRI 视网膜定位映射,在腹侧颞叶枕颞沟内发现了两个新的视野图谱 OTS1 和 OTS2,并证明它们偏好对侧周边视野、与功能定义的场景偏好区 LPP 在空间上重合。由此作者把猕猴 IT 的场景区和人类海马旁回_place 区(PHC1/2 与 PPA)对应起来,还顺带展示了视网膜定位组织从丘脑一直延伸到颞叶前端的全景。对关心"IT 到底有没有视网膜定位"和"场景网络在灵长类之间是否保守"这两个问题的人来说,这是一篇把两者一并回答的实证之作。
研究背景
灵长类下颞叶皮层(inferior temporal cortex, IT)里分布着对面孔、身体、场景等特定类别图像有选择性响应的功能域:面孔区(Tsao et al., 2003)、身体区(Pinsk et al., 2005)、场景区(Nasr et al., 2011; Kornblith et al., 2013)等。传统观点认为,视网膜定位组织(retinotopy,即皮层上按视野位置有序排列的映射)是后部视觉皮层的基本组织原则,但 IT 一直被当作缺乏这种组织的高级"类别区"。然而近年来的 fMRI 研究开始松动这一看法:在猕猴上颌颞沟(superior temporal sulcus, STS)下岸及其邻近的 IT 区域内发现了多个视野图谱(Janssens et al., 2014; Kolster et al., 2014; Orban et al., 2014),其中一些还与面孔区部分重叠。缺口在于:这种视网膜定位组织在腹侧 IT 能延伸多远,它与类别选择性功能域是什么关系,此前并不清楚。
另一边,人类影像学已经把故事讲了一半:在人类 hV4 之前的腹侧枕颞皮层中,先后鉴定出 VO1/VO2 和海马旁回区域的 PHC1/PHC2 两对视野图谱;PHC1/2 主要表征周边视野、对场景刺激有选择性,人类场景区 PPA(海马旁回_place 区)恰与 PHC1/2 重叠(Arcaro et al., 2009)。而猕猴这边虽已报道多个场景偏好候选区(mPPA、LPP、MPP),但究竟哪一个对应人类 PPA,长期悬而未决。作者正是要抓住"视网膜定位组织"这个跨物种可比的结构线索,来给猕猴场景区找"户口"。
研究思路
作者的总体策略是"先画地图,再对类别,最后跨物种对表"。第一步,在多只猕猴上做标准的相位编码视网膜定位映射,用旋转楔形刺激扫极角(polar angle)、用扩张/收缩环形刺激扫偏心距(eccentricity),按相位进展的极性逆转来确定视野图谱边界——这是鉴定皮层区的经典判据。第二步,在同一批动物上做类别对照实验(场景/面孔/身体/物体),检验新图谱是否恰好落在功能定义的场景区 LPP 上。第三步,针对"OTS1/2 只不过是邻近区 V4、V4A、PITv 的周边延伸"这一最自然的替代解释,逐一比较极角边界、偏心距组织和面积随层级变化的规律,论证 OTS1/2 是独立皮层区。最后把猕猴的图谱组织与人类 PHC1/2、PPA 的已知组织逐条对照,提出跨物种同源(homologue)关系。这条逻辑链之所以成立,是因为视野图谱的组织方式(哪里代表上/下视野、镜像是否反转、有没有中央凹表征)比单纯的位置邻近要硬得多,不容易被解剖位置的模糊性糊弄过去。
方法
被试为 4 只幼年恒河猴(2 雄 2 雌,约 1.5 岁,实验室自繁),扫描时清醒、头部以泡沫衬垫头盔固定,要求把注视点维持在 2° 窗口内并用红外眼动仪监控。扫描用 3T TimTrio 加 AC88 梯度插入线圈和自制 4 通道表面线圈,1 mm 各向同性体素;扫描前隐静脉注射单晶氧化铁纳米颗粒对比剂 MION(12 mg/kg,Feraheme)以提升信噪比。极角映射用 45° 弧长、跨 0.5–10° 偏心距的彩色棋盘格楔形,以 9°/s 绕注视点顺/逆时针旋转(4 Hz 闪烁),每轮 8 个 40 s 周期、共 10–12 轮两方向各半;偏心距映射用占空比 10% 的扩张/收缩环,周期之间插入 10 s 空屏以避免相位编码的"回绕"伪影。类别实验呈现场景、猴面孔马赛克、无头猴身体马赛克、熟悉物体马赛克四类图像(每张 20°×20°,0.5 s,20 s 区组,SHINE 工具箱平衡空间频率和亮度);改为:面孔相关激活仅在两只正常面孔经验的猴中分析;另两只猴因早期面孔经验受限且面孔相关IT反应异常,未纳入场景与面孔的统计比较。分析上,对每体素时间序列做傅里叶变换提取刺激频率处的幅值与相位,校正 4 s 血流动力学延迟,改为:视网膜定位图以F比值检验并采用p<0.0001的未校正阈值;类别对比图采用p<0.0001、FDR校正,并要求至少10个相邻体素;图谱数据投影到个体(M1/M2)或 F99 标准表面(M3/M4)。类别实验用一般线性模型回归,区组对比做 FDR 校正,并按 preferred 与非 preferred 条件的 β 系数计算 d-prime(d′)敏感性指数来跨区比较类别判别力。
主要结果
- 视野图谱几乎贯穿整个视觉系统。除已知的枕叶、顶叶图谱外,在所有猴的额叶眼区、下顶内沟(含新编号的 LIP2、LIP3)以及丘脑(外侧膝状体核 LGN 与腹侧丘脑枕 pulvinar)都检出了对侧视野的相位组织;丘脑还表现出上视野在腹侧、下视野在背侧的反转排布。唯一例外是前颞 STS(AIT):有视觉激活但无清晰视网膜定位(图 1)。
- 发现两个新图谱 OTS1/OTS2。二者位于枕颞沟(occipitotemporal sulcus, OTS)内、V4A 和 PITv 的腹内侧;OTS1 从后界的下视野表征推进到与 OTS2 共享的上视野边界,OTS2 再镜像反转回下视野,且两区几乎只表征对侧周边(>7°)、沿偏心距维度没有清晰梯度。在面积数值后注明:该估计仅基于M1和M2的个体表面。,约相当于 V1 面积的 4%(图 2、4)。
- 拓扑组织是真实且跨个体稳定的。沿三条线性 ROI 定量显示极角相位平滑推进、在边界处逆转;个体内相关 r≈0.83、跨个体相关 r≈0.90(p=0.0001);刺激频率处的响应幅值显著高于所有其他频率(极角实验 OTS1/OTS2 平均信号变化 2.25%/1.30%),证明响应与刺激位置紧密锁定(图 3、5)。视野覆盖分析显示 OTS1/OTS2 中 99.0%/98.0% 的体素偏好对侧视野、81.0%/92.4% 偏好 6.66° 以外的周边空间(均 p=0.0001);上视野偏置(66.0%/64.4%)未过显著性检验(p=0.16/0.21),主要被一只猴拉平(图 6)。
- 排除"只是邻近区外周延伸"的备选模型。无论把 OTS1/OTS2 归入腹侧 V4/V4A 还是 V4A/PITv,都与实测不符:极角边界对不上(如 OTS1 后界是下垂直子午线而 V4 后界是上垂直子午线)、OTS1/2 内上下视野表征连续而 V4/V4A 是解剖分离的、PITv 的偏心距图谱在 OTS 边界处止步;且若 PITv 与 OTS2 合并,总面积(126 mm²)会违反"越靠层级上游皮层区越小"的趋势(图 7)。
- OTS1/2 就是猕猴的腹侧场景区,并与人类对应。OTS1/2 对场景的响应显著高于身体和物体(t(7)=4.58,p=0.01)以及面孔(t(3)=5.5,p=0.05,仅两只受测猴);场景/物体的 d′≈1.06,约为 V4、PITv(≈0.48)的两倍,即使把分析限制在周边表征上仍是 PITv(0.44)的两倍,场景指数强于所有对照区(t(7)=2.56,p=0.05)。场景选择性区与 LPP 空间重合,群体平均亦然;背侧还发现场景区 mTOS 与 DP、V3A 重叠(DP 有 80% 周边表征和 70% 下视野偏置)。人类 PHC1/2 与 OTS1/2 的组织逐条相似(对侧周边表征、场景偏好、沿前后轴从下视野到上视野再反转),据此作者提出猕猴 LPP 是人类 PPA 的同源区(图 8–11)。
图注解读
图 1 · 全脑视网膜定位图概览(皮层与丘脑)
原文图注:Figure 1. Retinotopic maps across occipital, temporal, and parietal cortex as well as the thalamus. Top, Polar angle and (bottom) eccentricity maps are shown on inflated surface views of lateral cortex in the left hemispheres and sagittal and coronal volume slices of monkeys M1 and M2. Full volume slices are accompanied with zoomed in views of the ventral thalamus. The color code indicates the phase of the fMRI response and therefore the preferred region of the visual field…
这张总览图把两张相位编码图的读法定了调:颜色编码每体素响应的相位,即它最偏好的视野位置;极角图只显示对侧表征,黑色实线标出图谱间的子午线边界。上半是极角(红黄=上视野、绿=水平子午线、蓝=下视野),下半是偏心距(红橙=中央、蓝=周边),分别铺在 M1、M2 的膨胀表面和矢状/冠状切片上,丘脑部分放大展示 LGN 与丘脑枕的定位组织。它支撑结论 1:改为:清晰的视野组织广泛分布于枕叶、颞叶、顶叶、额叶和丘脑,但AIT是明显例外。,而 AIT 有激活却无相位组织。
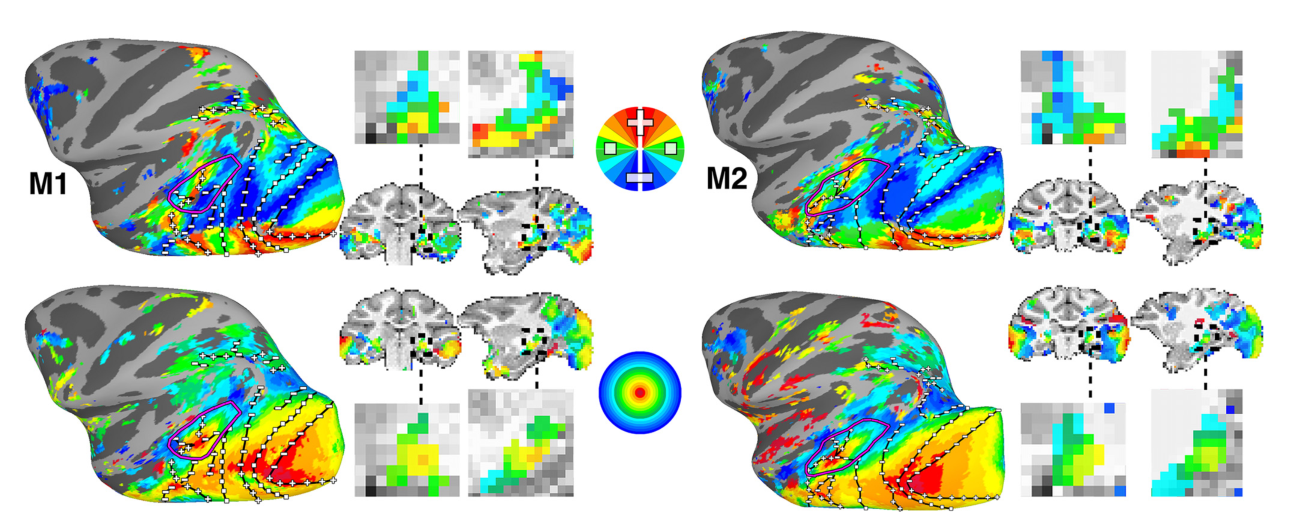
图 2 · 腹侧颞叶四猴图谱与 OTS1/2 的定义
原文图注:Figure 2. Retinotopic maps in ventral temporal cortex of four monkeys. Left, Polar angle and (middle) eccentricity maps are shown in inflated surface views of ventral occipital and temporal cortex. The color code indicates the phase of the fMRI response and therefore the preferred region of the visual field. For polar angle maps, only contralateral representations are displayed…
这是全文的核心证据图。左列极角图上,作者在 M1 标出六个极角进展的逆转点,依次对应 V1/V2、V2/V3、V3/V4、V4/V4A、V4A/PITv 的边界,并在更腹内侧再数出 #7(下视野,OTS1 后界)、#8(上视野,OTS1/OTS2 共享边界)、#9(下视野,OTS2 前界)三个逆转,从而在四只猴的每一侧半球都定义出 OTS1 和 OTS2;中列偏心距图显示这两区内几乎没有从中央到周边的系统性推进。右列给出新定义区与 V1–PITv 腹侧半的面积范围。它支撑结论 2。
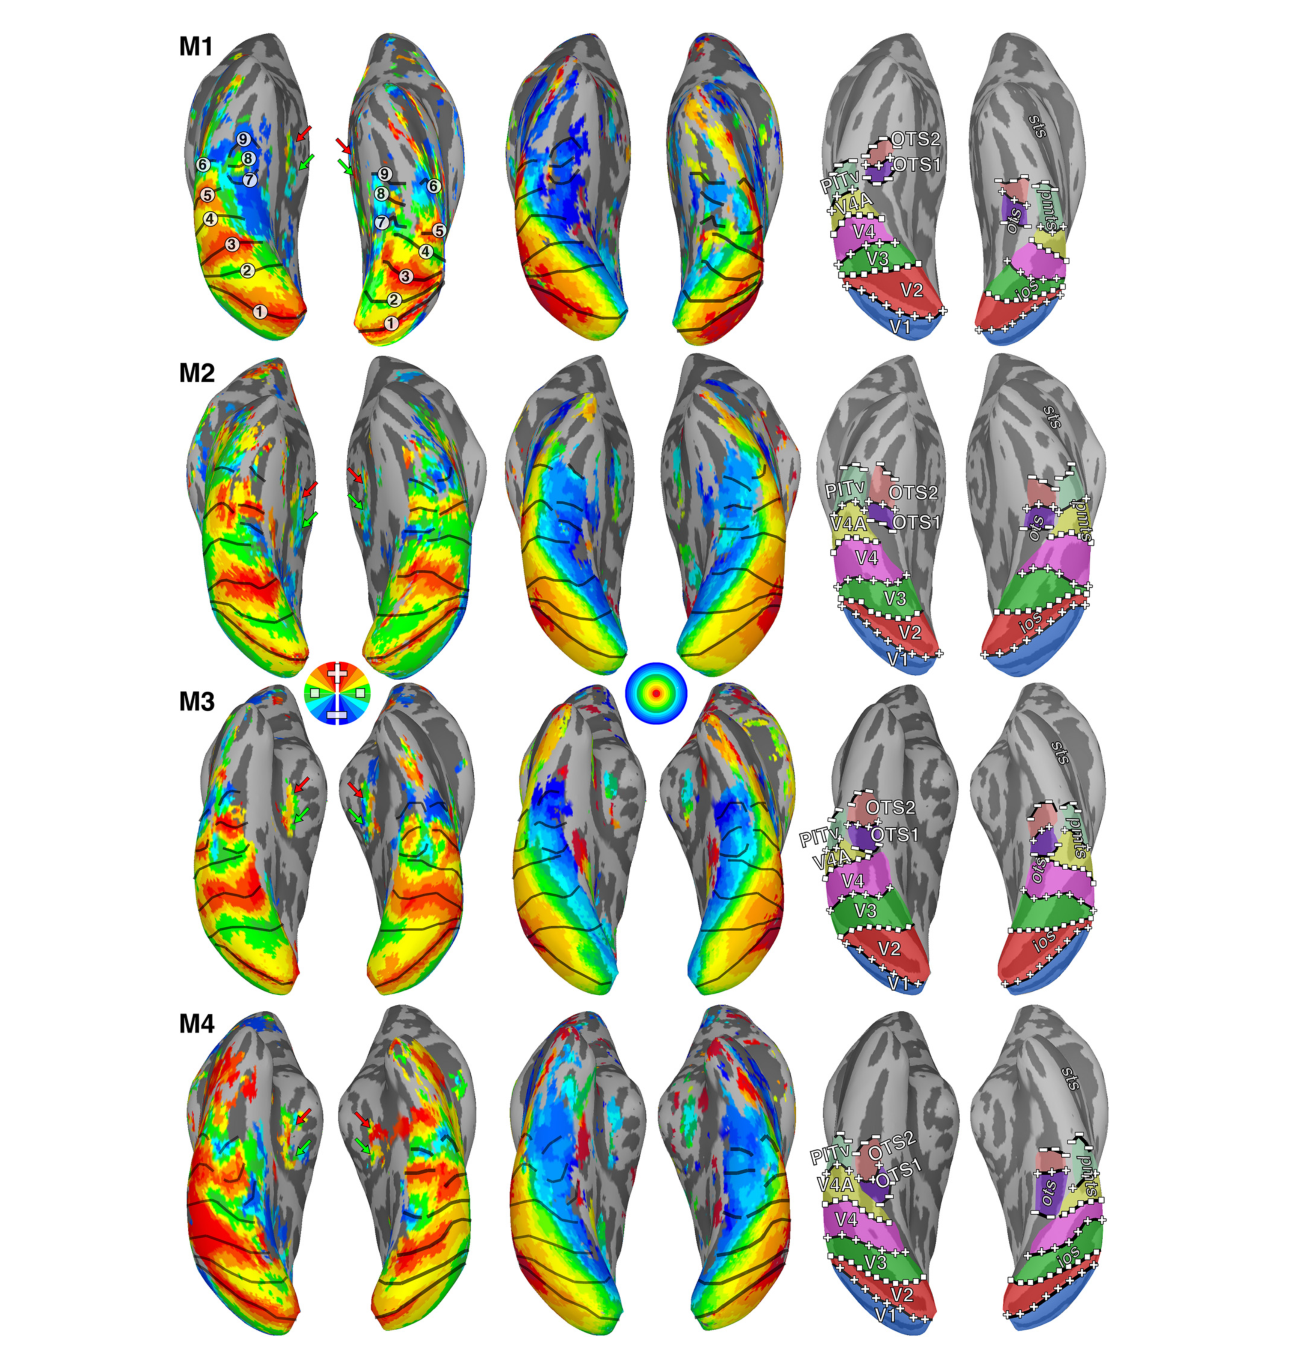
图 3 · OTS1/2 极角相位进展的定量分析
原文图注:Figure 3. Analysis of topographic organization within OTS1 and OTS2. a, Polar angle maps for OTS1 and OTS2 in the RH of monkey M4. Top, Red, green, and blue dotted lines correspond to the ROIs along the lateral, midline, and medial borders of OTS1 and OTS2. Bottom, Polar angle phase values plotted as a function of cortical distance (relative to posterior border of OTS1) for all three linear ROIs and the average (black line)…
由于 OTS1/2 内没有可用的偏心距梯度,作者改用垂直于极角轴的三条线形 ROI(外侧、中线、内侧缘),把极角相位对"距 OTS1 后界的皮层距离"作图。曲线从下视野(蓝)爬升到上视野(红)峰值(即 OTS1/OTS2 共享边界),随后回落到下视野——教科书式的"一个图谱推进+镜像反转"形状。a 是 M4 右半球的单例展示,b 把各猴两半球和群体平均画在同一坐标系里。它支撑结论 3 的"相位平滑、边界逆转、跨个体一致(r≈0.83/0.90)"。
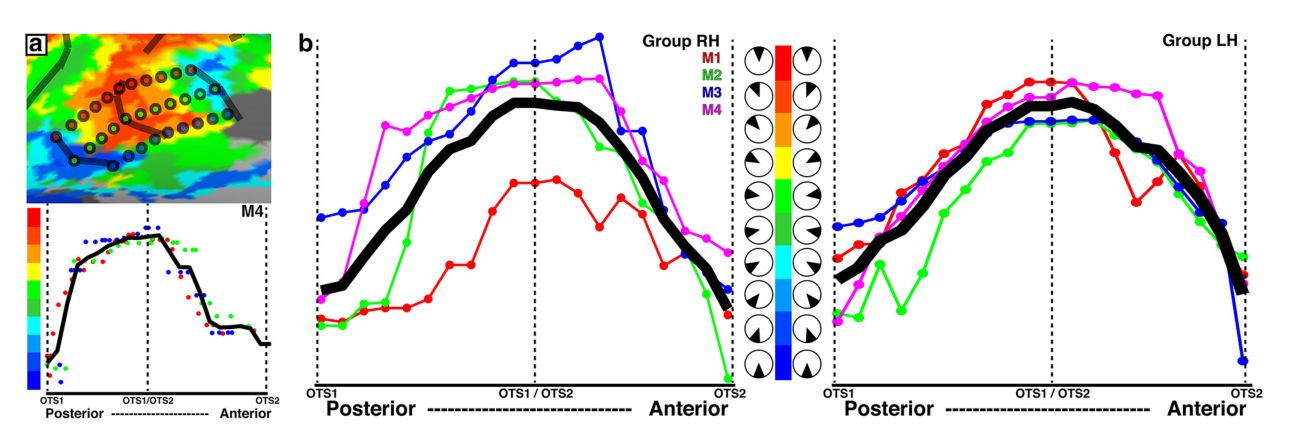
图 4 · OTS1/2 的解剖定位(体积切片)
原文图注:Figure 4. Anatomical localization of retinotopic maps in volume. The location of OTS1 and OTS2 in (left) axial, (middle) sagittal, and (right) coronal views. Mean EPI images from the polar angle experiment are presented aligned to anatomical volumes for the sagittal view. For M1 and M2, EPI images were registered to native anatomical volumes. For M3 and M4, EPI images were registered to the F99 standard template volume…
表面图好看但不直观,这张图用轴位、矢状、冠状三种切片把 OTS1/OTS2 钉在真实解剖体积里, coronal 切片以 2 mm 等距放大展示左半球腹侧颞皮层,并顺带画出 V1、V2、V3、V4、V4A、MT、MST、FST、V4t、OTd、PITd、PITv 等图谱的位置。读者由此可以确认 OTS1/2 确实落在枕颞沟内、V4A/PITv 的腹内侧,而非皮层表面的投影错位,支撑结论 2 的解剖定位部分。
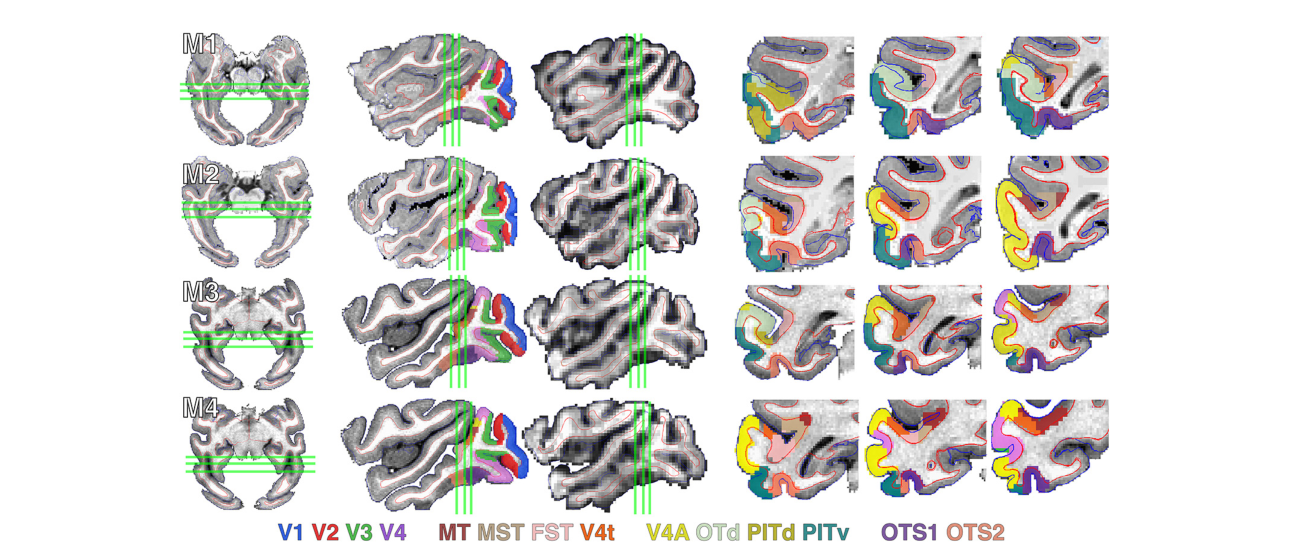
图 5 · 刺激频率处的响应幅值(信号锁定检验)
原文图注:Figure 5. Response amplitude as a function of temporal frequency in OTS1 and OTS2. Boxplots of response amplitude converted to percentage signal change for (top) polar angle and (bottom) eccentricity experiments. The response at the stimulus frequency (dark blue) was significantly greater than the response at all other frequencies. Light blue bars correspond to the first harmonic. For comparison, response amplitudes for areas V1, V4, PITd, and PITv are also shown. Median (black line), interquartiles (whiskers), and 1.5× interquartile outliers (red cross).
这是方法学上的"防杠"图:如果 OTS1/2 的相位图只是噪声,那么刺激频率处的傅里叶幅值就不该突出。实际结果是深蓝柱(刺激频率)显著高于其他所有频率(跨猴半球 t(7)>3.74,p=0.01),且改为:OTS1和OTS2的刺激频率响应分别为2.25%和1.30%,低于V1/V4,也低于或接近PITd/PITv,但均显著高于噪声频率。,说明弱信号但真实。它支撑结论 3。
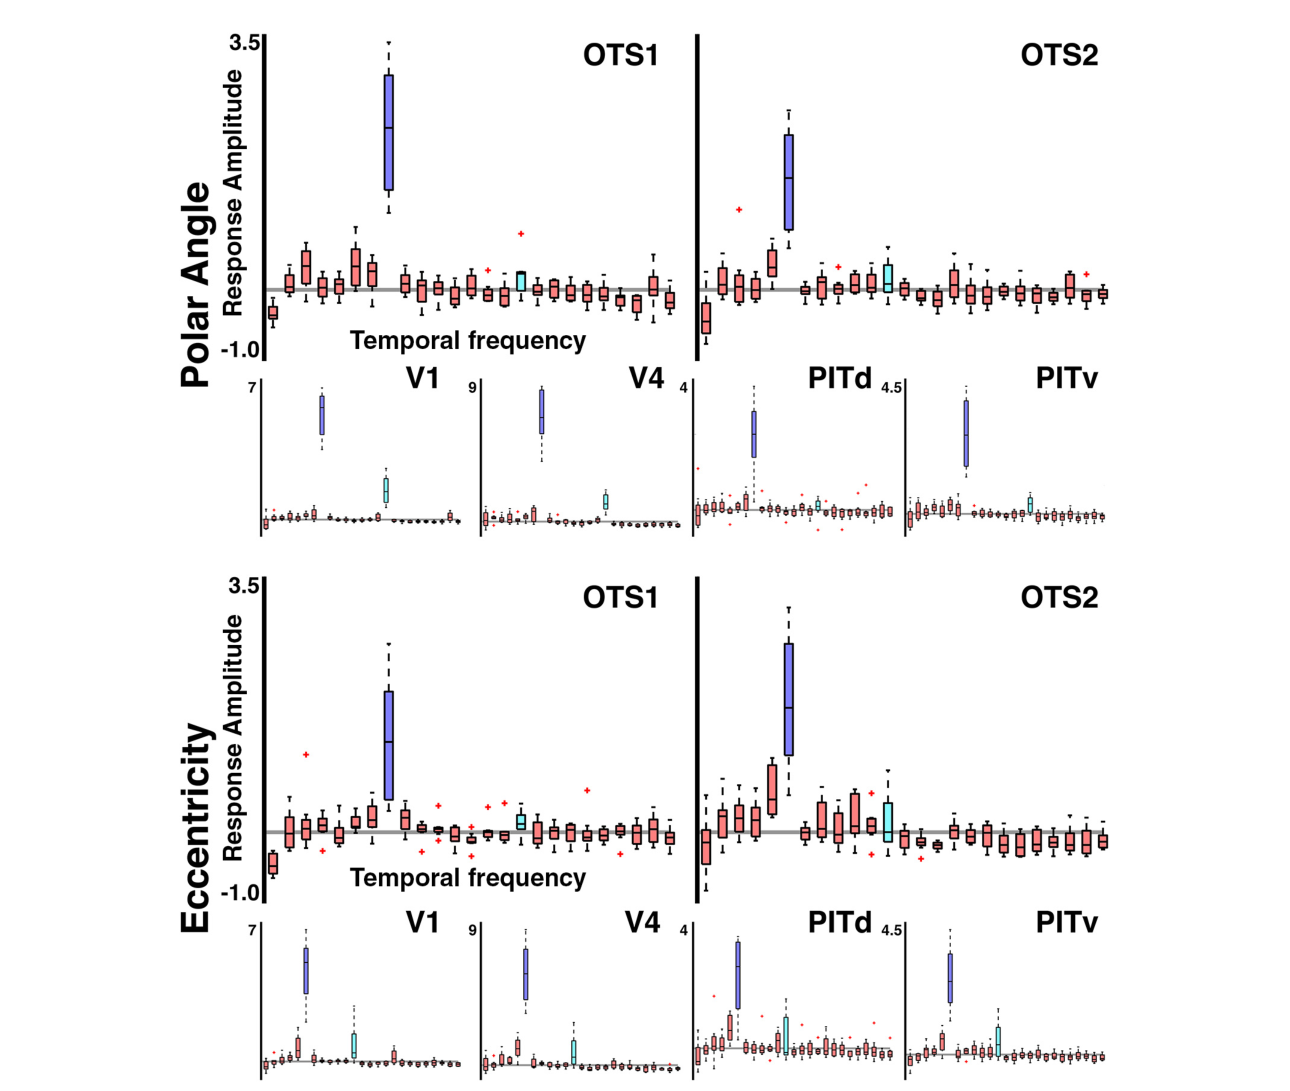
图 6 · OTS1/2 的视野覆盖:对侧与周边偏好
原文图注:Figure 6. Visual field coverage of OTS1 and OTS2. Individual monkey and group scatterplots of the central 10° visual field representation based on polar angle and eccentricity maps thresholded at p=0.0001. Each point represents the preferred visual field location of a voxel that had significant responses in both polar angle and eccentricity. Red and blue points indicate data from the RH and LH hemispheres, respectively. Inner solid black line denotes 6° along the eccentricity axis. OTS1 and 2 show a strong contralateral and peripheral preference…
每个点是一个体素的"最优视野位置"(相当于感受野中心而非全感受野范围),坐标系为中央 10° 视野。散点几乎全部落在右半视野(对侧)和 6° 黑圈之外(周边),定量为 99%/98% 对侧偏好和 81%/92% 周边偏好;与 V1、V4、V4A、PITv 的复合覆盖对比后,这种"周边癖"一目了然。它支撑结论 3 的视野覆盖部分,也是"场景域偏周边"这一关键论点的直接证据。
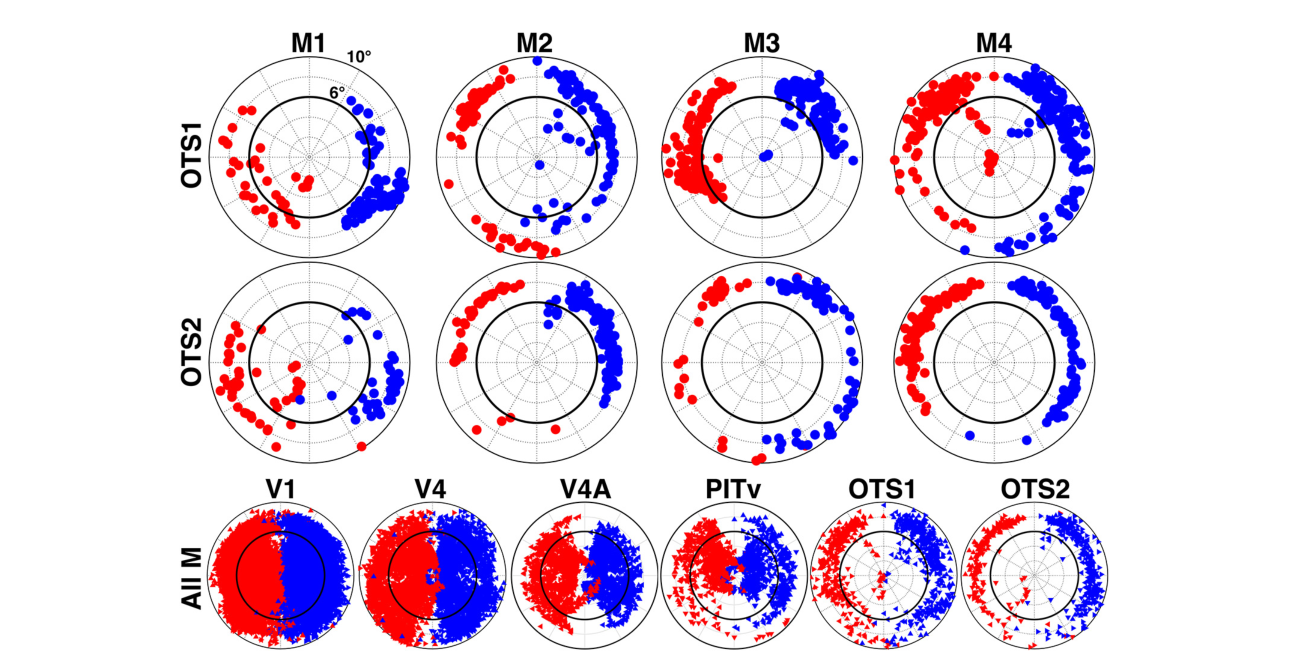
图 7 · 腹侧颞叶视网膜定位的备选模型
原文图注:Figure 7. Alternative models of ventral temporal retinotopic organization. a, Top, Our proposed model of the retinotopic organization of macaque ventral temporal cortex includes distinct visual field maps for OTS1/2. Black arrow indicates axis of eccentricity map. Middle, An alternative model where OTS1 is part of V4 and OTS2 is part of V4A. Bottom, A second alternative model where OTS1 is part of V4A and OTS2 is part of PITv. Red x's mark inconsistencies in polar angle representations between V4/V4A and the OTS maps…
这张图正面回答"为什么不把 OTS1/2 算进邻近区":中间和下方两行画出两种合并模型,红叉标出合并后极角表征互相矛盾的位置;b 部分的偏心距相位曲线显示 V1、V4、PITv 从中央推进到周边,而 OTS 内曲线保持平坦的周边表征。加上面积随层级的约束(PITv+OTS2 合并达 126 mm²,超过相邻的 OTd 70.4 和 PITd 67.8 mm²),两个备选模型都被否掉。它支撑结论 4。
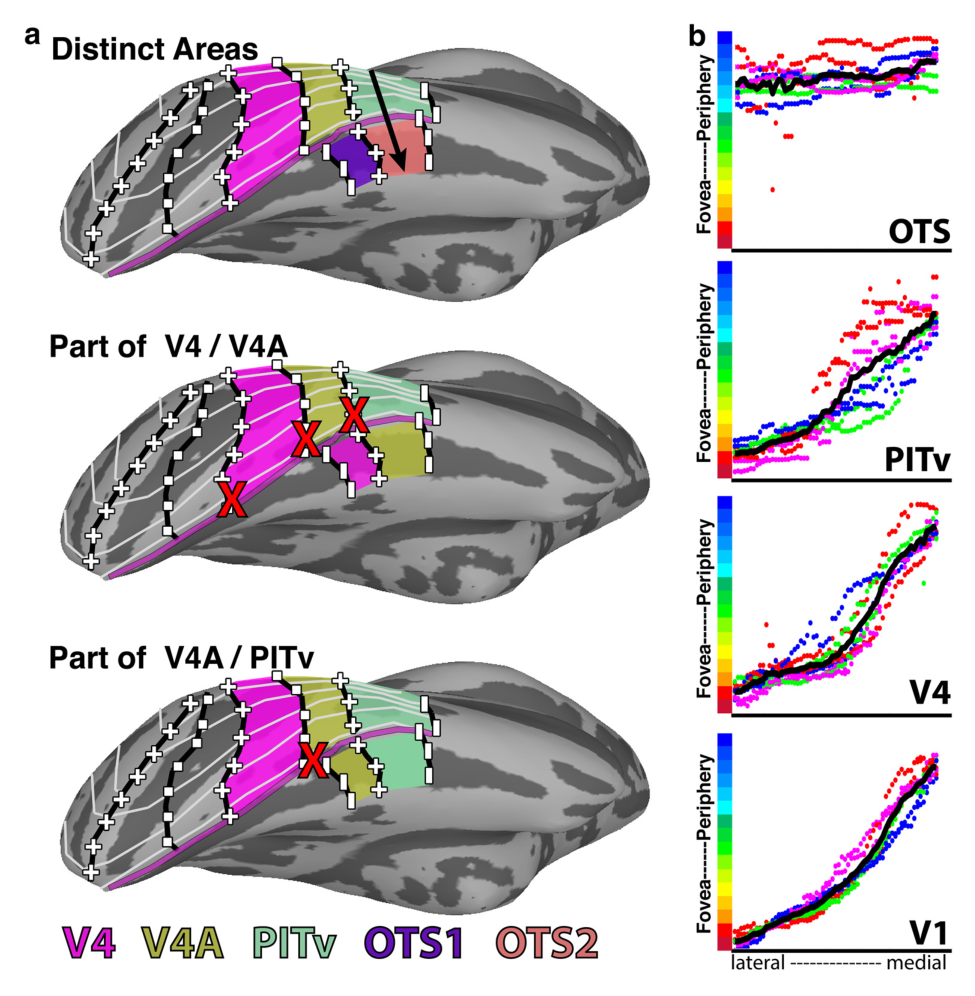
图 8 · OTS1/2 的类别选择性
原文图注:Figure 8. Category selectivity in OTS1 and OTS2. a, Scene selectivity overlapped with OTS1 and OTS2. This region showed strong selectivity for scenes versus (top) faces and (bottom) objects. The location of scene selectivity with respect to anatomy and the OTS1 and OTS2 visual field maps was consistent in all four monkeys (p=0.0001, FDR-corrected). b, Mean responses within OTS1/2 were significantly larger for scene stimuli versus all other categories (p=0.01). d-primes for distinguishing scenes from objects was significant larger in OTS1/2 than visual areas V1, V4, PITd, and PITv (p=0.05).
a 行是"场景 vs 面孔"和"场景 vs 物体"的对比统计图(FDR 校正),场景选择性激活恰好罩住 OTS1/OTS2 的位置;b 是定量部分:类别主效应显著(F(3,20)=9.02,p=0.001),场景对其他各类的优势、以及 OTS1/2 的场景/物体 d′ 在 V1、V4、PITd、PITv 中最高。即使把对照区限制在与 OTS1/2 相同的周边表征内,d′ 差距仍差一倍。它支撑结论 5 的"OTS1/2 即峰值场景选择性"。
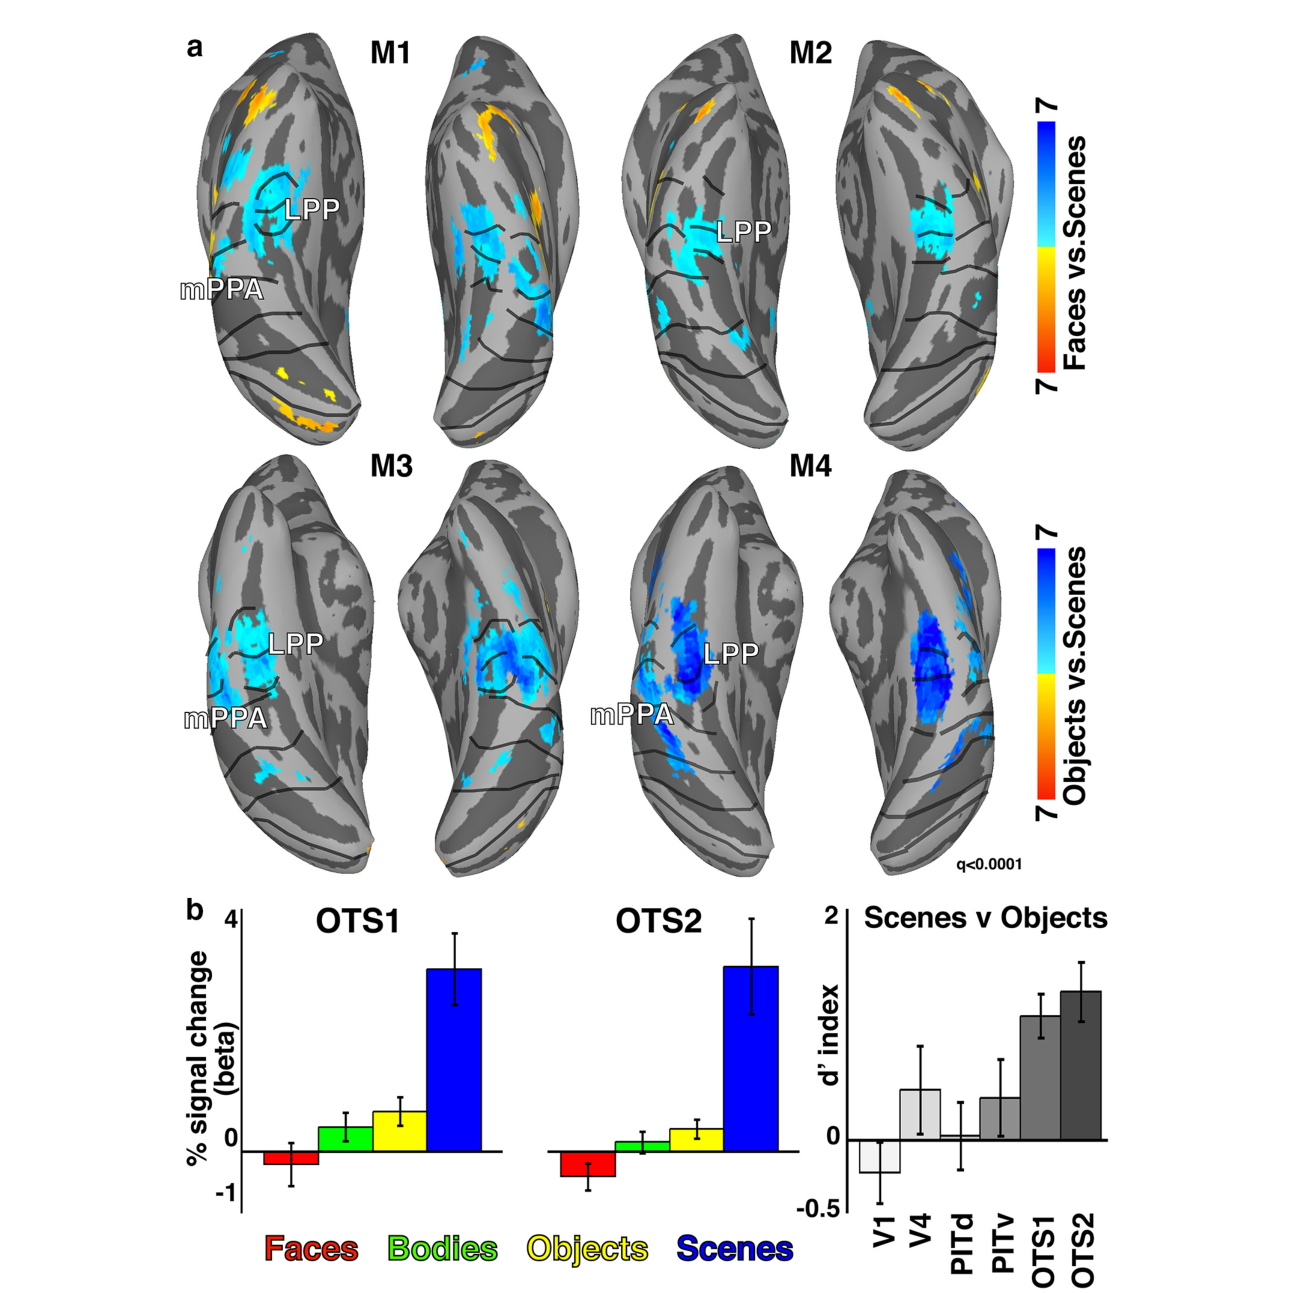
图 9 · 背侧场景区的视网膜定位组织
原文图注:Figure 9. Retinotopic organization of dorsal scene-selective region. a, Group average (n=4) polar angle and eccentricity maps of dorsal occipital and posterior parietal cortex. See Figure 1 for conventions. b, A region within the dorsal prelunate that overlapped with retinotopic areas DP and V3 showed stronger responses to scenes versus all other categories. This area mainly represented contralateral peripheral space…
这张图把故事从腹侧扩展到背侧:a 显示群体平均的背侧图谱,除已知区外还在顶内沟下岸识别出 LIP1 之外的两个新对侧视野图谱 LIP2、LIP3;b 显示场景选择性区 mTOS 与 DP、V3A 及部分背侧 V3 重叠,且 DP 呈 80% 对侧周边表征和 70% 下视野偏置(p=0.01)——与人类背侧场景区 TOS/OPA 的下视野偏置相呼应。它支撑结论 5 的背侧部分。
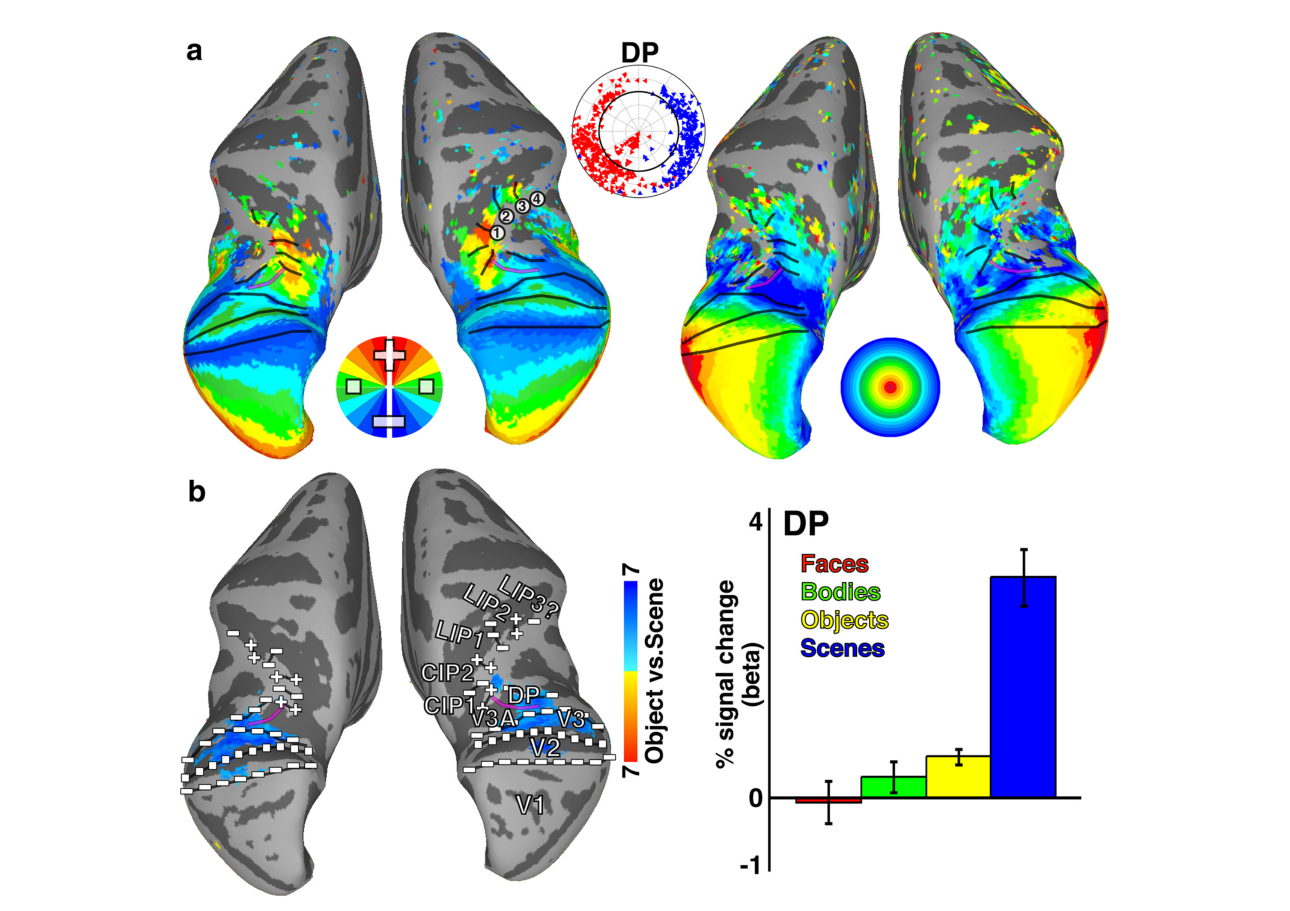
图 10 · 群体平均图与解剖分区对照
原文图注:Figure 10. Group average maps. a, Group average (n=4) polar angle and eccentricity maps of ventral occipital and temporal cortex. The topographic organization was consistent with individual subject maps indicating that there was good agreement in the representation of visual space across monkeys. Data were thresholded at p=0.001 in each subject. Voxelsthatweresignificantinatleast 3/4 individuals are displayed…
把四猴数据配准到 F99 标准表面求平均,是为了排除"个体特异性凑巧"的质疑:群体平均的极角/偏心距图与个体几乎一致,说明这些图谱的组织在猴间高度保守。b 显示群体水平的场景 vs 物体对比恰好落在群体平均 OTS1/2 上;c 把图谱与 Lewis & Van Essen 解剖图谱对照,OTS1/2 落在 TF 区最后部(约相当于 VTF)及 V4v、VOT 内侧部分。它支撑结论 5 的跨个体与解剖对应部分。
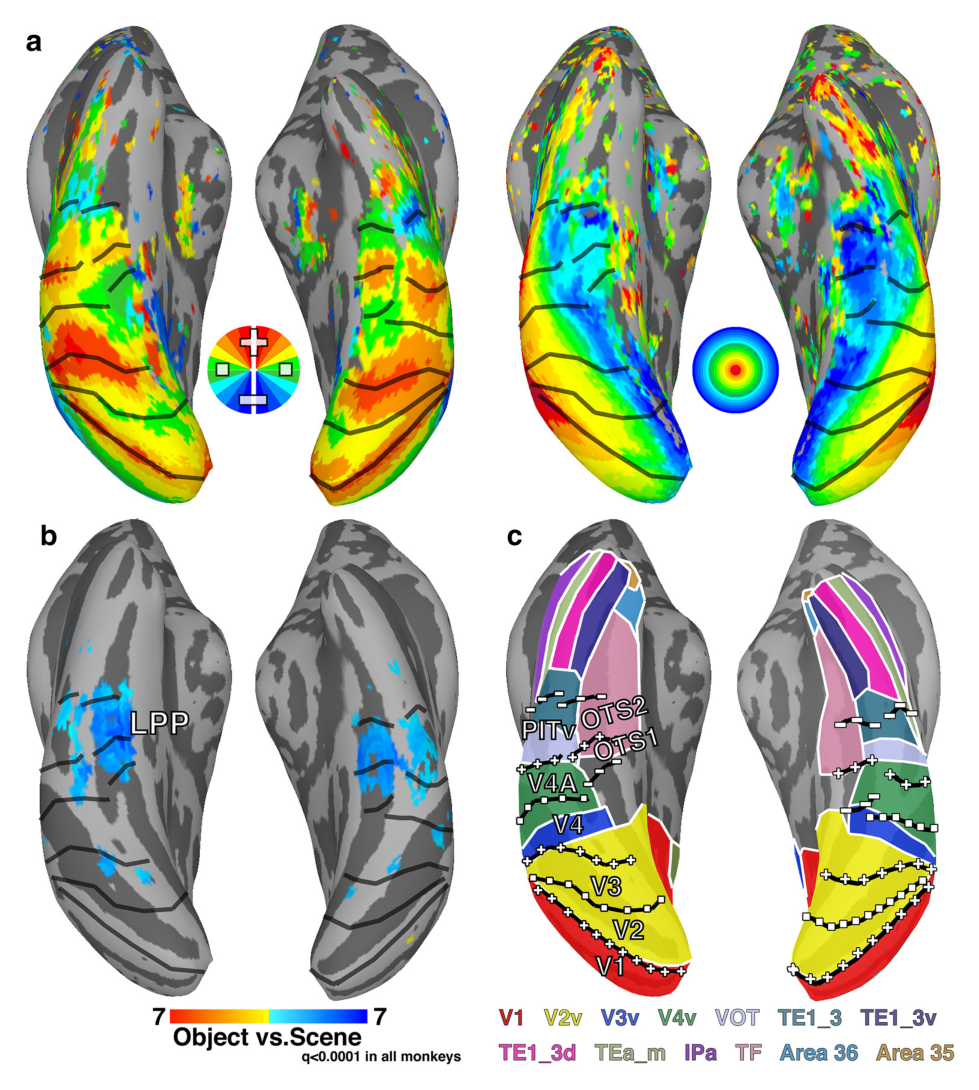
图 11 · 人猴腹侧颞叶功能组织比较
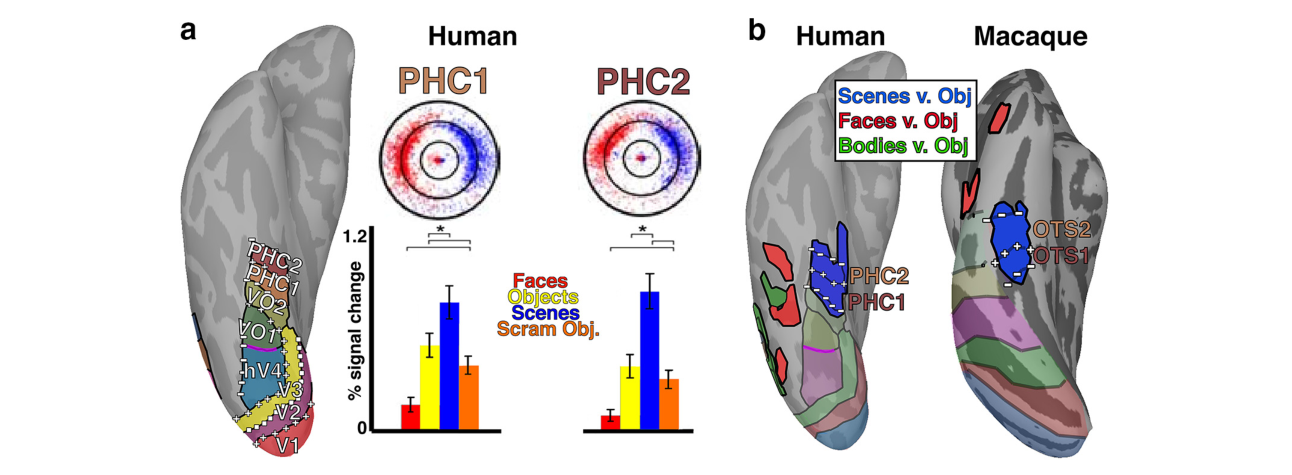
原文图注:Figure 11. Functional organization of human ventral temporal organization. a, Visual field maps PHC1/2 in humans have a similar topographic organization to OTS1/2 in monkey. Similar to OTS1/2, PHC1/2 represent peripheral contralateral space and selectively respond to scene images compared with other image categories. b, Comparison of ventral temporal functional organization in humans and macaques. A focal region selectively responsive to scenes versus objects overlaps with PHC1/2 similar to OTS1/2. Face-and body-selective regions in the human are located lateral to both OTS and PHC in monkeys and humans, respectively. Human data originally published by Arcaro et al. (2009).
这是点题图:a 排出人类 PHC1/2,组织方式与 OTS1/2 如出一辙——对侧周边表征、场景偏好、沿前后轴从下视野到上视野再反转;b 并排比较两物种的腹侧颞叶,场景区(人 PPA、猴 LPP)分别压在各自的视野图谱上,而面孔区和身体区都位于图谱的外侧。作者据此主张 OTS↔PHC、LPP↔PPA 的物种同源关系,支撑结论 5。
讨论
作者把发现放在两个框架里解读。其一是组织原则:视网膜定位并非止步于后部皮层,而是贯穿包括腹侧视觉层级晚期在内的整个视觉系统——大规模的偏心距偏置(中央表征在外侧、周边在内侧)此前已在人和猴 IT 有报道(Hasson et al., 2002; Lafer-Sousa & Conway, 2013),而 OTS1/2 这样的独立视野图谱则进一步把类别域"锚"在前后轴的特定位置上。其二是跨物种同源:凭借极角组织、周边/上视野偏好和场景选择性的逐条对应,作者论证猕猴 LPP 即人类 PPA 的同源区,且背侧场景区(mTOS 与 TOS/OPA)同样在两物种间保持一致;他们同时谨慎地指出,约 2500 万年的独立演化完全可能在这些区域内叠加新的功能特化,同源不等于 1:1 功能对应。
作者也如实交代了局限:样本只有 4 只(类别效应虽在每只个体上都可见,群体推断仍偏弱);上视野偏置未过显著性检验,需要更多半球的数据;AIT 有视觉激活却无清晰相位组织,可能是真无组织,也可能是映射刺激对大感受野、复杂选择性的神经元本就不适用;垂直子午线在部分半球缺失,作者解释为 fMRI 采样偏差(体素感受野大、皮层区小)而非组织缺失。最有意思的是发展视角的延伸讨论:这批猴扫描时仅 1.5 岁,其中两只还是被限制接触特定类别的异常养育个体,但视野图谱组织与正常猴无异——作者据此(并援引其实验室出生时即存在原型视网膜组织的新工作)提出,周边偏向的 OTS1/2 组织可能在出生时乃至产前就已确立,随后引导场景选择性(依赖周边视觉经验)在特定位置聚集成域。
一句话总结
在我看来,这篇论文最妙的不是"又找到两个区",而是把"哪里"变成了跨物种比较的硬通货:类别功能域的位置不再是解剖巧合,而是可以被视野图谱的边界预测的。读的时候要留意,"场景区偏周边视野"在这里只是相关性证据,作者用发展数据给了一条合理的因果叙事(图谱先于类别域形成),但机制仍是推测——不过这已经比"IT 无组织"的旧观念前进了一大步。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig10: 提取质量
good,对齐度full,识别面板[] - Fig11: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[] - Fig7: 提取质量
good,对齐度full,识别面板[] - Fig8: 提取质量
good,对齐度full,识别面板[] - Fig9: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: {'classification': 'INTERPRETATION', 'md_text': '猕猴 LPP 是人类 PPA 的同源区。', 'assessment': '这是作者明确提出并由视网膜定位、场景偏好和解剖位置共同支持的同源假说,但不是直接实验证实的同源关系,也不意味着1:1功能对应。'} -> 评注: 这是作者明确提出并由视网膜定位、场景偏好和解剖位置共同支持的同源假说,但不是直接实验证实的同源关系,也不意味着1:1功能对应。
- 审校纠偏: {'classification': 'INTERPRETATION', 'md_text': '视野图谱的边界可以预测类别功能域的位置。', 'assessment': '原文提出这种组织性关系,且多个类别域与多个视野图谱稳定重叠;但本研究提供的是空间对应证据,不是前瞻预测检验或因果操纵。'} -> 评注: 原文提出这种组织性关系,且多个类别域与多个视野图谱稳定重叠;但本研究提供的是空间对应证据,不是前瞻预测检验或因果操纵。
- 审校纠偏: {'classification': 'OVERCLAIM', 'md_text': '类别功能域的位置不再是解剖巧合。', 'assessment': '数据支持稳定的空间关联,但未排除共同发育约束、连接结构或其他组织原则同时造成这种关联。应改为“这种稳定重叠不太可能仅由随机空间邻近解释”。'} -> 评注: 数据支持稳定的空间关联,但未排除共同发育约束、连接结构或其他组织原则同时造成这种关联。应改为“这种稳定重叠不太可能仅由随机空间邻近解释”。
- 审校纠偏: {'classification': 'INTERPRETATION', 'md_text': '出生前形成的周边视网膜组织随后引导场景选择性聚集。', 'assessment': '这是作者结合幼年猴、异常视觉经验和另一项出生期研究提出的发展机制。本文没有纵向追踪场景域形成,也未操纵OTS视网膜定位,因此不能作为本研究直接证明的因果机制。既有解读末段已基本正确地把它限定为推测。'} -> 评注: 这是作者结合幼年猴、异常视觉经验和另一项出生期研究提出的发展机制。本文没有纵向追踪场景域形成,也未操纵OTS视网膜定位,因此不能作为本研究直接证明的因果机制。既有解读末段已基本正确地把它限定为推测。
- 补充要点: : (第 10 页)
- 补充要点: : (第 6 页)
- 补充要点: : (第 15 页)
- 补充要点: : (第 14 页)