该论文是一篇结合非人灵长类单细胞电生理证据与人类认知神经科学争论的理论综述。作者梳理了人类研究中支持面孔加工独立机制的各项行为与神经指标,并引入经过系统人工物体辨别训练的猕猴下颞叶电生理记录新证据:在经历长期下位辨别训练后,猕猴颞下皮层出现了调谐特性与面孔选择性神经元高度相似的人工物体特异性神经元。文章提出了区分“解剖特异性”(specificity)与“计算独特性”(uniqueness)的理论框架,主张面孔加工系统展现出的构型与视点敏感性并非面孔专有的神经计算特权,而是高级视觉系统在特定同质类别与下位辨别经验塑造下的适应性产物。
研究背景
关于面孔识别是否依赖专属机制的学术争论涉及皮层定位与神经计算两个不同层面。人类临床面孔失认症的双重分离、面孔倒置效应、整体/构型整合现象以及梭状回面孔区(FFA)的功能激活,常被用作支持独立面孔模块的证据;而在猕猴下颞叶(IT)与上颞沟(STS)记录到的面孔选择性神经元,则提供了细胞尺度的观察基础。然而,在皮层特定区域检测到对面孔刺激的调谐反应,并不等同于该区域采用了与其他视觉物体本质不同的神经计算规则。人类研究侧重于宏观脑区或行为表现,非人灵长类电生理研究侧重于单单元放电特征,二者在任务范式、经验积累及神经采样尺度上存在差异,不能单凭“面孔选择性”的表观标签简单等同。
知觉专长研究逐步对经典面孔特异性指标提出了替代解释:针对非面孔物体的长期辨别训练同样可诱发倒置干扰效应与构型敏感性,部分面孔失认症个体在区分高度相似的非面孔同质个体时亦伴随障碍。这些证据提示,面孔识别的生理特征需要更严格的跨类别比较:在控制了类内几何相似度、分类层级(下位个体识别)及训练经验的前提下,面孔细胞所具备的生理调谐特性是否具有独占性。利用计算机生成的铁丝状(wire-like)与变形虫状(amoeba-like)人工几何构型训练动物,为回答这一问题提供了条件。这类人工物体具备高度类内同质性,支持系统的视点旋转与部件增删,从而能够在单细胞水平上精确对比物体选择性、视点敏感性及构型依赖性。
该文据此将解剖特异性与计算独特性解离处理,结合受训猴在下颞叶记录到的单细胞数据,评估面孔所表现出的神经编码规则能否由非面孔同质经验所塑造。实验中观察到的视点依赖性调谐、对尺度平移的耐受性以及对完整构型的不可分割性,为经验塑造计算特化提供了机制线索。需要指出的是,细胞调谐特性的相似性并不等同于二者在解剖定位上完全重叠,亦不证明两类刺激完全共用同一群神经元;微电极记录的采样偏差及未系统测试面孔反应等技术局限,限制了绝对定位推断;文章提出面孔是“默认的特殊类别”(default special class),主要反映了一种基于发育经验与任务要求的解释模型,而非否认遗传演化对视觉皮层初始连接的塑造。
研究思路
作者借鉴 Hay 与 Young(1982)的认知分析模型,将面孔“特殊性”拆解为两个独立的科学命题:其一是解剖特异性(specificity),即大脑是否存在专门局限处理面孔信息的独立解剖区域;其二是计算独特性(uniqueness),即面孔识别是否基于完全不同于一般物体识别的神经计算法则。作者采取的论证策略分为两步:首先系统回顾猕猴面孔加工网络的解剖亚区及单细胞反应特性(如上颞沟上唇神经元侧重注视方向与表情,下颞叶 TEa/m 亚区神经元表征个体身份),并探讨其与人类 STS 及梭状回面孔区的同源对应关系;其次,围绕计算独特性命题,引入受训猕猴前颞下皮层的单细胞电生理数据,证明经过高强度下位分类辨别训练后,皮层神经元能够发展出与面孔细胞高度平行的物体选择性与视点调谐特性。最后,作者对比了人类功能成像与猴单细胞记录在解剖定位结论上的表观分歧,提出了结合跨物种影像技术的检验方向。
方法
综述文献分析整合了人类行为与神经影像研究,其实证数据核心源自 Logothetis 与 Pauls(1995)以及 Logothetis、Pauls 与 Poggio(1995)在猕猴上开展的单细胞微电极记录。实验使用两类高度同质的人工合成三维几何构型:铁丝状(wire-like)物体由多个折角柱体连接而成,变形虫状(amoeba-like)物体由平滑曲面形变生成(图 2)。训练与测试流程基于操作条件反射:动物维持中央注视后,在学习阶段呈现目标物体的特定“初始视点”(0° 视点);随后进入测试辨别阶段,每组包含连续 10 个测试试次,音频提示后呈现由三维数学模型绕垂直、水平及对角线四轴旋转生成的测试视角(目标物或非同构/同构干扰物),动物需在目标物出现时按压右侧杠杆,在干扰物出现时按压左侧杠杆以获得液体奖赏。
在动物达到稳定辨别标准后,研究者在其前下颞叶皮层——重点集中在前内中颞沟(anterior mediotemporal sulcus, AMTS)周围皮层——进行单单元细胞外电生理记录。为解析神经元调谐的关键几何特征,Pauls(1997)采用了刺激逐步分解方法:系统性地剥离、移位或遮挡铁丝状物体的局部线段,测试神经元放电反应随局部及全局构型破坏的衰减轨迹。作者明确分析了单细胞电生理采样的技术局限:微电极仅能离散记录局部放电单元,难以实现全皮层无偏均匀采样;电极推进路径往往受限于先验反应筛选;且测得的选择性指标直接依赖于测试图片库的构成比例。
主要结果
-
行为识别表现出强烈的视点依赖性与空间泛化边界。在行为测试中,受训猴对学会的人工物体的辨别准确率表现出明显的视点选择性:当物体在深度轴上的旋转角度偏离训练视点约 40° 以内时,动物能够实现知觉泛化;超过该角度后辨别成绩跌落至随机概率水平。部分铁丝状物体在二维投影具有镜像对称性的角度下能够发生错误辨识。此外,二维平面内的旋转在初期表现为视点敏感,但经过多次反复辨别后可逐渐转化为平面旋转不变性。
-
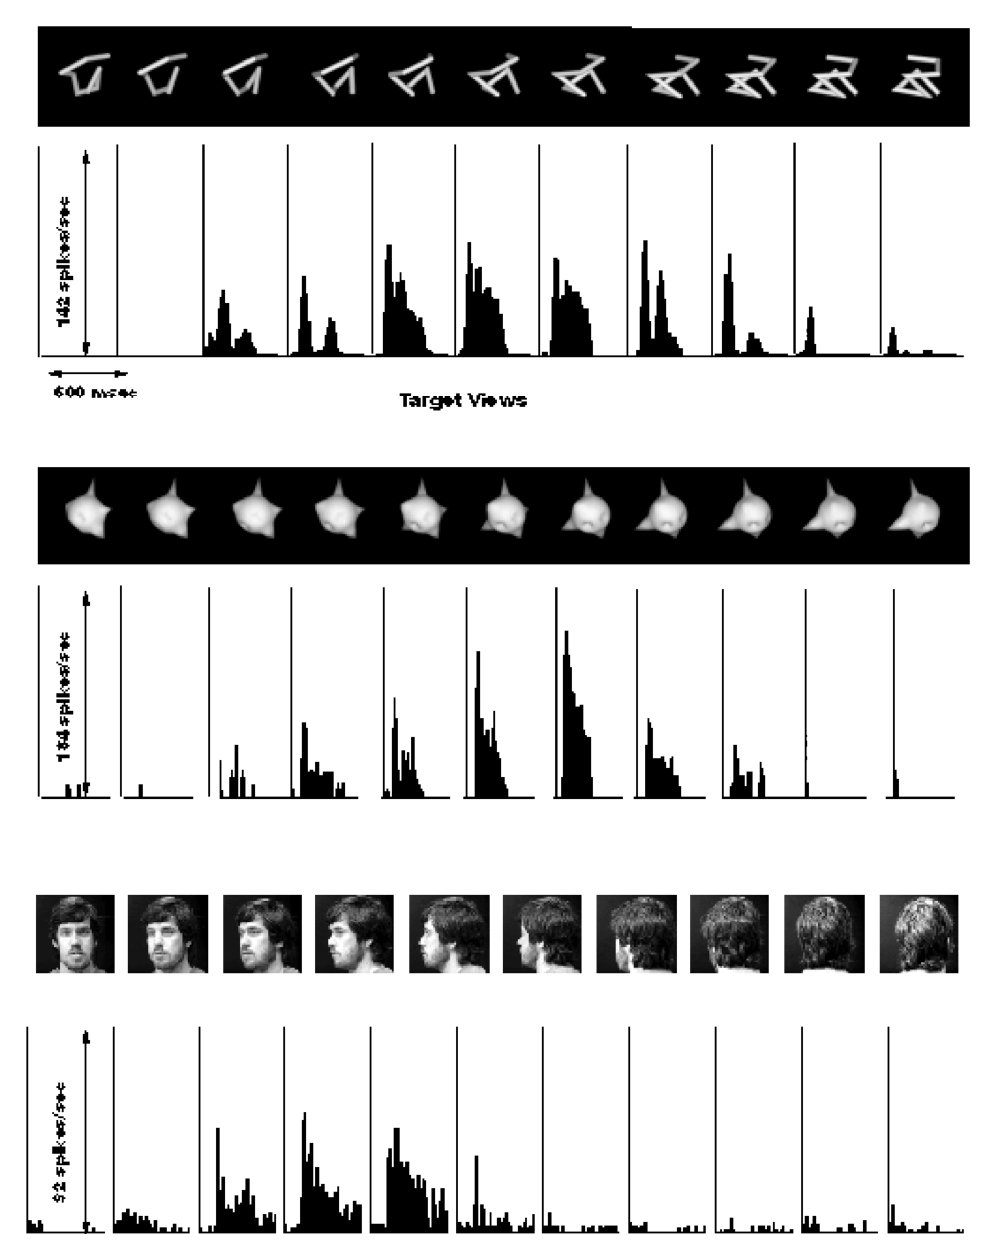
前颞下皮层神经元表现出与面孔细胞高度相似的调谐特征。在前内中颞沟(AMTS)背侧及外侧皮层记录到一批对刚习得的人工物体及其特定训练视点具有高度选择性的单神经元:该类细胞在中央 5° 视野范围内的空间平移下保持放电调谐,对刺激尺寸缩放(可达 4 倍线性缩放)具备耐受性,但对三维视点旋转高度敏感,其调谐曲线形态与经典面孔选择性神经元高度吻合(图 1 标定记录位点,图 3 展示放电调谐曲线)。
-
刺激几何分解证实存在构型依赖性神经元。对铁丝状物体的逐步简化测试显示记录单元存在两类亚群:一类神经元可被刺激中的局部孤立特征(如特定空间夹角)单独激活;另一类神经元则对完整的全局空间配置表现出不可分割的敏感性,仅剥离单一局部线段即导致神经元动作电位发放率出现系统性崩塌(图 3)。这一特性表明,原本被视为面孔专属的全局不可分割构型表征,同样存在于经历下位训练的人工几何物体神经元中。
-
非人灵长类视觉通路的功能解剖分野。上颞沟(STS)上唇区域的神经元多侧重表征注视方向与动态表情(对面孔刺激的敏感度高于几何图形 2–10 倍,仅约 10% 的细胞编码个体身份),损毁该区域导致面部注视感知障碍而不破坏身份识别;TEa/m 亚区的神经元主要编码面孔个体身份,虽对视网膜平移位置表现出泛化,但对平面旋转 90° 的刺激其放电衰减超过一半,该区域被视为人类梭状回面孔区(FFA)在解剖进化上的可能同源结构。
-
任务层级对视点调谐的行为调制。动物行为数据显示,面对同一批测试刺激,当要求动物执行基本水平分类(区分铁丝状物还是变形虫状物)时,辨别表现表现出视点不变性;而当任务要求切换为下位分类(在两个微观铁丝状个体间辨别)时,识别表现明确呈现出视点依赖性,印证了分类层级对知觉计算模式的直接影响。
图注解读
图 1 · 猴脑侧面观与 wire 选择性神经元的记录位点
原文图注:Fig. 1. Lateral view of a monkey's brain and location of the wire-selective neurons. A. Lateral view with the superior temporal sulcus (STS) opened up to illustrate various visual areas in the temporal pathway. V1, primary (striate) cortex; V2, V4, second and fourth visual areas; MT (or V5) middle temporal visual area; PMTS, posterior mediotemporal sulcus; AMTS, anterior mediotemporal sulcus; TEa/m areas within the inferotemporal cortex; TPO1/2 areas within the STS. B. Histological slice showing the anatomical site in which the wire/amoeba selective neurons were found: ec, entorhinal cortex, 35/36 areas 35 and 46 respectively (perirhinal cortex); rs, rhinal sulcus. The vertical line depicts the position of the coronal section shown in (B). The arrows depict approximately the borders of the corresponding areas.
图 A 为展开上颞沟(STS)后展示颞叶腹侧通路的脑解剖侧面观,标注了初级视皮层(V1、V2、V4)、运动区(MT/V5)、后内中颞沟(PMTS)、前内中颞沟(AMTS)以及 TEa/m 和 TPO 区域。图 B 为组织学冠状切片,黑色标记标定了记录到铁丝/变形虫特异性神经元的具体解剖位置:位于 AMTS 周围皮层及内嗅皮层(ec)、鼻周皮层(35/36 区)交界处。该位置相比经典面孔选择性细胞聚集区更为前腹侧,构成了讨论专长细胞与面孔细胞解剖共定位关系的重要证据。
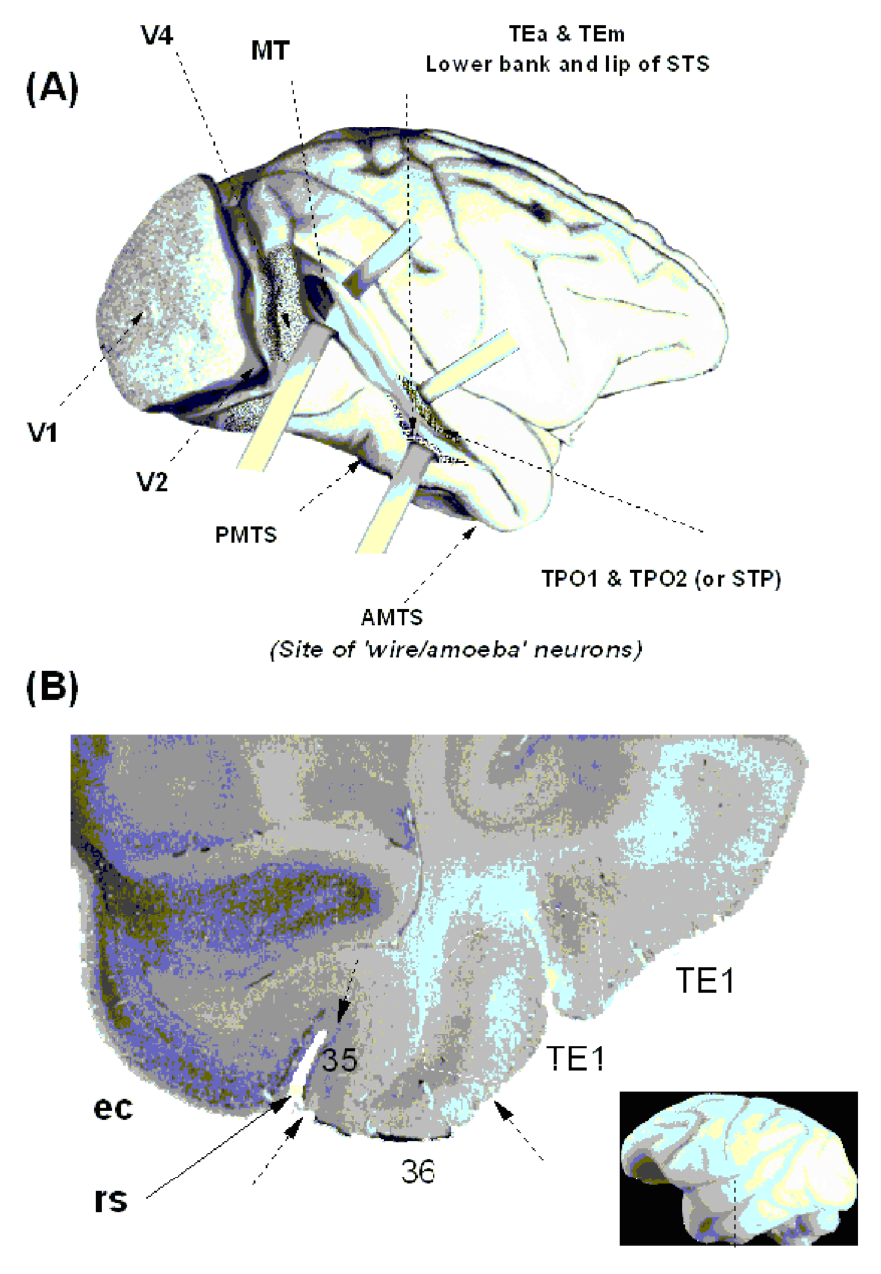
图 2 · wire 与 amoeba 类物体刺激示例
原文图注:Fig. 2. The wire- and amoeba-like objects used to study the neural representations that may be employed for recognising objects at the subordinate level. The exemplars of both classes are different barring the two within each white rectangle, which are two views of the same objects 90° apart. Recognising individual exemplars of these classes is not unlike recognising individual exemplars of other homogeneous natural classes. The wolves in the last row are all different barring those within the white rectangle. Again, the latter are two views of the same animal 90° apart. In each case, identification of a member requires excessive practice.
展示用于测试下位个体识别的铁丝状与变形虫状刺激图库。白色矩形框内展示同一物体相隔 90° 的两个不同投影视点;图表底端并列展示狼群个体的照片作为同质生物类别的类比。图例表明,这些人工合成物体共享相同的一阶拓扑结构,个体区分依赖微观局部特征及其空间相对位置,在计算约束上模拟了自然面孔类内的几何同质性。
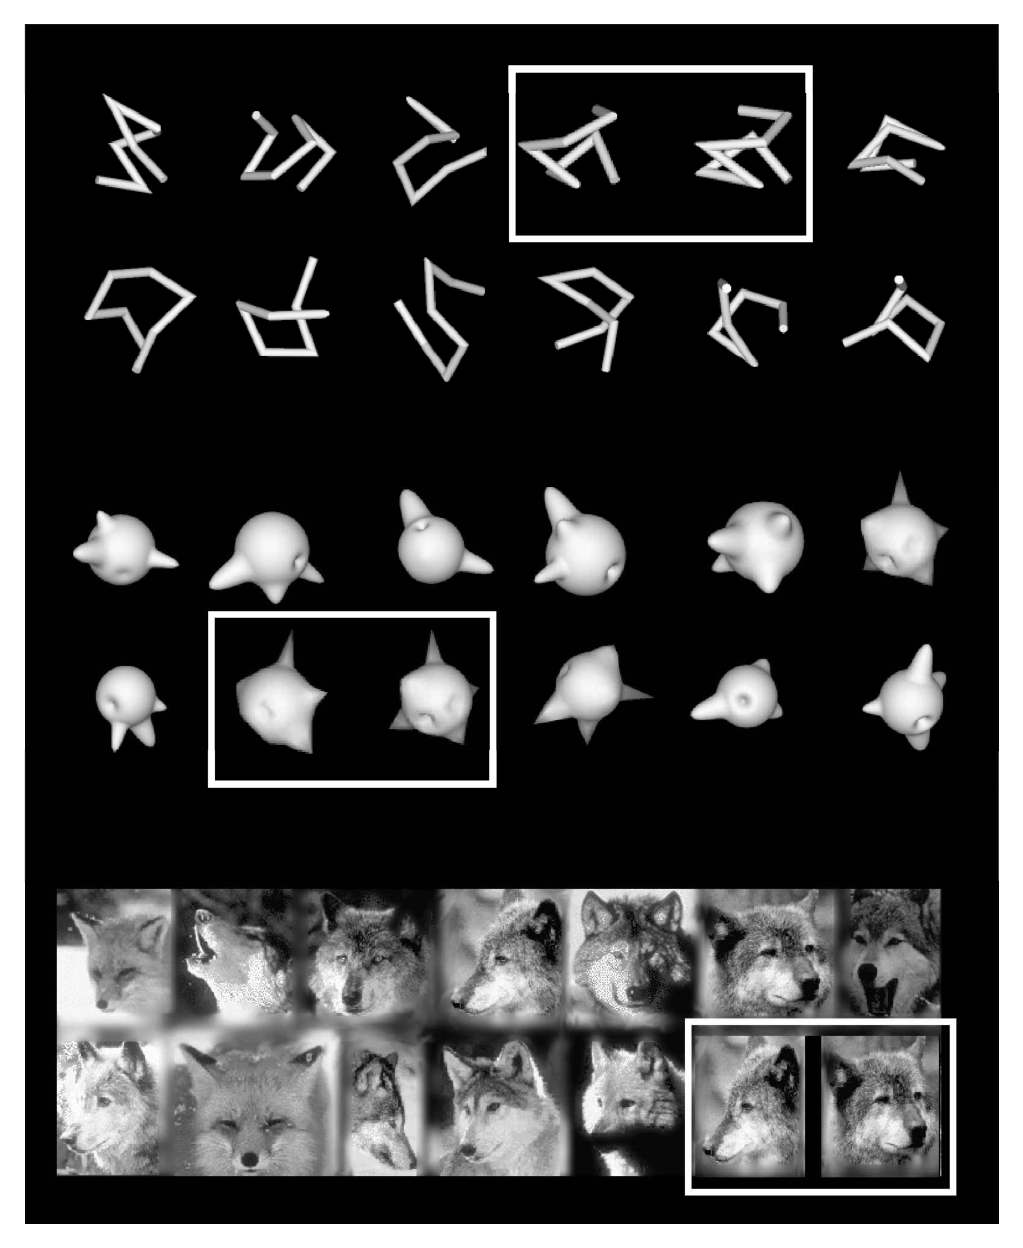
图 3 · 颞下皮层单细胞反应:wire、amoeba 与面孔细胞的比较
原文图注:Fig. 3. Responses of single units in the inferior temporal cortex of the monkey. The upper row shows responses to wire-like objects and the middle row to amoeba-like objects. The neuron responds best to a recently learned object-view and its response diminishes as the object is rotated in depth. For objects that the monkey could recognise from all vantage points more than one unit was found that responded to different views of the same object. Systematic decomposition of the wire objects showed that while some neurons could also be activated by parts of the object (e.g. an angle), others required the entire configuration, strongly diminishing their response even when only a single wire-segment was removed (Pauls, 1997). The bottom row shows responses of a face-selective neuron recorded in the upper bank of the STS. "Wire" and "amoeba" cells display view tuning similar to that of the face cells.
对比展示前下颞叶神经元与 STS 面孔神经元的动作电位反应直方图与视点调谐曲线。顶行展示铁丝状物体敏感神经元,中行展示变形虫敏感神经元,底行展示 STS 上唇记录的面孔选择性神经元。神经元在特定习得视点呈现峰值放电,随物体深度轴旋转放电单调衰减。图表展示了人工物体专长细胞与天然面孔神经元在视点选择性及不可分割构型依赖性上的调谐一致性。
讨论
作者在讨论中提出,面孔细胞在猕猴下颞叶皮层占据较高比例(约 20%),可能源于面孔是动物在其自然生存史中少数需要长期进行个体水平微观辨识的同质视觉类别;当下颞叶系统经历类似的高强度下位辨别训练时,能够对任意同质人工物体形成具备视点敏感性与构型不可分割性的神经调谐。因此,在神经计算维度上,面孔加工系统所展现的特性并不构成独立独特的算法逻辑,面孔属于视觉系统经验发育中的“默认特殊类别”。
作者分析了当前跨物种证据在空间定位上的分歧:人类功能磁共振成像(fMRI)研究提示面孔与受训非面孔专长物体激活了高度重叠的梭状回解剖区域,而猕猴单细胞记录显示铁丝状物体选择性神经元聚集于较面孔区更为靠前的 AMTS 周围皮层。作者指出,fMRI 的宏观体素信号反映的是数十万神经元的平均血氧代谢,无法直接断定区内单细胞的绝对共用;而微电极记录受限于电极穿刺路径与先验刺激筛选策略,尚未在 AMTS 区域系统性测试面孔刺激,亦未在传统面孔斑块(face patches)内穷尽人工物体的调谐反应。因此,确立两种表征在微观皮层环路中的具体解剖拓扑关系,需要结合非人灵长类高场强功能磁共振与靶向电生理记录进行系统验证。
一句话总结
该文通过整合猕猴单细胞记录与人类知觉专长证据,证明对同质人工物体的长期下位辨别训练能够在下颞叶诱发出与面孔细胞调谐特征高度平行的神经反应,表明面孔识别的构型与视点敏感性源于高级视觉系统在经验塑造下的计算表征,而非绝对独立的专用硬件机制。