这项初步研究用 [18F]FDG PET 分别在觉醒与首个快速眼动(rapid eye movement, REM)睡眠期扫描抑郁病人和健康对照,把"从觉醒到 REM 的脑葡萄糖代谢变化"当作探查边缘系统功能状态的负荷测试。作者基于自己与他人的健康人 REM 成像提出假设:抑郁症的 REM 睡眠异常反映该睡眠状态下边缘与旁边缘(paralimbic)前脑结构的功能失调。结果印证了这一图景——健康人在 REM 期上调的"前旁边缘激活轴"(膝下/膝前扣带回、右海马旁回、右岛叶)在病人身上缺失甚至反向,病人却在顶盖区与左半球感觉运动、内侧颞叶结构出现过度的 REM 增幅。样本只有 6 对 8,作者也以"preliminary"自许,但范式本身对后来的抑郁症睡眠成像有开创意义。
研究背景
情感障碍病人的 REM 睡眠改变已被可靠地反复观察(引用 Lauer、Benca、Nofzinger 等 1991–1996 年的系列工作),并与临床特征相关联;但解释这些改变的病理生理模型此前几乎都聚焦于调控 REM 与非快速眼动(NREM)睡眠全局状态的因子——源于脑干对皮层觉醒状态调控的实验室观察,以及人类昼夜节律与稳态机制的描述(Gillin、Borbely & Wirz-Justice、McCarley、Kupfer & Ehlers 等)。换言之,抑郁症的 REM 异常当时被放在"脑干状态调节器出了问题"的框架里理解,前脑本身的角色是空白。
转折来自新近的功能脑成像:健康人 REM 期前脑并非弥漫性均匀激活,而是有明确的区域特异性——葡萄糖代谢或血流的显著增加集中在位于前部的边缘与旁边缘结构,包括膝下与膝前前扣带回(anterior cingulate cortex,subgenual 与 pregenual)、杏仁核(amygdala)和岛叶(insular cortex),作者将这条带称为"前旁边缘 REM 激活轴"(anterior paralimbic REM activation axis,源自其 1997 年的 FDG PET 研究)。这提示 REM 睡眠的一项重要功能是把新皮层功能与基底前脑-下丘脑的动机和奖赏机制整合起来,也契合"抑郁等精神疾病的 REM 改变反映边缘旁边缘结构失调"的观点。缺口在于:此前从无抑郁症病人 REM 期脑葡萄糖代谢的任何报告——本研究正是要补上这一格,用"REM 探针"评估那些参与上述整合的脑结构系统在抑郁中的功能状态。
研究思路
作者的设计逻辑是三层递进的。第一层,组内比较:对健康组和抑郁组各自做"觉醒 vs REM"的相对区域代谢(rCMRglu)统计参数图(statistical parametric mapping, SPM)对比,看每组从觉醒进入 REM 时哪些结构上调、哪些下调——健康组的结果预期应复现已知的"前旁边缘激活轴"。第二层,组间交互:用"条件 × 组别"交互检验两组变化模式的差异处——某结构若在健康人上调而在病人不动甚至反向,或在病人暴增而在健康人平稳,就是抑郁相关的功能失调候选点。第三层,事后感兴趣区分析:对交互显著的结构回查两组在觉醒、REM 两个独立状态下的组间差异,确定交互究竟源于方向反转还是基线错位。为了确保代谢差异不是睡眠结构差异的化身,作者还用未受扰动的整夜 EEG 睡眠记录做了临床与睡眠对照——基线夜的睡眠连续性与分期应两组相当,差异只允许出现在 REM 密度这类相位性指标上。
方法
被试:6 名单相抑郁病人(RDC 重性抑郁,仅纳入内源性/忧郁型、原发性亚型;HRSD 前 17 项 ≥15 分,实际中位 23;Beck 问卷中位 24;全部报告昼夜心境波动),8 名健康对照(HRSD ≤6);年龄 30–50 岁、均右利手、按个体匹配(5 岁以内);女性居多(病人 5/6,对照 6/8)。另有两名病人和两名对照因注射同位素后未能维持 REM 睡眠至少 12 分钟而被排除。所有被试至少停用影响情绪或睡眠的药物 2 周(氟西汀 8 周),夜检药筛排除用药饮酒者;排除睡眠呼吸暂停(第一晚筛查 AHI≥5)、周期性肢体运动指数>5、精神分裂症、物质滥用史、双相与精神病性抑郁等;对照还需从未达到重性抑郁的 SADS/RDC 标准。
流程共三晚 EEG 睡眠记录(第 1 晚筛查呼吸暂停与肢体运动,第 2 晚为基线夜;第 1、2 晚经"墙上打孔"技术输注生理盐水以适应第 3 晚的留置管注射)。觉醒 PET 在第 2 晒睡眠之后的早晨进行:多导睡眠图监测下保持 20 分钟觉醒(仰卧、闭眼、耳不塞、灯光调暗,与睡眠研究同一卧室),此前有 15 分钟适应期;REM PET 在第 3 晚,于首个 REM 期起始(首次快速眼动联合肌电、眼电与脑电指标判定)后数秒内经留置管静注 4 mCi [18F]2-氟-2-脱氧-D-葡萄糖([18F]FDG),摄取 20 分钟后被试起身,以轮椅转运至扫描仪,注射后 60 分钟起做 30 分钟发射扫描和 15 分钟棒窗透射扫描——两种条件在摄取期之后的所有流程完全一致,以便个体内比较相减。设备为 Siemens 951 PET(二维采集,31 个 3.375 mm 厚横断面,约 8 mm 半高宽分辨率);1.5 T MR(T1 轴位)用于配准:Woods 自动算法做 PET-PET 与 PET-MR 配准,再经实验室标准 MR 方程转换到 Talairach 空间,配准误差要求小于 1 像素。统计分析用 SPM96:10 mm 平滑,ANCOVA(协方差分析)校正全局代谢——所有报告值均为"归一化"数据(全脑均值人为定为 50),且全局效应按组分别校正。显著性阈值定在 P<0.001(本研究为探索性质、未做多比较校正,实验室既往经验表明该阈值足以控制假阳性),仅报告最大显著像素被连续变化区包围的结构;图形展示阈值放宽到 P<0.01。交互显著区再做事后 ROI 组间比较;人口学、临床与 EEG 指标用 Wilcoxon 秩和检验与 Fisher 精确检验。
主要结果
- 临床与 EEG 对照符合设计预期。两组在年龄、性别、受教育程度等人口学上相当;基线夜(第 2 晚)的睡眠连续性与一般分期无显著差异;差异集中在相位性 REM 指标——手工计分的 REM 密度(REM density)1.55 vs 0.96(P=0.02)、自动计数的 REM 计数密度 9.5 vs 4.9(P=0.04)、整夜 REM 计数 1121 vs 621(P=0.06,趋势)。PET 夜两组 REM 潜伏期、注射时 REM 期时长(摄取期内 REM 分钟数 16 vs 15)等均无显著差异;觉醒扫描的注射时刻(醒后 167±75 与 175±38 分钟)两组相当。
- 健康对照组:REM 较觉醒 rCMRglu 显著增加的结构有四个——右海马旁回(parahippocampal gyrus,峰值 Z=4.30)、含大部分下丘脑的大区域(Z=3.52)、自膝下前扣带起始向背侧弓形延伸至膝前前扣带回及内侧前边缘/前额叶皮层的汇合区(两个峰值 Z=3.16 与 3.03)、右岛叶(Z=3.11);唯一显著减少区在额叶皮层 Brodmann 10 区(Z=3.34)。
- 抑郁病人组:最显著的增加区是嘴侧顶盖区(tectal area,含前顶盖、上丘与导水管周围灰质,Z=4.63,因该结构小、新异而逐一叠加个体 MR 像验证);其次为覆盖左初级感觉与运动皮层的大汇合带(Z=4.23)、左杏仁核延伸至钩回(uncal gyrus,Z=4.10)、下丘脑(Z=4.10)、左下托复合体(subicular complex,Z=3.70)。显著减少区有三:枕叶舌回(lingual gyrus)为主的大的双侧汇合区(Z=4.38)、右侧岛叶皮层尾侧深部(最可能为屏状核 claustrum,Z=3.61)、右丘脑后部(最可能为枕核 pulvinar,Z=3.52)。
- 组间交互(本研究核心发现):健康人增幅大于病人的结构有三个——右海马旁回(Z=4.21;对照 62.7→71.8,病人 70.0→67.4)、右岛叶(Z=3.52;对照 69.0→76.6,病人 74.8→69.9)、膝下与膝前前扣带回(Z=3.36;对照 63.7→69.9,病人 67.5→62.6)。也就是说,健康人 REM 期上调的前旁边缘激活轴皮层成分,在病人身上不增反降;交互峰值坐标 (0,38,12) 与 Mayberg 等报告的抑郁异常区高度对应,作者另取膝下前扣带回坐标 (0,24,-8) 对应 Drevets 等报告的异常区(事后分析还发现觉醒期病人前扣带上方一大区低代谢,Z=3.67)。
- 病人增幅大于对照的结构有六个,多数呈"方向反转"模式:左感觉运动皮层(Z=4.00;病人 69.6→77.5,对照 76.4→73.8)、顶盖(Z=3.56;病人 44.3→55.6,对照 49.6→51.2,为大幅单向增加 vs 平稳)、左下颞叶(Z=3.54;病人 55.9→62.9,对照 63.5→59.1)、左钩回(Z=3.53)、左额叶 BA10(Z=3.18)、左下托复合体(Z=3.16)。事后 ROI 分析补充:觉醒期病人左下颞叶已低于对照(Z=3.00,P=0.001),左杏仁核(含左钩)与右海马旁回高于对照;REM 期病人左感觉运动皮层高于对照(Z=3.95),右直回低于对照(Z=3.63)。
图注解读
图 2 · 抑郁组从觉醒到 REM 的代谢升降图谱
原文图注:Fig. 2. Brain sections at 26 transaxial levels. Highlighted areas in the yellowrred spectra reveal pixels where there was an increase in rCMRglu from waking to REM sleep for depressed subjects at the P-0.01 level of significance. Highlighted areas in the blue spectra reveal pixels where there was a decrease in rCMRglu from waking to REM sleep for depressed subjects at the P-0.01 level of significance. Background MR images are from an individual subject. Both the MR images and the statistical images have been normalized into the same Talairach space.
(注:图注中"yellowrred"为 yellow/red、"P-0.01"为 P<0.01 的 PDF 提取伪迹。)
这是 26 个横断面层面的脑切片图:背景是单个被试的 MR 像与统计图共同归一化到 Talairach 空间后的叠加。黄-红色谱标出抑郁病人 REM 较觉醒 rCMRglu 增加(P<0.01 图示阈值,正文统计阈值 P<0.001)的像素,蓝色谱标出减少的像素。读图方法是沿层面自上而下追踪两套色斑:黄色激活带对应结果第 3 条中病人的上调结构——最醒目的是中线深处的顶盖区、左半球的感觉运动皮层带、左杏仁核/钩回、下丘脑与左下托;蓝色失活区对应枕叶内侧的舌回、右侧岛叶尾侧深部(屏状核)与右丘脑后部(枕核)。这张图直观呈现了抑郁病人在 REM 期"该处不亮、别处过亮"的空间格局,是主要结果第 3 条的图像证据。
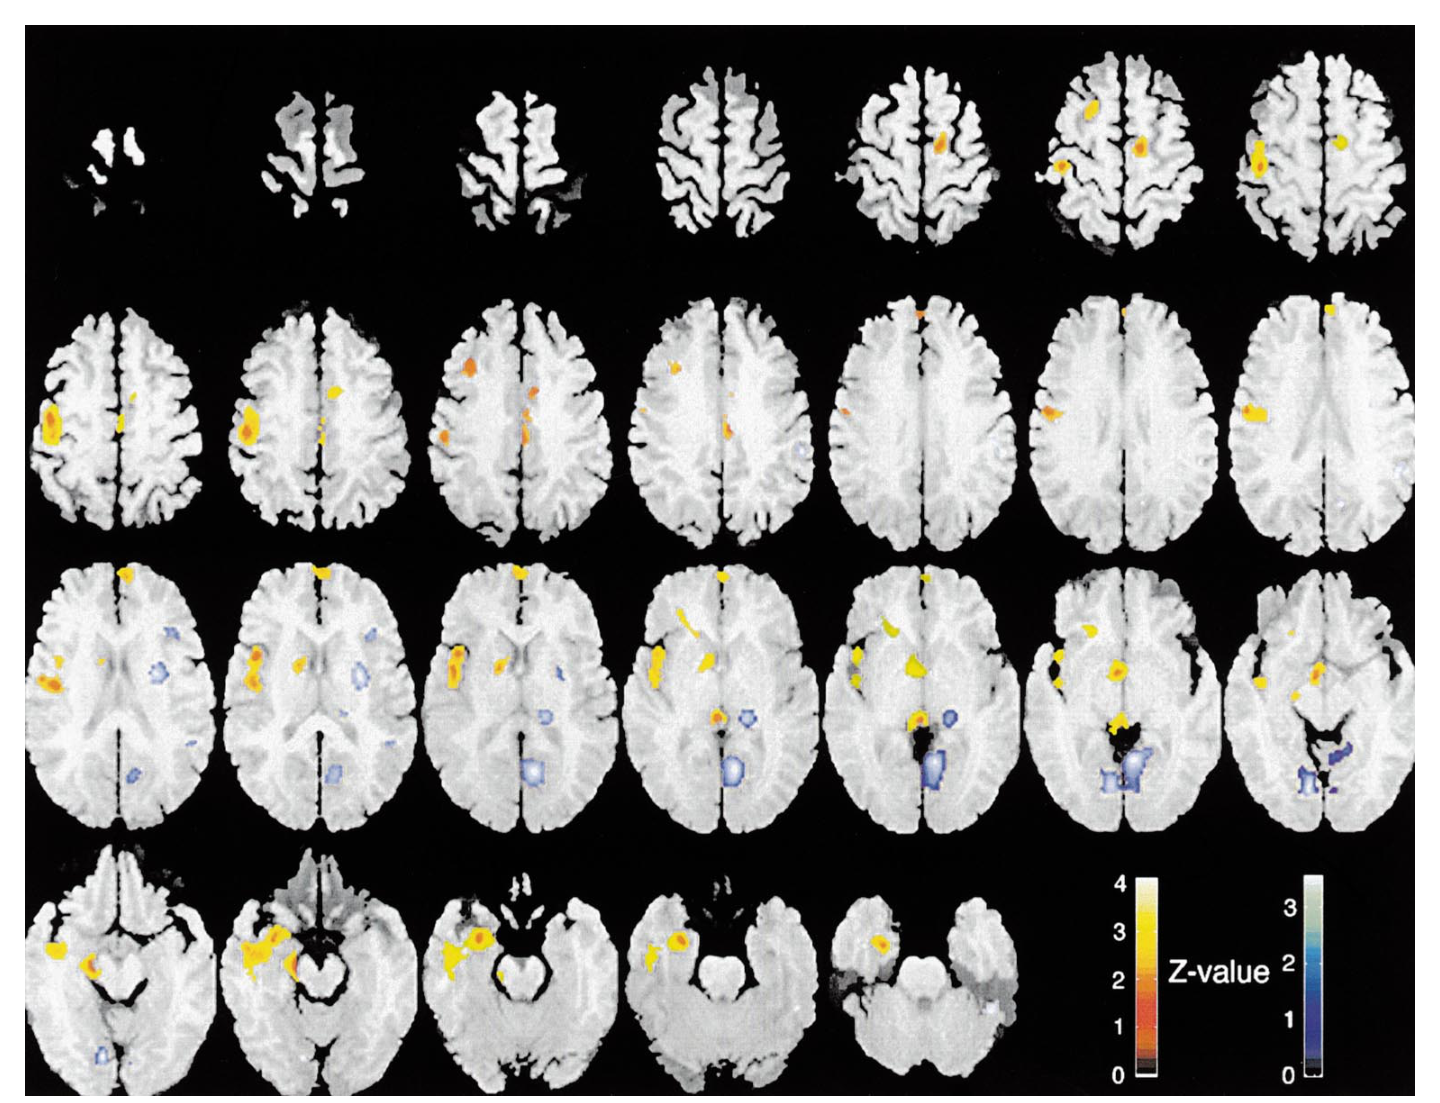
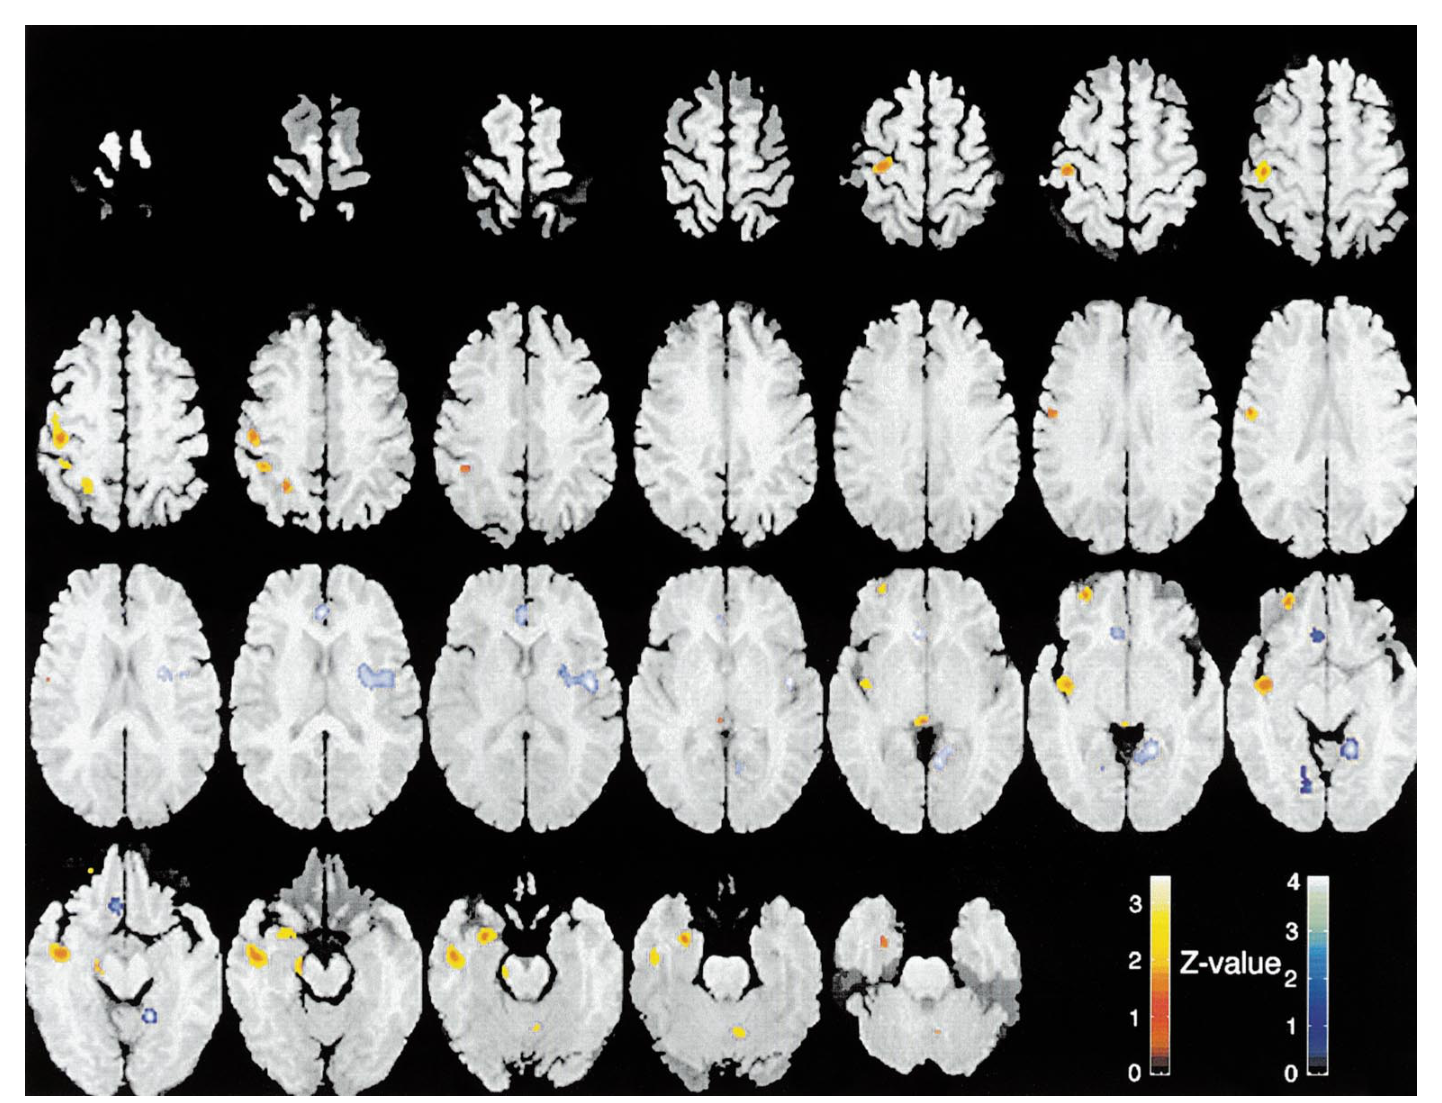
图 3 · 组间交互图谱:病人的 REM 反应哪里异于健康人
原文图注:Fig. 3. Brain sections at 26 transaxial levels. Highlighted areas in the yellowrred spectra reveal pixels where the change in rCMRglu from waking to REM sleep was significantly greater for depressed subjects than for healthy subjects at the P-0.01 level of significance. Highlighted areas in the blue spectra reveal pixels where the change in rCMRglu from waking to REM sleep was significantly less for depressed subjects than for healthy subjects at the P-0.01 level of significance. Background MR images are from an individual subject. Both the MR images and the statistical images have been normalized into the same Talairach space.
同样为 26 个横断面层面的叠加图,但统计量换成了"条件 × 组别"交互:黄-红色谱是从觉醒到 REM 的变化显著大于健康人的像素(病人过激处),蓝色谱是变化显著小于健康人的像素(病人失灵处)。蓝色区域正是结果第 4 条的前旁边缘激活轴成分——右海马旁回、右岛叶、前扣带回(含膝下区);黄色区域正是结果第 5 条的六个结构——左感觉运动皮层、顶盖、左下颞叶、左钩回、左额 BA10、左下托复合体。这是全文最核心的一张图:一眼可见两组 REM"反应模式"近乎镜像的差异,所有 Talairach 坐标与 Z 值都汇总在其对应的 Table 4 中。
讨论
作者先确认健康组的发现与既往报道一致(Buchsbaum 1989、Maquet 1996、Braun 1997/1998 及其 1997 年研究):REM 期上调的结构主要是前内侧的边缘旁边缘结构,在解剖上处于新皮层与参与神经内分泌、自主神经、代谢和行为稳态调节的下丘脑-脑干区之间的过渡位置,功能涉及情绪与动机行为的调制、选择性注意、学习记忆以及下丘脑与自主神经系统的协调。对病人的独特发现,作者按结构逐一给出解释。顶盖区的增幅最简捷地对应抑郁症 REM 期快速眼动增多这一特征性 EEG 现象——上丘正是扫视眼动与朝向行为的发生结构、接受多感觉传入并整合眼头朝向运动;更进一步,电刺激大鼠上丘会引发朝向、觉醒、僵直与逃避,伴血压、心率、呼吸上升,而这些恰是 REM 状态的行为与生理特征,导水管周围灰质也被赋予组织防御或厌恶行为的功能,且新近研究表明大鼠上丘-前顶盖区是光诱导 REM 睡眠的必要结构——作者据此提示抑郁可能存在顶盖对 REM 调控的失调。左感觉运动皮层的增加与梦像中常见的运动行为相关;左杏仁核与钩回的增幅可联系到杏仁核与脑干网状结构(REM 生成部位)的往返连接及其对 REM 期 PGO 波的促进作用,且杏仁核在觉醒期已高于对照——指向 REM 期对情绪显著材料的加工差异;下丘脑在两组均上调,与抑郁中边缘-下丘脑-垂体轴唤醒增高的模型一致;左下托复合体作为海马的主要输出站与广泛新皮层、皮层下边缘结构的双向连接枢纽,其增幅的意义作者未予展开;舌回、屏状核、枕核这些视觉加工区的减少,作者明言"意义不明"。
扣带回的发现被放在与觉醒期文献的对话中:Drevets 等已在家族性单双相抑郁中报告膝下前额叶皮层活性异常降低并伴皮层体积缩小,本研究未在觉醒期发现该区组间差异(作者归因于统计功效有限或人群不同);Mayberg 等发现喙侧前扣带回治疗前活性预测抗抑郁药应答(应答者基线高代谢、无应答者低代谢),并把该区视为连接扣带背腹通路、整合情绪-运动-自主神经-认知加工的桥梁;Wu 等与 Ebert 等的睡眠剥夺研究亦指向同一区域。本研究的贡献是把"功能受损"推进了一步:膝下与膝前前扣带回在健康人 REM 期应上调而病人失败——作者称之为反应性迟钝(blunted responsivity),加上觉醒期更靠上部位的前扣带低代谢,构成广泛前扣带功能病理的图景;联系前扣带作为边缘结构向下丘脑与自主神经效应系统转换信息的"效应器"角色,作者推测这可能与病人对情绪与动机显著信息反应不足有关,临床上表现为动机丧失、心境反应性丧失与无助无望的无力状态——但作者明确要求未来研究在个体病人上把临床测量与成像测量相关联才能坐实。局限一节(4.3 节)列出五条:样本小,只能观察到很大的、可能为本组特有的效应,需在不同病人组重复;FDG 信号是注射到扫描期间各脑状态的加权平均,作者估算 NREM 污染对绝对代谢的贡献至多约 3%(全被试均值 2.5%),且两条件在摄取期后流程相同、主体应为 REM 期(与血流研究结论一致佐证);未测绝对代谢(睡眠中采血会破坏自然设计,而健康人 REM 绝对代谢与觉醒相当,区域变化反映状态变化;抑郁病人无此数据);觉醒与 REM 扫描昼夜时点不同且全部病人报告昼夜心境波动——作者认为结果最可能与此无关(本中心既往研究显示受昼夜影响的结构与本研究交互区不同;若昼夜波动有贡献,结果方向应与所发现者相反),但留作未来议题;仅研究首个 REM 期,后期 REM 是否同样有待检验;另有一名对照 REM 潜伏期短这一反常现象,作者认为效应量大、健康组代谢相对均质,不至于扭曲结果。
一句话总结
最打动我的不是哪块脑区亮或暗,而是"方向反转"这个模式:同一个前扣带回、海马旁回或岛叶,健康人从觉醒进入 REM 时代谢上调,抑郁病人却下调——问题不在静态代谢水平,而在状态转换时的动态响应方式,这等于把 REM 睡眠变成了边缘系统的负荷试验。当然,6 对 8 的样本加上 FDG 信号天然混合多种脑状态,作者自称 preliminary 是恰当的自知之明,读它的正确姿势是当作一个范式论证而非定论——这是我的理解。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度partial,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[]