这篇文章利用猕猴下颞叶皮层(IT)神经元在准自然视觉刺激下的放电记录,检验了关于感觉神经元放电率分布的理论假说:即放电率呈指数分布,因其在固定平均放电率约束下信息熵最大、传输效率最高。检验结果表明,指数模型在 84% 的情况下被统计拒绝;而作者提出的“慢+快”(S+F)变异性模型——一个基于物理涨落与阈值整合的生成模型——在 16% 的情况下被拒绝。对信息传输效率的直接测量显示,其实际编码效率处于 0.5–0.7 的中等水平,未达到理论最优值。这一工作表明,放电率呈现指数样长尾并不意味着该系统专为指数分布而优化。
研究背景
大范围自然刺激下单神经元的放电率分布存在一种较为常见的经验形态:连续分级、单峰(峰值常位于零或自发放电水平附近),并带有近似指数衰减的长尾。这种分布形态不仅见于视觉皮层,在额叶皮层与海马等脑区也有记录,常被用作神经网络模型中分级放电率的一阶近似。该现象受到理论神经科学关注,部分源于信息论中关于约束条件下最大熵的推导:在固定平均脉冲计数的条件下,指数分布能最大化放电计数的香农熵。由此有学者推测,神经元放电趋向指数分布可能是代谢成本约束(平均放电率预算)下优化信息传输容量的演化结果。
然而,这一论证存在两个未解决的问题。首先,在无噪声信道下最大化信息的分布形式,在含噪声环境下未必保持最优;且在不同假设条件下(例如有噪声脉冲编码面对缓慢变化的刺激),二值化分布反而能提供最大的信息传输率。其次,该经验分布存在不依赖最优化假设的机制性解释:神经元的放电是大量突触输入电流流入胞体后经阈值非线性整流的结果。根据中心极限定理,弱相关输入的叠加会导致膜电流呈近似正态分布,由此产生的放电计数应接近带零截断的高斯分布;若胞内快速波动占主导,则更趋近泊松分布。这些基础模型此前缺乏在接近自然视觉刺激条件下的系统定量检验。
研究思路
作者将候选理论形式化为具体的概率分布模型,通过拟合优度检验进行比较。核心工作是构建具有生理对应关系的“慢+快”(S+F)随机模型:将胞体驱动电流的波动分解为两个正态分布成分——时间尺度长于计数时间窗的“慢”变异(对应不同刺激或场景诱发的平均输入差异),以及短于时间窗的“快”变异(对应窗口内的随机噪声)。电流经阈值线性整流转换为瞬时放电率,对快噪声积分后推导出放电计数的理论分布。研究逻辑在于:若指数模型拟合被拒绝,而 S+F 模型拟合良好,则放电率长尾可由高斯输入叠加阈值与噪声直接解释,无需诉诸最大熵假说;随后利用信息论指标直接计算实际编码效率,评估其与理论极限的差距。
实验采用了两种刺激呈现模式相互验证:一是自由观看连续无剪辑视频(无注视点限制,模拟自然浏览),二是多张静态自然图像的重复呈现(注视任务,便于精确计算互信息),以检验分布特征是否受特定实验刺激模式的影响。
方法
电生理记录来自两只恒河猴(ay、ba)上颞沟前部(aSTS)皮层的 15 个面孔选择性神经元(筛选标准为对面孔的最强反应至少是非面孔最强反应的 2 倍)。视频实验中,动物观看 5 分钟日常实验室场景视频(含实验室内景、人员与动物,约 30% 画面包含面孔),不强制要求维持固视;同一细胞重复播放形成独立数据集,共采集 22 组数据(ay 20 组,ba 2 组)。静态图像数据来自另一只猴(am)下颞叶的 14 个面孔选择性神经元,在固视任务下呈现 65 张自然图像(23 张面孔、42 张非面孔),每张呈现 500 ms,每个细胞记录 380–600 个试次。
分析时将放电序列划分为不重叠的时间窗以统计脉冲计数直方图:视频数据采用 L = 50、100、200、400、800 ms 五档窗口;静态数据采用 L = 50、100、200、400 ms(自刺激呈现后 100 ms 起算)。模型拟合评估采用卡方拟合优度检验(χ² 检验,引入 Yates 连续性校正,以 p < 0.01 作为统计拒绝阈值)。指数与泊松分布仅含 1 个由数据均值决定的自由参数;截断高斯模型包含 2 个参数(慢变异幅度 σS 与阈上平均激活 h₀);S+F 模型包含 3 个参数(h₀、σF、σS),并在拟合视频数据时限制 h₀ 跨不同时间窗取相同值,以避免由于自由度过多导致的过拟合。信息传输效率采用每脉冲信息量(Â)进行量化,即单位时间信息率与平均放电率的比值;将其与相同稀疏度(sparseness)下理论最优二值分布的最大信息量 log₂(1/a) 相比,得到介于 0 到 1 之间的编码效率 η。作者验证了该短时近似在 25–100 ms 时间窗内与真实互信息高度一致。
主要结果
- 模型拟合检验中仅 S+F 模型与数据保持相符。 在视频数据的 110 次拟合中(22 组数据 × 5 个时间窗),泊松模型被拒绝率为 100%,截断高斯模型为 96.3%,指数模型为 83.6%(p < 0.01),而 S+F 模型被拒绝率仅为 15.4%;22 组数据中有 13 组在全部时间窗内均被接受,拒绝主要出现在较短窗口(50 ms 出现 5 例,800 ms 出现 0 例)。静态图像数据中,泊松模型被拒绝率为 100%,截断高斯为 89.2%,指数模型为 75%,S+F 模型仅为 1.8%(1/56)。直方图显示,指数模型的系统性偏差主要表现为低计数区脉冲过少、次低计数区脉冲过多(Table 1;图 2、图 3、图 4)。
- S+F 模型的变异参数具有明确的能量守恒特征。 在总输入功率恒定假设下,参数应满足 σS² + σF² ≈ 常数。图 5 中各数据集在五个时间窗的参数轨迹接近圆弧,主导分布在 30°–60° 区间。快变异功率占比 F/(S+F) 随时间窗长度呈对数增长,由 50 ms 时的约 0.2 增至 800 ms 时的约 0.6–0.7,呈现每倍频程功率相等的 1/f 特征,与自然视觉输入的无尺度统计特性一致(图 5、图 6)。
- 放电序列功率谱在低频段呈现近似 1/f 衰减。 在约 4–8 Hz 以下,功率谱衰减趋势与 S+F 模型反推的慢变异幅度随频率的变化一致;高频段变平源自脉冲离散点过程的点状性质,S+F 模型参数在较宽频率范围内避免了这种高频失真(图 7)。
- 每脉冲信息量随时间窗长度保持相对稳定。 在 12–400 ms 范围内,静态图像数据计算得到的每脉冲信息量未见系统性漂移;相比之下,脉冲计数分布的香农熵随时间窗延长发生显著改变,表明熵值并不直接等同于有效携带的信息量(图 8)。
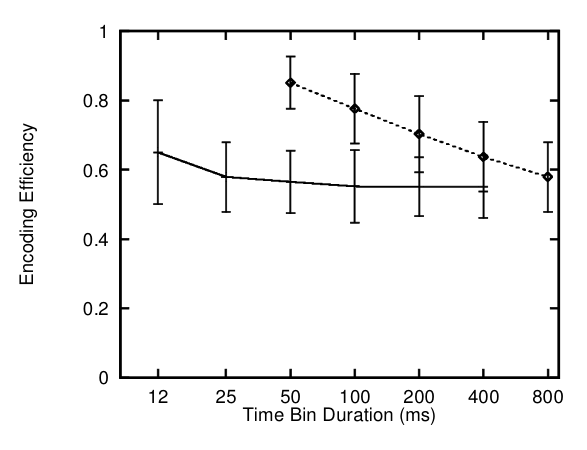
- 实际信息传输效率处于中等水平而非理论极限。 静态图像数据测得的编码效率 η 主要分布在 0.5–0.7 之间(25 ms 均值 0.58,50 ms 0.56,100–400 ms 0.55);视频数据在 400/800 ms 下为 0.64/0.59。极短时间窗下数值有所升高,但主要反映了单试次计数二值化导致的统计偏差以及对噪声传输的计入。若采用基于熵的度量定义,实际传输信息量约为熵值的九分之一(图 9)。
图注解读
图 1 · 阈值线性激活函数与快噪声平滑后的"有效"激活函数
原文图注:Figure 1: Activation functions in the model. The solid line is the instantaneous threshold linear activation function (with g D 1). The dashed line is an example of an “effective” activation function obtained integrating over fast noise, using equation 2.10, with sF D 50 Hz. The dotted and dashed line is another example of effective activation function, equation 2.10, obtained with sF D 10 Hz.
横轴为激活变量(流入胞体的电流,以等效放电率单位 Hz 计),纵轴为放电率。实线是瞬时阈值线性变换:阈值以下输出为零,阈值以上线性增长(增益 g=1)。虚线与点划线是对快噪声(σF 分别为 50 Hz 与 10 Hz)积分后得到的“有效”激活函数:阈值附近的硬拐角被平滑,形成上凸的超线性段,且快噪声越大平滑程度越显著。该机制是全文的核心推导:正是阈值附近的超线性特征把激活分布的高斯尾部转化为放电率分布的指数样尾部,但不会产生峰值位于零点的完整指数分布,这解释了数据虽有指数尾部却被统计检验拒绝的原因。
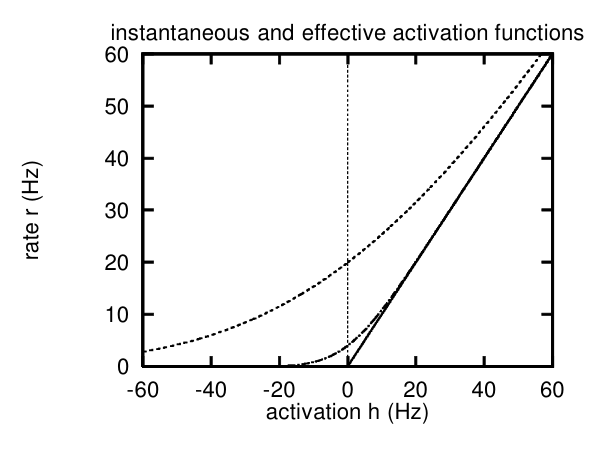
图 2 · 视频数据、100 ms 窗口下 9 个数据集的放电计数直方图
原文图注:Figure 2: Probability histograms for nine data sets (video data). The time window is 100 ms long. Each graph plots the probability on the y-axis of the number of spikes, in a 100 ms time bin, given in the x-axis. The histogram is the neurophysiological data from the neuron, with the standard deviation shown; the dashed line shows an exponential distribution fitted to the mean firing rate of the cell; and the solid line shows the fit of the S+F model described in the text.
九个子图对应九个数据集(如 ay080-05、ay087-01、ba003-03 等),横轴为 100 ms 窗口内的脉冲数,纵轴为对应概率。直方图为实测数据(误差棒按各 bin 频数的泊松标准差绘制),虚线为依据该细胞平均放电率拟合的指数分布,实线为 S+F 模型拟合。低计数区域显示出明确偏离:指数模型在零计数附近低于实测值,在次低计数区又偏高;而 S+F 模型整体与实测分布贴合。这九组代表了 22 个数据集的整体趋势(S+F 拒绝率 16.6%,指数 83.3%,泊松 100%,高斯 100%)。
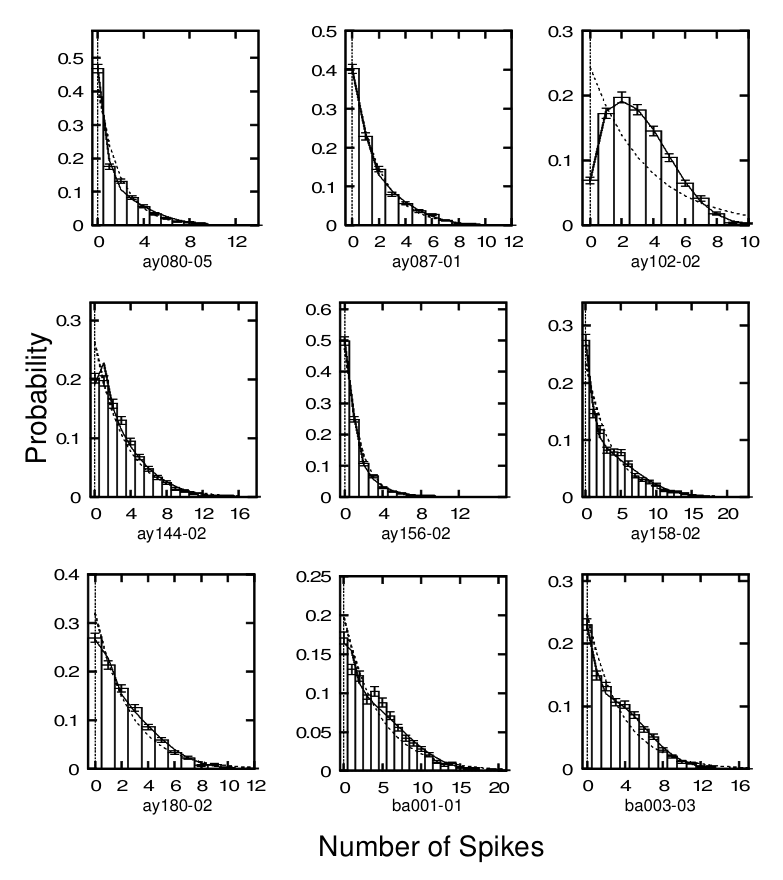
图 3 · 同上,但窗口加长到 400 ms
原文图注:Figure 3: Probability histograms for nine data sets (video data). The time window is 400 ms long. The conventions are as in Figure 2.
子图结构与图 2 一致,窗口加长至 400 ms,横轴脉冲计数范围相应扩大至约 60。随着窗口延长,指数模型的失配更加明显,而 S+F 模型依然与数据贴合。这表明指数模型的偏差并非特定时间尺度下的偶然结果,在不同时间窗下表现一致。
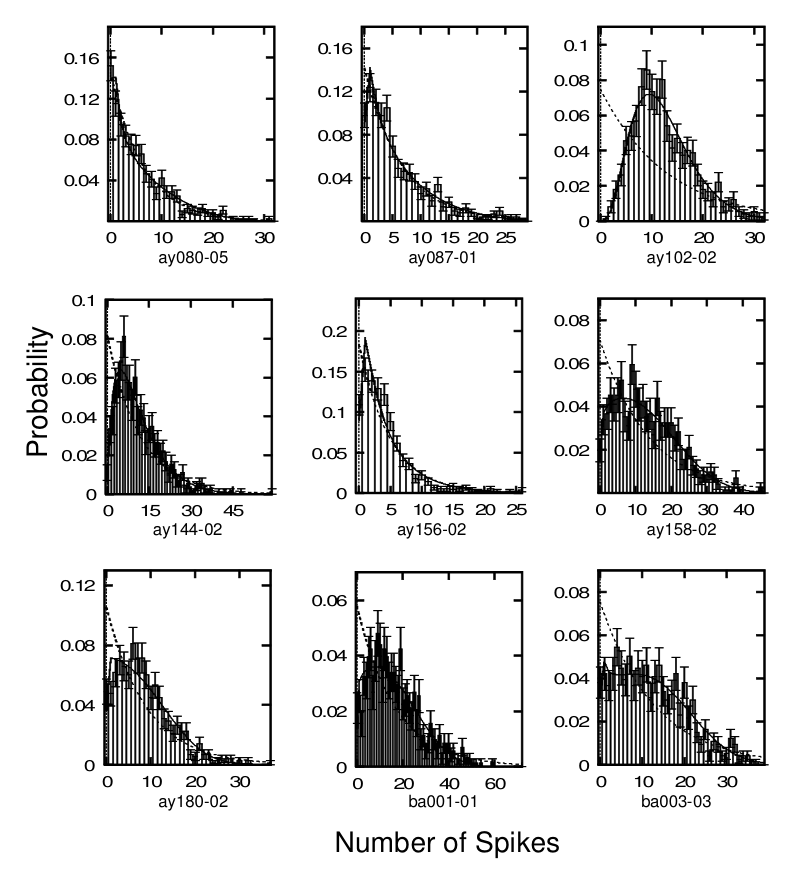
图 4 · 静态图像数据的三例直方图(A:100 ms;B:400 ms)
原文图注:Figure 4: Probability histograms for three cells (responding to static stimuli). (A) The time window is 100 ms long. (B) The time window is 400 ms long. The conventions are as in Figure 2.
该图提供了跨刺激范式的验证数据:展示了另一只猴(am)的三个神经元(am164、am231、am235)对 65 张静态自然图像的放电计数分布,A 栏为 100 ms 窗口,B 栏为 400 ms 窗口。渐变单峰与指数样长尾在静态刺激下同样出现,且由于每个窗口对应有重复试次的离散刺激,信噪比更高,检验结果中 S+F 模型的拒绝率仅为 1/56。这表明放电分布形态不依赖于动态视频呈现。
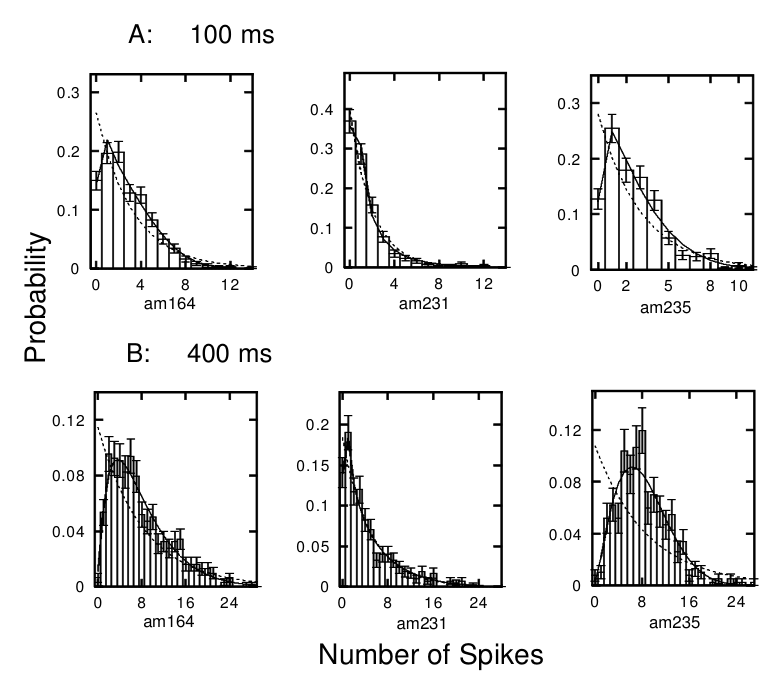
图 5 · 快噪声与慢噪声标准差的关系
原文图注:Figure 5: (Ordinate) The standard deviation of the fast noise, sF(L). (Abscissa) The standard deviation of the slow noise, sS(L). Units in Hz (video data).
横轴为慢变异幅度 σS(L),纵轴为快变异幅度 σF(L),单位均为 Hz;同一数据集在五个时间窗的参数点依次相连。若总输入功率恒定假设(σS² + σF² ≈ 常数)成立,参数轨迹应近似圆弧。实测轨迹大体呈圆弧形态,且多数数据集的分布落在 30° 至 60° 之间。这为参数提供了内部一致性支持,表明 σS 与 σF 对应于真实的变异成分,而非无约束的自由拟合参数。
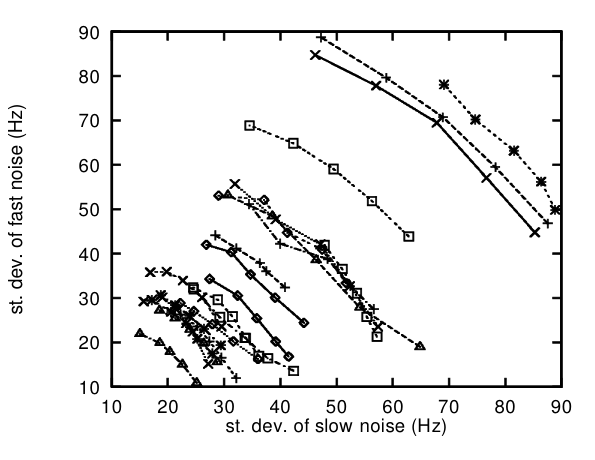
图 6 · 快变异功率占比随窗口长度对数增长
原文图注:Figure 6: (Ordinate) The fraction of the variability that is due to fast noise, F/(S C F). (Abscissa) The time window on a log scale. Dashed lines represent single data sets; the bold line is the average across data sets (video data).
横轴为时间窗长度(对数刻度,50–800 ms),纵轴为快变异在总变异功率中的占比 F/(S+F)。虚线表示各独立数据集,粗线为 22 组数据的均值。曲线从 50 ms 处的约 0.2 上升至 800 ms 处的约 0.6–0.7,在对数坐标下接近直线,符合每倍频程功率相等的 1/f 特征。这表明自然场景中的动态要素缺乏单一特征时程,涨落功率在较宽时间尺度内相对均匀分布。
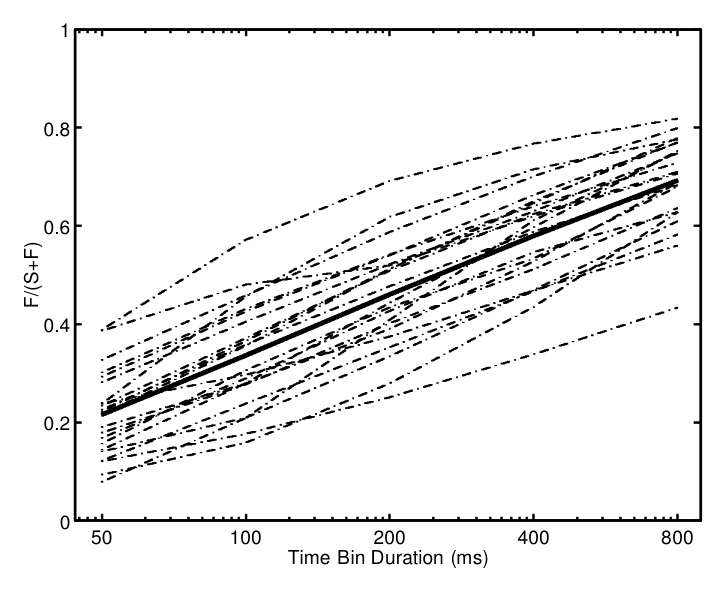
图 7 · spike train 的平均归一化功率谱
原文图注:Figure 7: The average across data sets of the normalized power spectrum of the spike train for each recording session. The sampling frequency is 200 Hz (video data).
横轴为频率(0.78–25 Hz),纵轴为归一化功率(采样率 200 Hz,各数据集功率归一化为 1 后求均值)。约 4–8 Hz 以下的低频段呈现近似 1/f 衰减,随后趋于平缓。高频段平坦主要由脉冲离散点过程的点状特性引起,属于点过程本身的频谱伪迹;低频段的形态则与 S+F 模型拟合得到的慢变异幅度变化一致。通过模型拟合推导驱动变量,避免了离散脉冲对高频特性的失真影响。
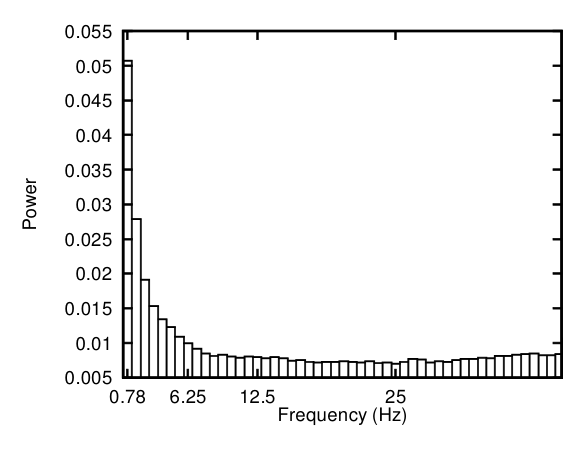
图 8 · 每脉冲信息量随窗口长度基本恒定
原文图注:Figure 8: The average across the population (C /¡ S.D.) of the information per spike Â(L) for 14 cells tested with 65 static images of natural scenes of faces plotted as a function of the time bin length L. The time axis is on a log scale.
横轴为时间窗长度(对数刻度,12–400 ms),纵轴为 14 个静态图像细胞的每脉冲信息量均值(±SD)。该指标随时间窗延长没有系统性单调变化,平均水平保持稳定。这一特征为效率分析提供了依据,表明使用相对较长窗口测得的均值可用于评估短时信息率;相比之下,脉冲计数分布的香农熵随时间窗显著改变,不能直接作为信息量的稳定指标。
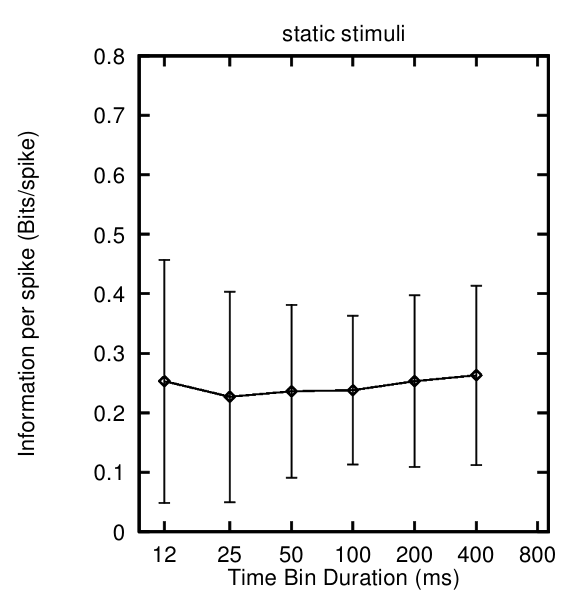
图 9 · 编码效率:静态数据(实线)与视频数据(虚线)
原文图注:Figure 9: The encoding efficiencies %(L) for 14 cells tested with 65 static images of natural scenes of faces plotted as a function of the time bin length L (solid line; C /¡ S.D.). The encoding efficiencies %(L) for all 22 data sets recorded with the video (dashed line; C /¡ S.D.). The time axis is on a log scale.
横轴为时间窗长度(对数刻度),纵轴为编码效率 η(介于 0 到 1 之间,1 代表相同稀疏度下的理论最优二值分布)。实线代表 14 个静态图像细胞的均值 ±SD,多数窗口落在 0.5–0.7 之间(25 ms 为 0.58,50 ms 为 0.56,100–400 ms 为 0.55);12 ms 短窗口升高至 0.65,部分源于窗口过短导致计数趋向二值分布的统计偏差。虚线代表 22 组视频数据,长窗口(400/800 ms)下为 0.64/0.59,更短窗口下由于单试次计数二值化及噪声计入,η 出现升高。两种条件下效率均稳定在 0.5–0.7 范围,未接近理论极限。
讨论
作者从神经机制角度解释了实验结果:S+F 模型不依赖具体的脉冲发放动力学细节或突触输入的代数求和方式,其核心在于驱动电流的快慢涨落近似呈正态分布——在突触输入弱相关时,中心极限定理支持了这一假设(Settanni & Treves 1998 表明,即便突触可塑性引入微弱相关,对分布形态的修正依然较小)。快噪声与阈值线性整流组合形成的有效激活函数在阈值附近呈现超线性弯曲,将高斯分布的尾部映射为指数样衰减,但不会形成峰值位于零点的纯指数分布。实验数据未出现明显的饱和截断特征:完整的 S 型饱和函数会导致高放电区出现陡峭截断,这与观察到的渐变长尾不符,也符合下颞叶神经元放电极少超过 100 spikes/s 的生理特性。模型也包含简化假设:瞬时阈值线性变换较为简略、快慢变异二分属于经验近似,且未包含连续激活到离散脉冲的精细泊松过程;但在视频数据拟合中跨时间窗固定 h₀,保证了参数的可比性。
在理论层面,本研究针对两类观点提供了实证约束:其一,针对最大熵假说,研究指出熵度量的是总变异,而信息传输依赖于扣除条件噪声后的有效变异;数据中传输信息量约为熵值的九分之一,表明放电率分布不能直接作为最大化信息容量的证据。其二,针对依据放电不规则性推断皮层必须依赖输入同步的观点(如 Softky & Koch 1993),研究表明激活变异中有相当比例发生在短于分析窗口的时间尺度;这部分快速波动无需神经元间的精确锁相同步即可塑造放电统计特性。作者在结论中指出:放电计数的静态直方图本身无法证明特定的最优化设计原则(包括信息效率、最大熵或输入同步),相关理论解释仍需结合具体的生理机制展开评估。
一句话总结
本研究表明,下颞叶神经元在自然刺激下表现出的指数样放电率分布,主要源自高斯输入经过阈值整流与快速噪声平滑的物理效应,其实际信息传输效率处于 0.5–0.7 的中等水平,并不支持感觉皮层放电分布是为最大化信息容量或最大熵而专门优化的理论假设。