本文结合单侧小脑切除(hemicerebellectomy, HCb)大鼠在 Morris 水迷宫、水 T 迷宫与主动回避任务中的系列实验,探讨小脑在空间问题解决中的具体贡献。作者通过延长线索期检验空间地图的建立、利用术前训练与术后重测区分习得与保持,并借助左右门判别分离联想学习与空间辨别,提出小脑主要参与“如何有效寻找目标”的程序性策略习得,而非单纯编码“目标在何处”的空间位置表征。
研究背景
在经典神经科学研究中,小脑功能多通过姿态、平衡及运动协调障碍进行阐释。基于该传统,早期运动学习理论将小脑界定为依据感觉反馈校正运动输出并形成运动熟练程序的结构。此后,纯运动框架受到多项解剖与临床证据的挑战:小脑与后顶叶、前额叶等联合皮层之间存在双向投射环路,小脑病变患者可出现视空间、时间感知或语言处理障碍,功能性神经影像研究也在多种认知任务中检测到小脑激活。这些证据表明小脑可能参与认知加工,但其在复杂行为中承担的具体计算环节尚不明确。
空间问题解决任务凸显了这一功能的界定难度。大鼠在 Morris 水迷宫中寻找隐蔽平台,既需要利用环境线索形成目标空间位置表征,也需要克服趋壁性、发展搜索策略并组织游泳路径。海马与新皮层的空间地图表征、基底节的导航策略研究均提供了相应机制,但小脑损伤导致寻台时间延长的确切原因尚未厘清:这一缺陷可能源于空间定位障碍,也可能涉及运动协调、程序性探索策略受阻或认知灵活性不足。此外,临床病例表现的不均一性以及自发突变动物脑损伤范围的非特异性,限制了功能归因的明确性。因此,研究需要解离“目标位置知识”与“搜寻目标的有效程序”,并区分新空间策略的习得与已有策略的提取保持。
本文综述了单侧小脑切除大鼠在水迷宫、水 T 迷宫及主动回避任务变式中的系列研究。通过延长可见线索训练检验位置知识的形成,利用起点更换与撤台测试评估异源空间偏好,结合术前训练与术后重测区分策略的获取与保持。非空间预训练与左右门判别任务则进一步评估行为缺陷是否源于通用探索程序的习得或自我参照(egocentric)的空间定位。作者据此认为小脑主要参与空间导航策略的程序性习得,而非环境地形图的储存。同时需注意,探索程序的正常执行是动物获取环境空间表征的必要前提,两者在行为学上存在部分重叠;损伤大鼠在部分测试中未完全恢复至对照水平,尚不能完全排除轻微空间表征受损的可能。相关发现支持了小脑在空间行为中的策略习得作用,但运动控制、程序组织与空间表征之间的界限仍有待深入探讨。
研究思路
实验设计的核心策略是通过多组行为范式逐步拆解认知成分与运动程序,检验各项替代假设。研究首先采用经典 Morris 水迷宫三段范式(隐藏平台 place I、可见平台变换位置 cue、再隐藏平台 place II),观察环境地形图策略(place)与非地图策略(praxic 运动序列、taxic 近端线索趋向)的表现;随后采用水 T 迷宫排除贴壁绕圈运动倾向对空间搜索的物理干扰;通过延长线索训练检验损伤动物是否具备形成空间位置记忆的能力;利用起点逐次轮换的纯 place 范式与无平台探针测试,检验空间偏向是否依赖稳定的外源环境地图;借助术前训练与术后重测区分策略获取与储存提取过程;利用黑幕环境且平台随机变换位置的非空间预训练,分离纯程序性探索技能与空间定位成分;最后在穿梭箱主动回避任务中分离条件性联想学习与空间左右辨别能力。
方法
实验选用大鼠,术后经尼氏(Nissl)染色脑切片确认切除范围局限于单侧小脑(图 1)。核心测试装置为 Morris 水迷宫(MWM):大鼠在不透明圆形水池中寻找隐藏或可见逃生平台,记录逃避潜伏期与游泳轨迹,并使用 1–10 分量表对搜索行为评分(1 分代表直接游向平台无需搜索,8 分代表沿池壁持续绕圈后找到平台,10 分代表绕圈且未找到平台)。实验参照成熟框架区分空间策略:praxic 策略(依赖固定的自身运动序列,要求起点与目标相对位置恒定)、taxic 策略(直接趋向平台或近端可见线索)以及 place 策略(根据池外远端线索建立异源空间认知地图,allocentric mapping)。主动回避任务采用改装穿梭箱进行:隔板开设两个带有单向门的通道,光信号(条件刺激,CS)呈现 10 秒后伴随电击,动物须穿过预先设定的正确门方可进入安全区,若穿错门则进入通电闭锁区;每日训练 100 试次,连续 5 日,随后进行正确通道空间反转测试。行为反应细分为正确/错误回避(CS 呈现期穿行)与正确/错误逃避(电击呈现期穿行)。研究数据主要整合自 Petrosini 等(1996)与 Molinari 等(1997a)的研究,并结合 Leggio 等关于非空间预训练的实验结果。
主要结果
- 标准三段范式中 HCb 组大鼠表现普遍受损:对照组动物至第 3 次训练会话已全部成功找到平台;HCb 组动物在 place I 阶段成功率极低,cue 阶段略有回升,但在 place II 阶段未能进一步改善;其游泳轨迹主要表现为贴壁绕圈,偶发的成功主要源于在绕圈中途突然折向平台,逃避潜伏期随训练渐进缩短,但搜索行为评分未见改善(图 2、3)。
- 绕圈运动并非行为缺陷的主要成因:在物理上限制绕圈的水 T 迷宫中,HCb 组动物的逃生成功率仍处于随机水平(图 4),表明其缺陷主要源于空间信息处理障碍,而非无法抑制贴壁运动。
- 延长线索训练使损伤动物建立空间位置表征:将 cue 阶段延长至 5 次会话后,HCb 组成功寻台次数逐步上升,但潜伏期与搜索评分改善有限(图 5);在随后的纯 place 范式(平台隐藏且位置固定、起点逐试次轮换)中,其成绩保持在既有水平,轨迹分析显示动物在不同位置中断绕圈后径直游向平台,若未击中则返回池壁绕圈(图 6);在无平台探针测试中,大鼠显著偏向先前设置平台的 NE 象限(图 7)。这表明 HCb 大鼠仍能建立异源空间表征,但该表征需要通过线索阶段联合池内与池外线索强化习得。
- 损伤特异性累及策略习得而非储存与提取:大鼠在术前完成 place I–cue–place II 完整训练,术后进行 place III 测试,其成绩与术前末期测试无显著差异,且术后完整保留了术前习得的直达游泳轨迹(图 8、9)。
- 程序性探索策略习得受损的进一步证据:未手术大鼠在无定位信息的预训练(黑幕遮蔽、平台位置逐试随机变更)中发展出扫描全池的系统性搜索策略;该组接受单侧小脑切除后,贴壁绕圈行为消失,继续沿用全池扫描策略寻找平台,成绩显著优于未接受预训练的 HCb 组,寻台成功次数与对照组无显著差异,但行为评分偏高且潜伏期偏长(图 10、11)。
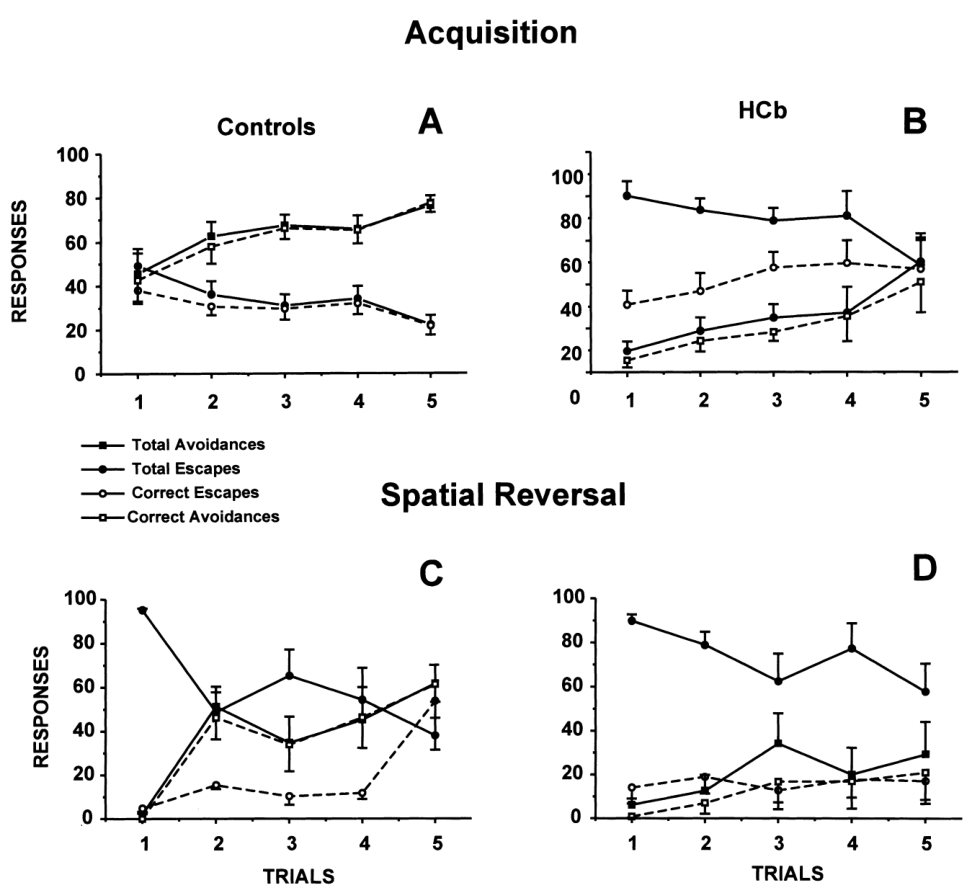
- 左右空间辨别受损而联想学习完好:在无空间要求的标准双向穿梭箱主动回避中,HCb 组与对照组表现一致,表明光-电击条件性联想学习及逃避动机未受影响;但在加入左右通道辨别后,HCb 组出现显著学习障碍,经多日训练后错误回避逐步消除,表明缺陷特异于空间辨别而非联想学习(图 12、13);在正确通道互换的空间反转测试中,对照组可重新习得,而 HCb 组在测试期间未能适应规则改变。
图注解读
图 1 · HCb 损伤范围的组织学核查
原文图注:Fig. 1. Coronal section through the cerebellum and brain stem of a HCbed rat. Nissl staining. Magni®cation: ×7.5.
脑切片展示了一只接受单侧小脑切除(HCb)大鼠的小脑与脑干冠状面(尼氏染色,放大倍数约 7.5 倍)。切片确认组织切除严格局限于单侧小脑,未波及深部脑干等结构,为将行为缺陷归因于小脑损伤提供了组织学支持。
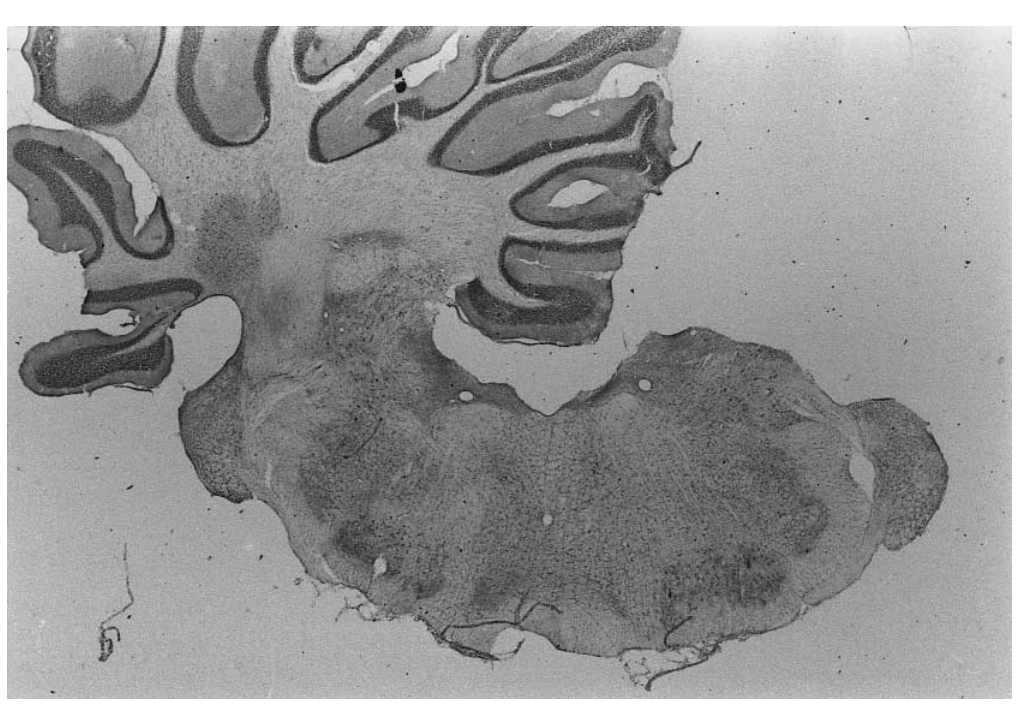
图 2 · 标准三段范式的定量对比
原文图注:Fig. 2. Mean successful ®ndings, behavioural scores and escape latencies of control and HCbed animals in the MWM paradigm characterized by a ®rst phase with the platform hidden in the NW pool quadrant (place I phase), followed by a phase with the visible platform moved into a NE position (cue phase), fol- lowed by a ®nal phase with the platform hidden in this last NE position (place II phase). Vertical bars indicate standard errors [from Petrosini et al. (1996)].
该图从三个指标对比了对照组与 HCb 组在 Morris 水迷宫三阶段(place I–cue–place II)的表现:成功寻台次数、搜索行为评分及逃避潜伏期,竖线表示标准误。对照组动物在训练后成功率迅速接近 100%,行为评分与逃避潜伏期同步下降;HCb 组成功次数在 place I 阶段较低,在 cue 阶段有所增加,但在 place II 维持较低水平,其行为评分始终处于较高区间。这一对比显示 HCb 组大鼠在潜伏期缩短的同时未能改善探索策略,对应结果第 1 条。
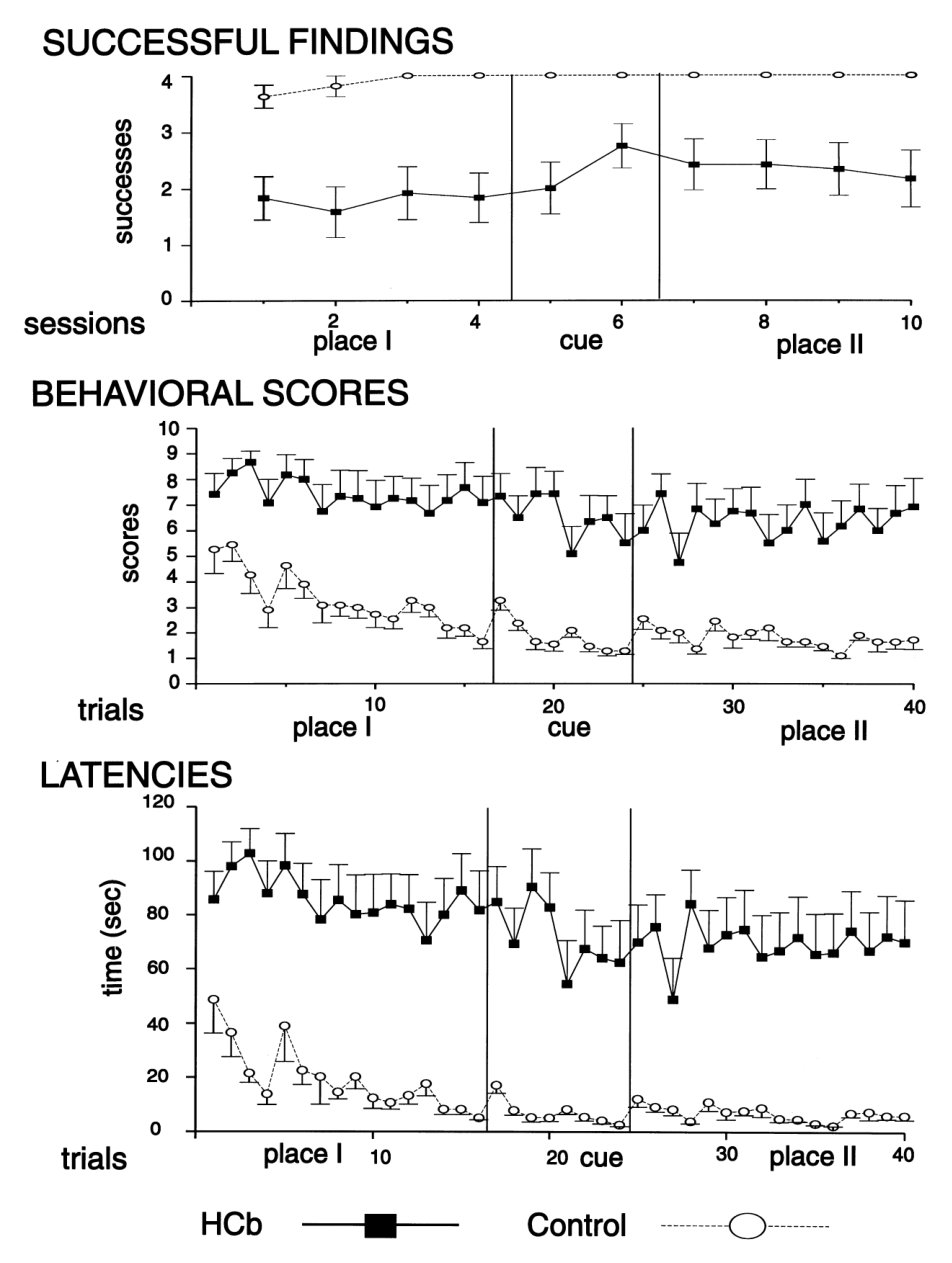
图 3 · 游泳轨迹的质性对比
原文图注:Fig. 3. Swimming trajectories of a control and a HCbed animal during Place I, Cue and Place II repre- sentative trials. While control animal exhibits searching behaviour extended around the pool in the early trial and then a direct ®nding to the platform in the successive phases, the HCbed rat displays peripheral searching in all phases of the task, with successful ®ndings only in Cue and in Place II phases [from Petrosini et al. (1996)].
代表性试次的游泳轨迹显示:对照组大鼠在早期试次中于全池展开搜索,随后各阶段均表现出直达平台的轨迹;HCb 组大鼠在各阶段均表现出持续的贴壁绕圈,仅在 cue 和 place II 阶段偶发成功。其偶发寻台呈现为贴壁绕圈过程中的突然中断并径直冲向平台,而非连续的轨迹校正,表明其主要保留了初级周边探索反应,对应结果第 1 条。
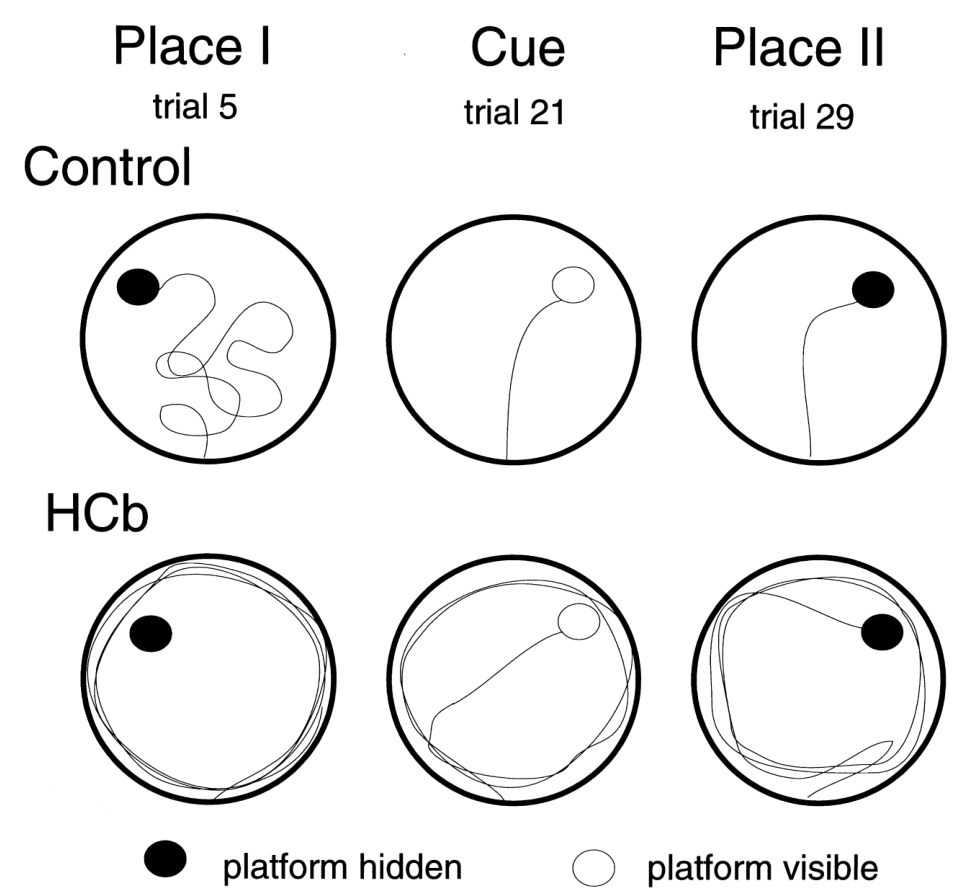
图 4 · 排除"强迫绕圈"假说
原文图注:Fig. 4. Mean successful ®ndings in control and hemicerebellectomized rats in a T-maze paradigm. Vertical bars indicate standard errors [from Petrosini et al. (1996).]
水 T 迷宫通过受限通道消除了贴壁绕圈的物理条件。结果显示对照组动物寻台成功率显著高于 HCb 组,而 HCb 组成功率仍接近随机水平。若其缺陷仅源于无法抑制绕圈冲动,限制绕圈应改善表现;实际结果表明其缺陷涉及空间决策与导航处理本身,对应结果第 2 条。
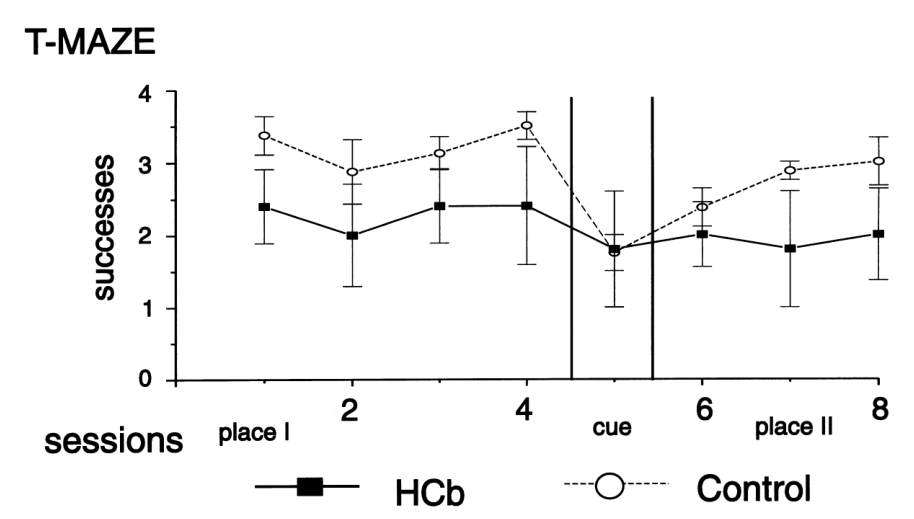
图 5 · 延长线索相的效果
原文图注:Fig. 5. Mean successful ®ndings, behavioural scores and escape latencies of control and HCbed rats in an MWM enhanced cue paradigm. Vertical bars indicate standard errors [from Petrosini et al. (1996).
该图显示了延长线索训练(cue 阶段扩展至 5 次会话)下的表现指标:HCb 组的寻台成功次数随重复训练逐步递增,但行为评分与潜伏期仅在初期略有改善后维持平稳;在随后的 place II 阶段(隐藏平台),其成功次数维持在前期习得水平。这表明充足的可见线索训练有助于损伤动物建立有效的空间定位表征,对应结果第 3 条。
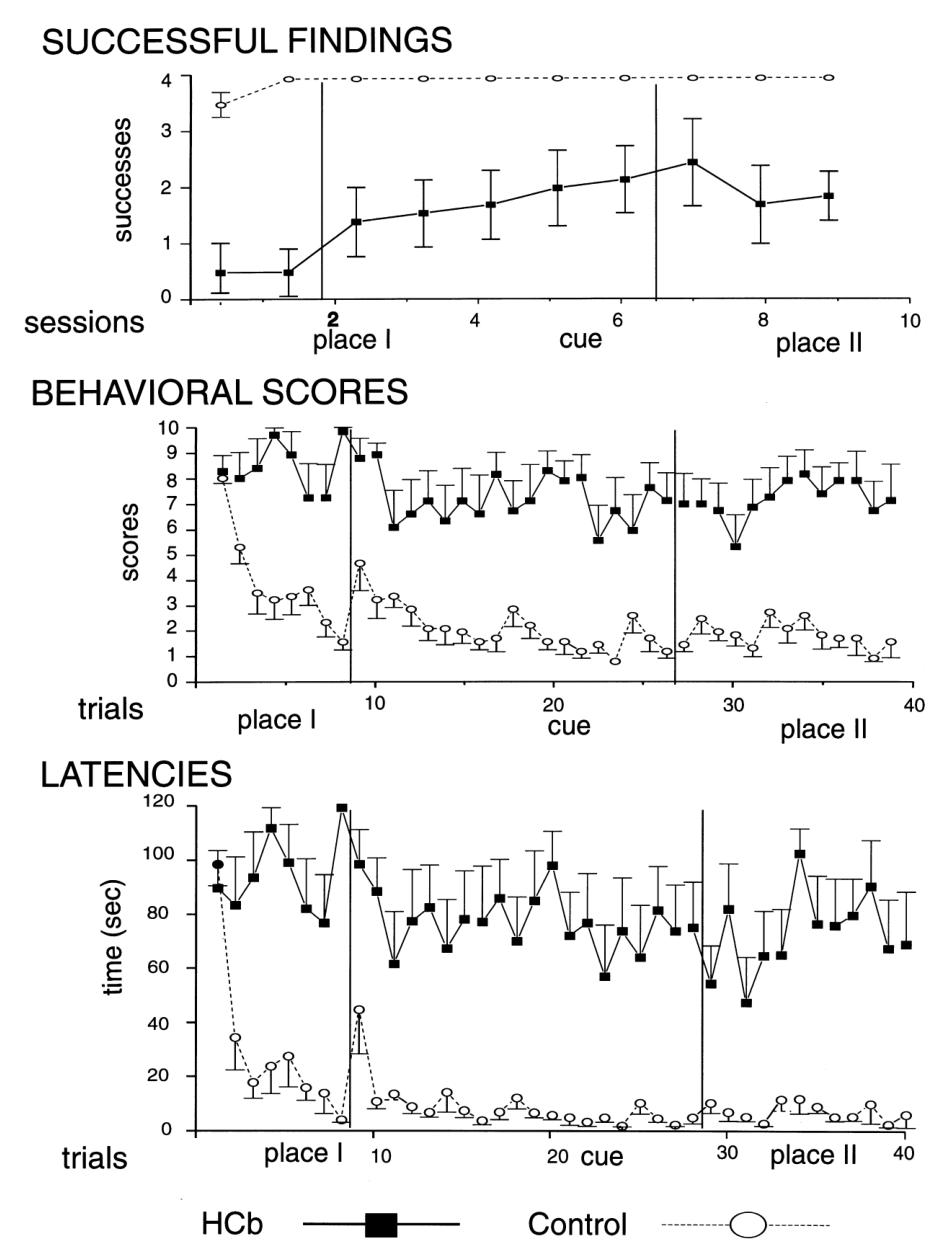
图 6 · 起点顺序变更的纯 place 版本
原文图注:Fig. 6. Mean successful ®ndings, behavioural scores and escape latencies of control and HCbed rats in an MWM paradigm with sequentially changed starting points. Vertical bars indicate standard errors [from Petrosini et al. (1996)].
在平台位置固定但起始投放点逐试次轮换的设计中,单纯固定动作序列(praxic)或简单朝向池外单一标志物(taxic)无法稳定找到平台,任务需要依赖整体外源空间地图。经历延长线索训练的 HCb 组在各项指标上维持了此前习得的表现,轨迹分析显示其贴壁绕圈发生中断的物理坐标随不同起点而改变,表明大鼠在训练后获得了平台在环境中的位置表征,对应结果第 3 条。
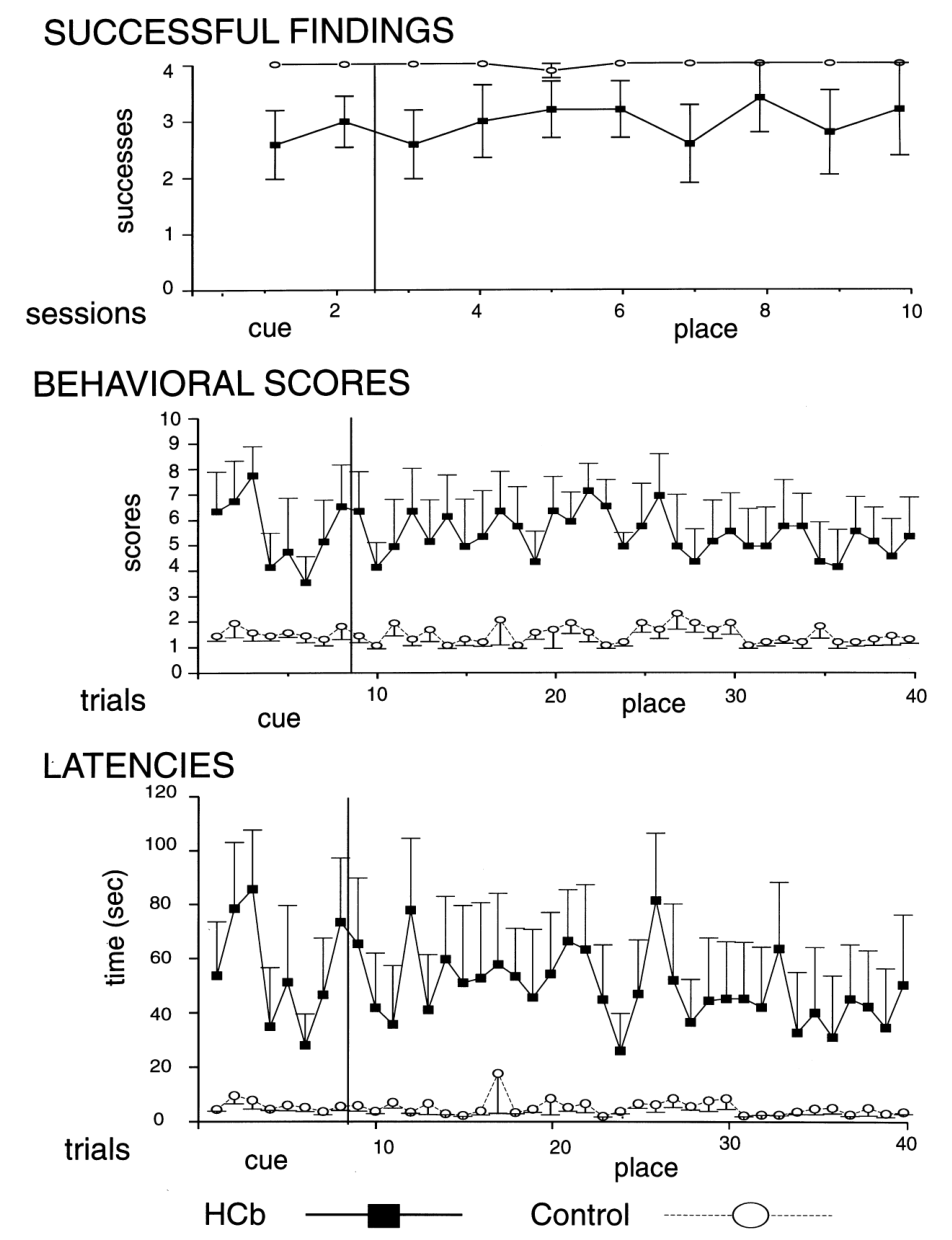
图 7 · 无平台试探的空间偏向
原文图注:Fig. 7. (A) Typical searching pattern of a HCbed animal during recall session with hidden platform (ses-
sion 1), and during two successive trials of the two no-platform' sessions in the MWM paradigm with
no platform present in the pool. (B) Distribution of searching times in the four quadrants during the
twono-platform' sessions. Note the biased preference towards the previously rewarded quadrant (NE)
[from Petrosini et al. (1996)].
(A) 展示了一只 HCb 大鼠在隐蔽平台重测及随后的无平台试探中的代表性轨迹;(B) 统计了两轮无平台试探中大鼠在四个象限的停留时间比例。数据显示动物在既往设置平台的 NE 象限停留时间显著高于其他象限,提供了损伤动物在强化线索训练后能够习得并保持目标空间位置表征的量化证据,对应结果第 3 条。
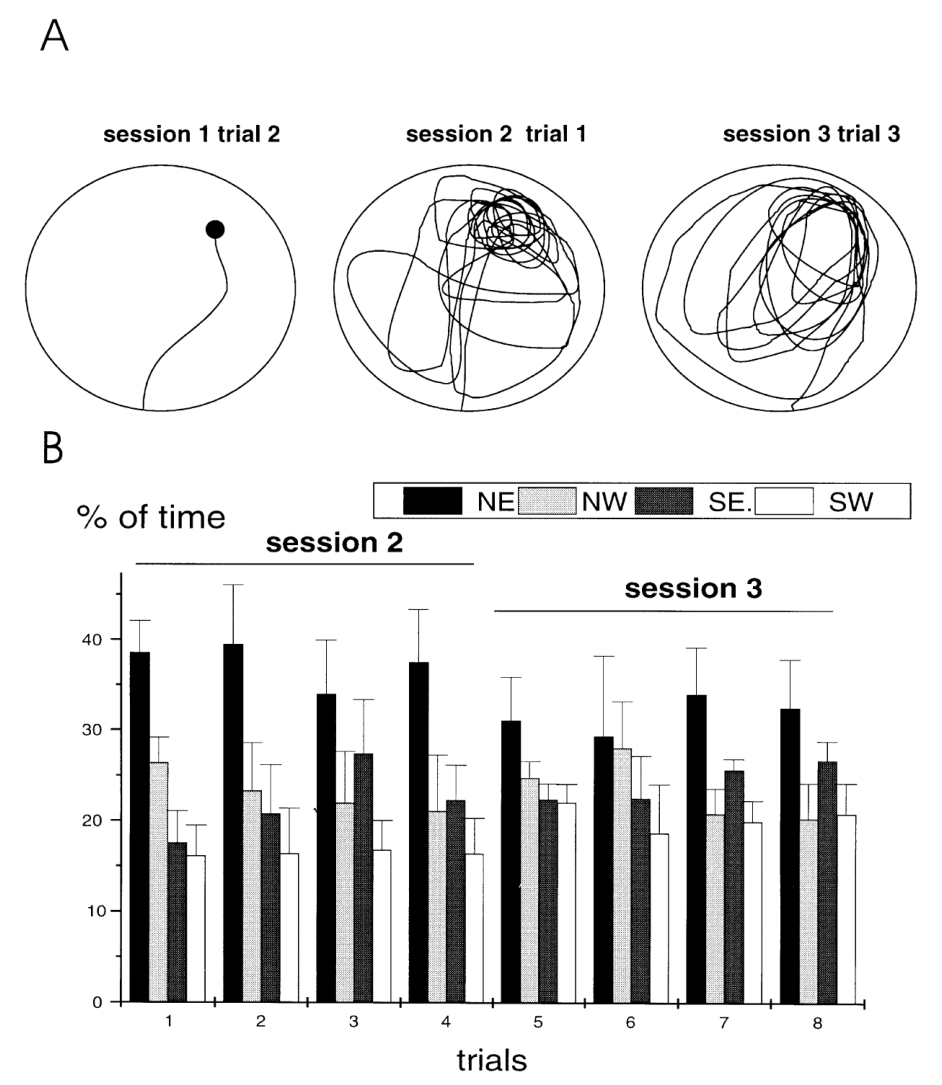
图 8 · 术前学习、术后保持的定量对比
原文图注:Fig. 8. Mean successful ®ndings, behavioural scores and escape latencies in MWM retention paradigm. Rats were pre-operatively (place I, cue and place II) and post-operatively (place III) tested. Vertical arrows indicate hemicerebellectomy (HCb). Vertical bars indicate standard errors [from Petrosini et al. (1996).]
该图展示了在保持测试(retention paradigm)中大鼠的三项表现曲线:动物在术前完成 place I、cue 和 place II 测试,术后进行 place III 测试,箭头标示实施单侧小脑切除的手术时点。结果显示,术后 place III 的寻台成功率、搜索评分及潜伏期与术前末期测试无显著差异,支持小脑损伤主要损害新空间策略的获取,而不影响已习得策略的储存与提取,对应结果第 4 条。
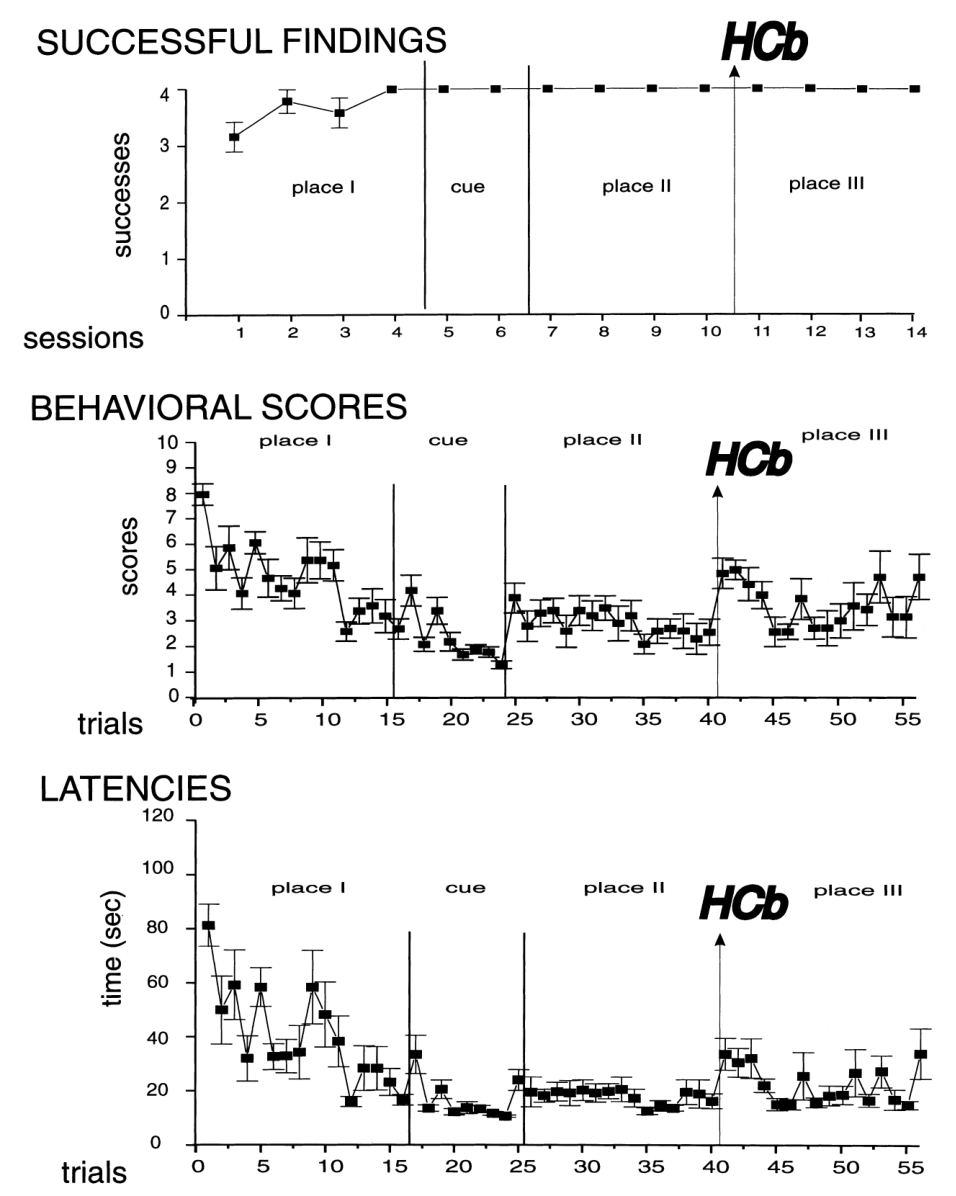
图 9 · 术后直达轨迹的保持
原文图注:Fig. 9. Swimming trajectories displayed by a rat in the retention paradigm. The animal was pre-operatively (place I and place II) and post-operatively (place III) tested. Note the maintenance of the direct trajectory acquired preopera- tively.
该轨迹图展示了单只大鼠在保持测试中的游泳路径:术后(place III)大鼠依然保持了术前习得的直达轨迹,直观表明在小脑切除前已建立的空间导航程序可在术后正常调取与执行,对应结果第 4 条。
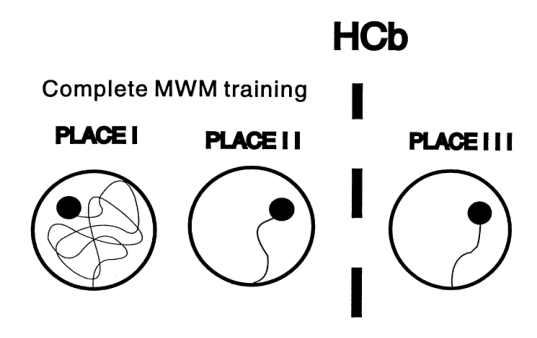
图 10 · 非空间预训练的三组比较
原文图注:Fig. 10. Mean successful ®ndings, behavioural scores and escape latencies obtained by control, HCbed and non-spatially pre-trained HCbed animals in MWM paradigm. Vertical bars indicate standard errors (from Leggio et al., submitted).
该图比较了对照组、常规 HCb 组以及接受非空间预训练的 HCb 组在水迷宫中的三项指标。接受非空间预训练的 HCb 组寻台成功率显著高于常规 HCb 组,与对照组相比无统计学差异;但其行为评分偏高且逃避潜伏期更长,反映其依赖系统性全池扫描策略而非直达平台的空间定位策略,对应结果第 5 条。
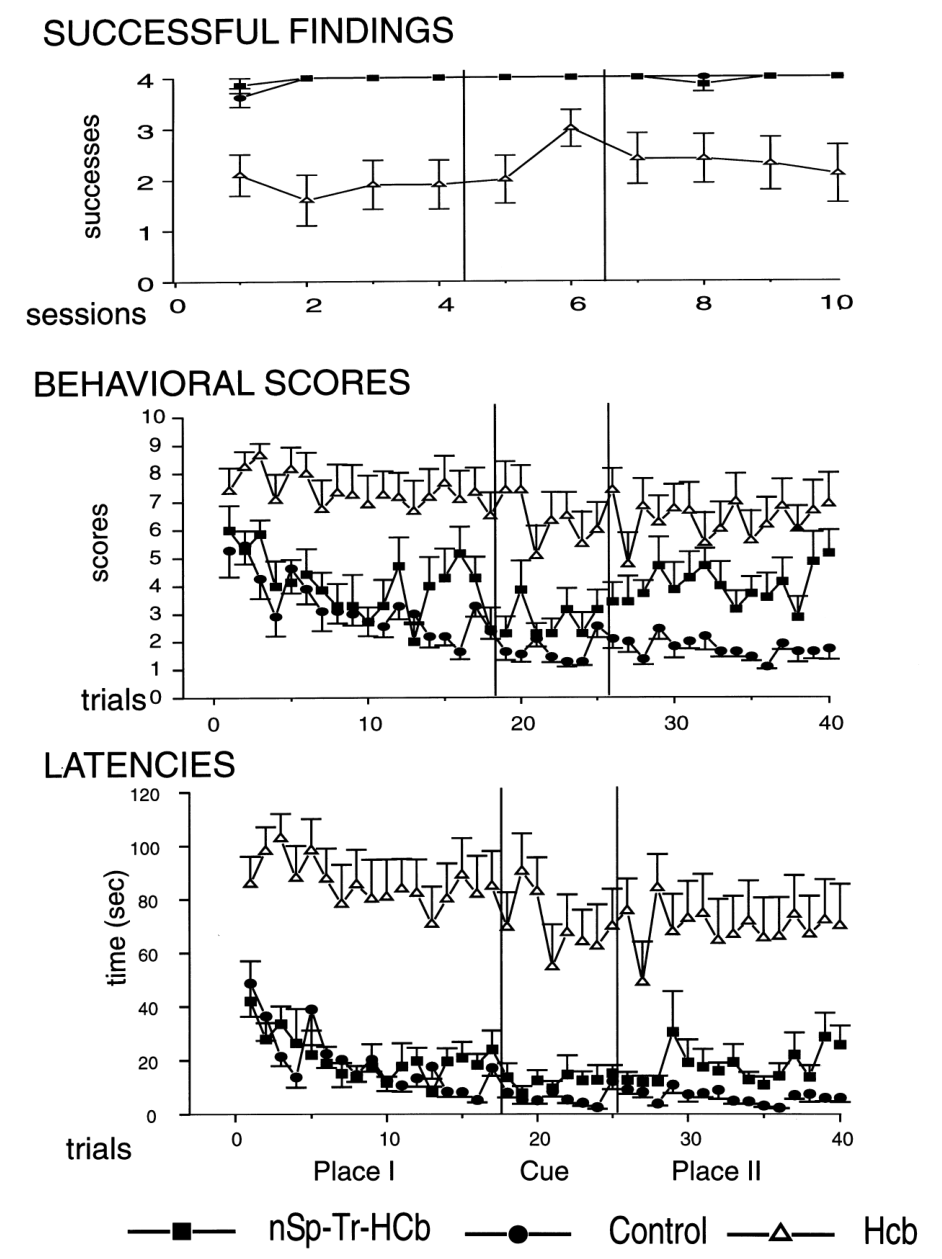
图 11 · 扫描策略的习得与保持
原文图注:Fig. 11. Swimming trajectories of a naive animal during the non-spatial pretraining paradigm. The ani- mal was pre-operatively and post-operatively tested, vertical dashed bar indicates hemicerebellectomy. Note the development of a whole pool scanning procedure during the non-spatial training and its main- tenance after the HCb in the MWM paradigm (from Leggio et al., submitted).
轨迹图记录了一只初次受试大鼠在非空间预训练中的搜索路径演变。在黑幕遮蔽所有空间线索的条件下,大鼠逐渐建立起覆盖全池的周遍扫描程序;竖直虚线标示实施 HCb 手术的时点,术后大鼠在水迷宫中仍完整保留并运用该扫描程序。这一现象表明小脑完整时习得的搜索程序在术后仍可执行,但缺乏小脑使动物难以在具备外源线索的新环境中灵活切换至更高效的定位策略,对应结果第 5 条。
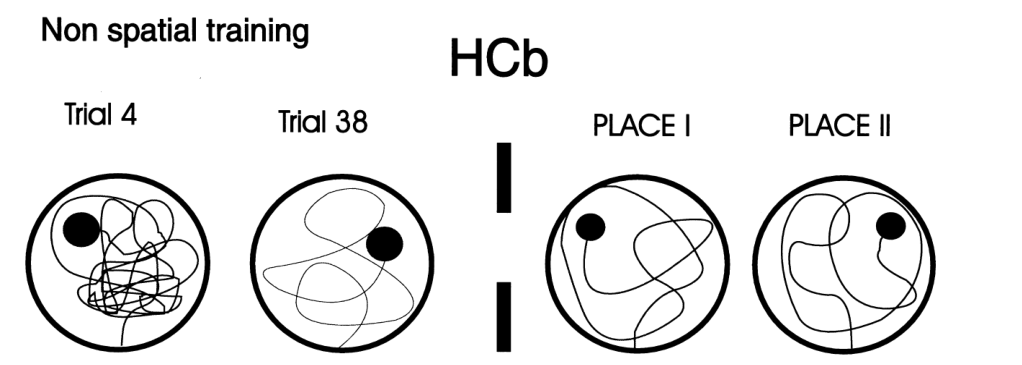
图 12 · 主动回避:加不加空间要求
原文图注:Fig. 12. (A) Mean avoidances responses of control animals in the active avoidance task with and without spatial requests. (B) Mean correct avoidances responses of control and HCbed animals in the active avoidance task with spatial requests. (C) Mean correct responses (avoidances + escapes) in control and HCbed animals in the active avoidance task with spatial requests. Vertical bars indicates standard errors [from Molinari et al. (1997a)].
(A) 显示对照组在有无空间要求条件下的回避反应差异;(B) 显示加入空间要求后两组的正确回避次数对比;(C) 显示两组在有空间要求条件下的总正确反应数(回避加逃避)。结果表明,HCb 组在无空间要求的标准穿梭任务中表现正常,但在引入左右通道空间辨别后正确回避反应显著受损,经反复训练后可逐步改善,证实损伤选择性影响空间辨别环节而非一般的回避反应能力,对应结果第 6 条。
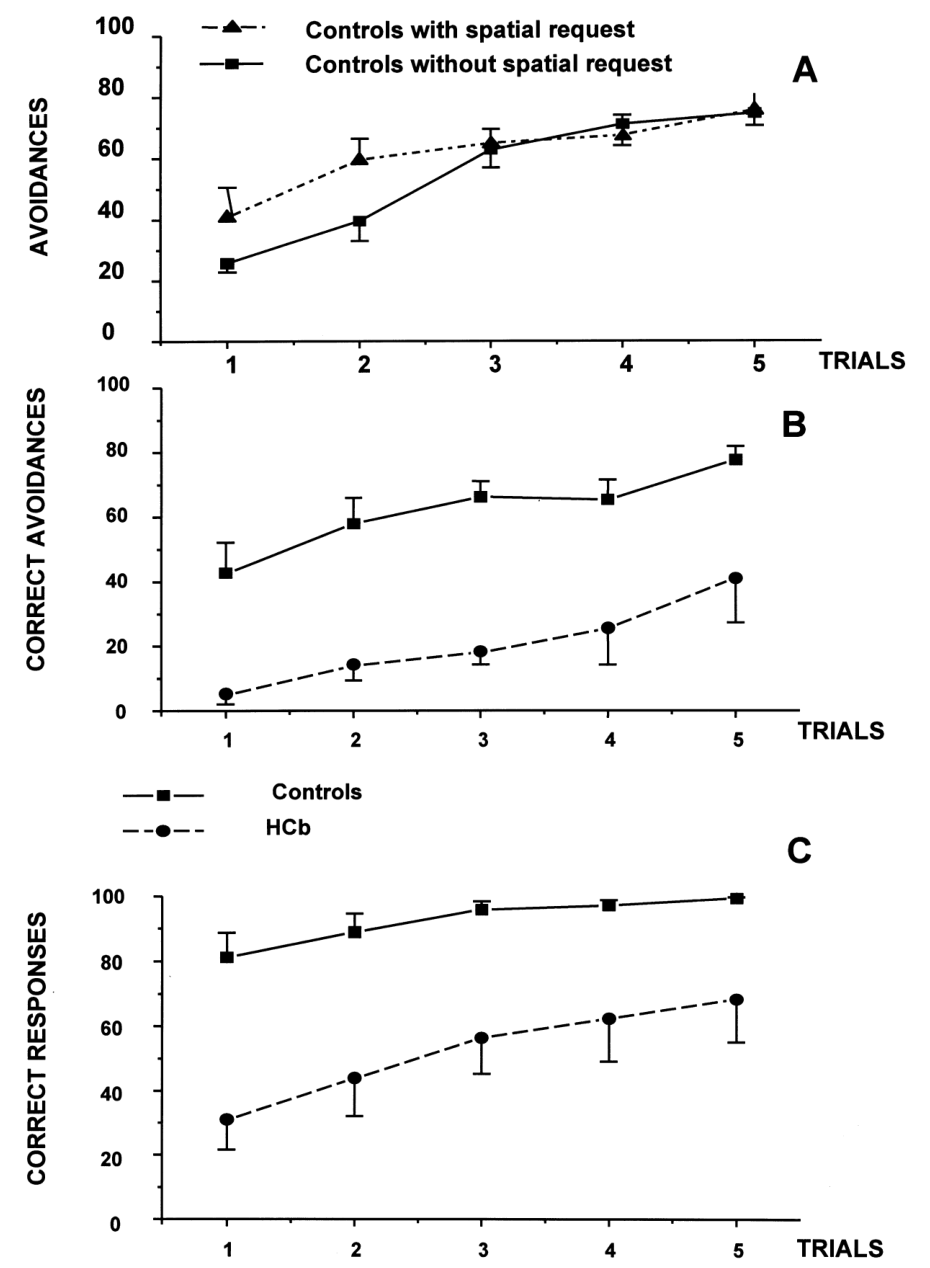
图 13 · 获取与反转中的反应结构
原文图注:Fig. 13. Mean responses of control (A and C) and HCbed (B and D) animals in the active avoidance task with spatial requests during acquisition (A and B) and spatial reversal learning (C and D). Vertical bars indicates standard errors [from Molinari et al. (1997a).]
四面板展示了对照组(A、C)与 HCb 组(B、D)在习得阶段(A、B)和空间反转学习阶段(C、D)的反应结构。在习得初期,HCb 组表现为错误回避极少而错误逃避显著偏多,该反应模式与反转学习初期的对照组类似,提示空间辨别能力是组织有效回避反应的前提。在反转学习测试中,对照组随着训练逐步重新掌握规则,而 HCb 组的反应曲线在测试期间未见明显改变,表明其空间策略的重新调整存在困难,对应结果第 6 条。
讨论
作者从两个理论层面整合各项发现。首先在记忆分类维度,依据 Squire 的陈述性/程序性记忆二分法与 Schenk & Morris 的空间分类,外源环境地图(place)属于陈述性空间记忆,而基于自身运动序列(praxic)与趋近线索(taxic)的策略属于程序性空间记忆。海马损伤主要破坏陈述性空间记忆而保留程序性成分(如海马损伤动物在可见平台任务中表现完好而在隐蔽平台任务中受损);小脑损伤则呈现相反模式,主要损害探索程序的建立与灵活调度,且对程序要求更严格的水 T 迷宫表现出重度障碍。两者的共性在于,当空间记忆痕迹稳固形成后,损伤海马或小脑均不影响既有策略的提取,提示成熟空间信息可能转移至大脑皮层进行长期储存。其次在神经解剖网络层面,空间认知涉及由顶叶、下颞叶、海马及额叶构成的外源(allocentric)空间系统,分别承担坐标建立、对象识别、空间位置表征与时序组织;而小脑与基底节则构成以自身为中心(egocentric)的导航控制网络,负责程序性动作组织与定向调节,两套系统相互协同。小脑-大脑皮层投射在空间与物体通路上的分离,进一步为这一功能交互提供了结构支持。
在研究局限方面,HCb 大鼠在多项指标上未能完全达到正常对照水平,尚不能彻底排除陈述性成分受到轻度影响的可能;此外,程序性探索是获取环境空间知识的前提,行为实验中很难将探索程序执行不力与空间认知本身完全剥离。关于行为刻板性的神经机制,存在两种主要解释:一种观点认为其反映了运动计划与认知灵活性障碍(类似小脑病变患者出现的额叶样认知规划受损),另一种观点则认为损伤特异性累及新策略的习得。作者倾向于后者,提出小脑主要负责在具体行为情境中建立与输出适宜的动作程序,而前额叶皮层负责在备选策略间进行选择与调控。贴壁绕圈行为则被解释为幼年发育阶段原始探索程序的重新显现(正常幼鼠在发育早期普遍存在贴壁绕圈现象,Paylor & Rudy 1990),损伤导致成熟策略丧失,进而代偿性退行至早期运动模式。
一句话总结
该综述系统梳理了小脑在空间行为中的非运动功能,提出小脑并非负责“目标在哪里”的环境地图表征,而是参与“如何找到目标”的新程序策略习得与自我参照定向控制,为区分空间认知中的陈述性与程序性成分提供了行为学证据。